来源:The dirigent protein MsDIR6 functions in drought tolerance and modulates reactive oxygen species scavenging and secondary metabolite biosynthesis in alfalfa(Plant Science)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
紫花苜蓿是全球重要饲草作物,干旱造成的减产严重威胁饲草可持续生产。该研究在全基因组水平鉴定出52个苜蓿MsDIR基因,筛选出响应干旱的核心候选基因MsDIR6,并通过酵母、拟南芥和苜蓿毛状根三套异源/同源体系验证其抗旱功能。转录组分析进一步揭示MsDIR6通过激活苯丙烷与黄酮类生物合成通路增强活性氧清除能力,为苜蓿抗旱分子育种提供了候选基因资源。
研究背景
干旱是限制植物生长与作物生产力的首要非生物胁迫,它破坏水分吸收、降低光合效率并诱发氧化损伤。有预测认为,干旱导致的产量损失将超过其他所有非生物与生物胁迫损失之和,对全球粮食安全构成严重威胁。面对日益加剧的全球干旱态势,植物进化出了精细的分子机制,包括气孔关闭调控与活性氧(ROS)清除,这些机制使植物在水分子缺条件下维持生产力。ROS是植物有氧代谢不可避免的副产物,其积累会造成显著的细胞氧化损伤。细胞防御ROS依赖过氧化物酶(POD)、过氧化氢酶(CAT)、抗坏血酸过氧化物酶(APX)等抗氧化酶,以及还原型谷胱甘肽、黄酮类和木质素等非酶抗氧化剂。此外,ROS的清除还受益于植物体内一系列代谢过程与基因表达。木脂素是一类天然酚类化合物,参与植物防御反应。Dirigent(DIR)蛋白在木脂素生物合成与植物胁迫响应中发挥重要作用,但DIR家族基因参与植物非生物胁迫响应的具体机制尚不完全清楚。
研究方法
2.1 苜蓿基因组中DIR基因的鉴定
利用苜蓿基因组数据(Shen et al., 2020),我们首先通过TBtools软件(Chen et al., 2020)的比较分析初步鉴定推定的DIR基因家族成员。通过检索Pfam(http://pfam.xfam.org/)和InterPro数据库(https://www.ebi.ac.uk/interpro/)确认候选基因中保守DIR结构域(PF03018)的存在,最终确定MsDIR基因家族。MsDIR蛋白的理化性质,包括氨基酸长度、分子量、理论等电点(pI)、总平均亲水性(GRAVY)和不稳定指数,使用ExPASy ProtParam工具(https://web.expasy.org/protparam/)分析。跨膜结构域用TMHMM Server v.2.0(http://www.cbs.dtu.dk/services/TMHMM/)预测,亚细胞定位使用WOLF PSORT在线平台(https://wolfpsort.hgc.jp/)推断。
【数据】基因家族成员数:52个MsDIR;保守结构域:PF03018;E值阈值:<1e-5;分析工具:TBtools、Pfam、InterPro、ExPASy ProtParam、TMHMM v.2.0、WOLF PSORT
2.2 系统发育关系、多序列比对与基因共线性分析
利用TBtools以邻接法(bootstrap = 1000)构建苜蓿、拟南芥和蒺藜苜蓿DIR蛋白序列的系统发育树(Saitou et al., 1987),随后在EVOLGENIUS平台(https://www.evolgenius.info//evolview-v2/#mytrees/1/)上可视化。基于系统发育分析,鉴定出与拟南芥AtDIR5和AtDIR6高度同源的DIR-a亚家族成员。使用MEGA 11.0对所选蛋白序列进行多序列比对,结果用ESPript 3.0(https://espript.ibcp.fr/)可视化。基于拟南芥(https://www.arabidopsis.org)和蒺藜苜蓿(http://plants.ensembl.org/Medicago_truncatula/Info/Index)的基因组数据与注释文件,通过TBtools分析拟南芥、蒺藜苜蓿和苜蓿之间DIR基因的共线性关系。
【数据】系统发育方法:邻接法;bootstrap:1000;比对软件:MEGA 11.0;可视化:ESPript 3.0、EVOLGENIUS;共线性分析软件:TBtools
2.3 保守基序、结构域、基因结构及启动子顺式作用元件分析
在TBtools软件中鉴定MsDIR蛋白序列的保守基序。使用NCBI数据库的CD-Search工具(https://www.ncbi.nlm.nih.gov/)预测结构域。利用苜蓿基因组GFF注释文件,通过TBtools提取MsDIR基因的外显子-内含子结构。使用PlantCARE数据库(https://bioinformatics.psb.ugent.be/webtools/plantcare/html/)预测MsDIRs启动子区的顺式作用元件(Lescot et al., 2002)。
【数据】结构域预测工具:NCBI CD-Search;基因结构提取:TBtools + GFF注释文件;顺式元件数据库:PlantCARE
2.4 转录组数据分析
通过检索Sequence Server 3.1.2在线网站(https://medicago.legumeinfo.org/tools/sequenceserver/)获得与MsDIRs最佳匹配的转录本序列。从CADL-Gene Expression Atlas数据库(https://www.alfalfatoolbox.org/atlasCADL/)获取MsDIRs在苜蓿不同组织中的表达模式。从NCBI数据库下载苜蓿在多种非生物胁迫(冷、干旱、盐和ABA处理)下的转录组数据(Zhou et al., 2018; Luo et al., 2019a, 2019b; Dong et al., 2021)。
【数据】序列检索工具:Sequence Server 3.1.2;表达数据库:CADL-Gene Expression Atlas;胁迫转录组来源:NCBI;胁迫类型:冷、干旱、盐、ABA
2.5 植物材料与处理
本研究所用植物材料包括野生型拟南芥(Columbia-0生态型,WT)、苜蓿品种中苜1号和本氏烟草。所有植物均在24°C、16 h光照/8 h黑暗光周期条件下培养,并定期补充Hoagland营养液以维持最佳生长。对水培生长30天的苜蓿幼苗分别进行15%聚乙二醇(PEG)6000(干旱胁迫)、150 mmol·L⁻¹ NaCl(盐胁迫)和10 μmol·L⁻¹ ABA处理。胁迫处理后立即采集叶片组织,于液氮中速冻并保存于−80 °C用于后续RNA分析。
【数据】培养温度:24°C;光周期:16 h光照/8 h黑暗;苗龄:30天;PEG 6000浓度:15%;NaCl浓度:150 mmol·L⁻¹;ABA浓度:10 μmol·L⁻¹;保存温度:−80 °C
2.6 实时定量PCR(qRT-PCR)分析
按照制造商说明,使用Eastep® Super Total RNA Purification Kit(Promega,上海,中国)从冻存叶片样品中提取总RNA。qRT-PCR在CFX Connect™ Real-Time PCR Detection System(Bio-Rad Laboratories, Inc., 美国)上进行。以Msβ-actin基因作为内参进行归一化。不同胁迫条件下MsDIR基因的相对表达水平采用2⁻ΔΔCT法计算(Livak and Schmittgen, 2001)。本研究所用引物见支持表格:表S1。
【数据】RNA提取试剂盒:Eastep® Super Total RNA Purification Kit(Promega);qPCR仪器:CFX Connect™;内参基因:Msβ-actin;计算方法:2⁻ΔΔCT
2.7 亚细胞定位与启动子活性分析
将MsDIR6的编码序列(CDS,不含终止子)克隆至pCAMBIA1300-GFP载体。携带上述重组载体和空载体的农杆菌GV3101菌株分别侵染3周龄烟草叶片。黑暗孵育12 h后,植物在正常光照条件下培养36 h。使用激光扫描共聚焦显微镜以488 nm激发波长观察GFP信号。从苜蓿基因组DNA中PCR扩增MsDIR6基因启动子片段,克隆至pCAMBIA1391Z双元载体以构建proMsDIR6::GUS报告载体。利用携带重组质粒的根癌农杆菌GV3101菌株通过花浸法转化拟南芥(Clough and Bent, 1998)。在含潮霉素的1/2 MS培养基上筛选同源转基因株系,并在不同生长阶段收集其组织用于GUS检测。按照制造商说明使用X-Gluc(G-CLONE Biotechnology,北京,中国)进行组织化学染色以可视化GUS表达。染色后,组织在75%乙醇中脱色并使用体视显微镜(Leica TL5000 Ergo Transmitted Light Base,新加坡)成像。定量分析使用4-MU荧光法(Enzyme-linked Biotechnology,上海,中国)测定GUS活性,并基于标准曲线计算。
【数据】载体:pCAMBIA1300-GFP、pCAMBIA1391Z;农杆菌菌株:GV3101;烟草苗龄:3周;黑暗孵育:12 h;光照培养:36 h;GFP激发波长:488 nm;脱色液:75%乙醇;GUS定量:4-MU荧光法
2.8 MsDIR6在酿酒酵母和拟南芥中的抗旱性评价
将MsDIR6完整CDS序列克隆至pYES2-NTB载体。将重组质粒(pYES2-NTB-MsDIR6)和空载体分别转化至酿酒酵母INVSc1菌株。渗透胁迫实验中,转化子梯度稀释(1:1、1:10、1:100、1:1000)后点样于含0.1 M甘露醇的SG-U培养基。28 °C孵育2天后观察菌落生长以评估渗透耐受性。将pCAMBIA1300-MsDIR6-GFP载体通过上述花浸法转化拟南芥。转基因阳性植株用Basta除草剂筛选,从抗性植株收集T2代同源种子。表面消毒的WT和转基因(OE)拟南芥种子播种于含0 mM或300 mM甘露醇的1/2 MS培养基以模拟干旱胁迫条件。4°C黑暗春化2天后,种子转移至生长室(16 h光照/8 h黑暗,22°C)培养7天,每日记录发芽率。根生长实验中,在1/2 MS培养基上生长3天的均匀WT和OE幼苗转移至含0或300 mM甘露醇的1/2 MS培养基。再培养10天后,测量根长、子叶变绿率和侧根数。同时,将在1/2 MS培养基上生长7天的WT和OE幼苗移植至蛭石基质并驯化2周。干旱处理时,植株分为两组:一组断水14天后复水5天进行存活率分析;另一组断水10天以评估生理参数。所有实验均设三个生物学重复。
【数据】酵母菌株:INVSc1;载体:pYES2-NTB;甘露醇浓度:0.1 M(酵母)、0/300 mM(拟南芥);稀释梯度:1:1、1:10、1:100、1:1000;酵母培养温度/时间:28 °C、2天;春化:4°C黑暗2天;培养条件:16 h光照/8 h黑暗、22°C、7天;断水:14天+复水5天(存活率)、10天(生理参数);生物学重复:3次
2.9 抗旱性(后续实验)
(原文节选至此结束,后续方法内容原文未详述。)
【数据】原文未详述
研究结果
3.1 MsDIR基因家族成员基本信息
基于保守dirigent结构域(PF03018)的存在,通过Pfam、InterPro和NCBI CD Search数据库以严格阈值(E值 < 1e-5)在苜蓿基因组中共鉴定出52个DIR家族成员(支持表格:表S2)。编码的MsDIR蛋白理化性质差异显著。其长度范围为48至467个氨基酸(aa),对应分子量(MW)为5.64–52.46 kDa。预测等电点(pI)和总平均亲水性(GRAVY)评分分别为4.17–11.19和−0.372–0.330。不稳定系数表明大多数成员稳定,因其低于40。跨膜分析显示仅8个成员具有跨膜结构域。亚细胞定位预测表明23个MsDIR蛋白定位于细胞质,其余蛋白定位于其他细胞器(支持表格:表S2)。
【数据】家族成员:52个;氨基酸长度:48–467 aa;分子量:5.64–52.46 kDa;pI:4.17–11.19;GRAVY:−0.372–0.330;不稳定系数阈值:<40;含跨膜结构域成员:8个;细胞质定位:23个;E值:<1e-5
3.2 MsDIR基因家族的系统发育与表达分析
为揭示MsDIR蛋白的进化动态,我们构建了包含苜蓿52个MsDIRs、拟南芥25个AtDIRs和蒺藜苜蓿45个MtDIRs的系统发育树(图1a)。结果显示DIR蛋白明显分为五个亚家族:DIR-a、DIR-b、DIR-c、DIR-d和DIR-e。由于MtDIR41、MtDIR42、MsDIR47、MsDIR48、MsDIR49和MsDIR50属于DIR-a家族且在系统发育上与AtDIR5和AtDIR6接近,我们选择它们进行多序列比对。从比对中观察到这些蛋白间序列高度相似且进化保守性强(图1b)。苜蓿与拟南芥DIR家族共线性分析显示,6个MsDIR基因与同源基因存在显著共线性,可能源于祖先片段重复。此外,我们发现16个MsDIRs与蒺藜苜蓿共享高度保守的共线性,表明该属内染色体结构的进化保守性(图1c)。序列分析显示MsDIR蛋白亚家族内保守基序高度相似,43个成员含典型Dirigent结构域,9个成员含Dirigent超家族结构域(支持图:图S1a、b)。基因结构分析表明仅5个MsDIR基因含内含子,其余47个无内含子(支持图:图S1c)。MsDIRs启动子分析揭示非生物胁迫相关顺式作用元件富集,包括15个基因中的干旱诱导元件和22个基因中的低温响应元件,提示MsDIRs在胁迫适应中的关键作用(支持图:图S1d)。为研究MsDIR基因的组织特异性表达,我们利用苜蓿六个组织(伸长茎、伸长后茎、叶、花、根瘤和根)的转录组数据生成热图(图1d)。发现MsDIR基因在根和茎中转录丰度高,但在根瘤中丰度相对较低。为研究MsDIR基因对非生物胁迫的响应,我们分析了其在低温、干旱、盐和ABA处理下的表达谱。结果显示40个MsDIRs对低温正响应,41个对干旱胁迫正响应,39个对盐胁迫正响应,32个对ABA处理正响应(图1e-h)。值得注意的是,MsDIR2、3、4、5、6、7、11和52在干旱和ABA处理下均显著上调,暗示其在调控干旱响应通路中的关键功能。系统发育分析进一步揭示这八个基因属于DIR-e亚家族(图1a)。
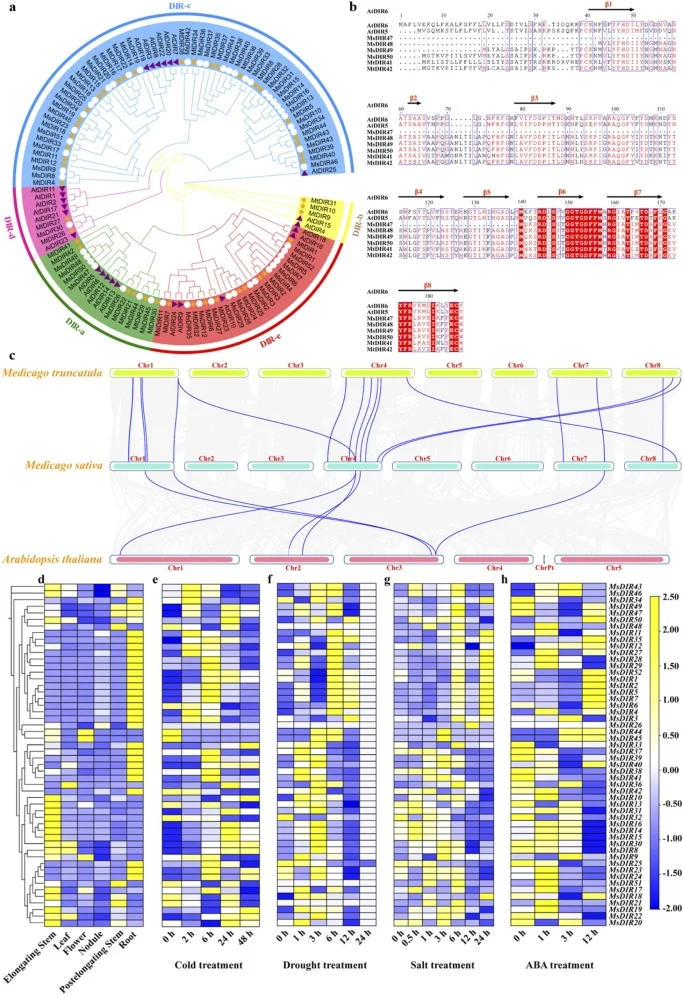
【数据】系统发育树:52个MsDIR + 25个AtDIR + 45个MtDIR;亚家族:5个(DIR-a至DIR-e);含典型Dirigent结构域:43个;含超家族结构域:9个;含内含子:5个;无内含子:47个;干旱诱导元件:15个基因;低温响应元件:22个基因;低温正响应:40个;干旱正响应:41个;盐正响应:39个;ABA正响应:32个;干旱+ABA共同上调:MsDIR2、3、4、5、6、7、11、52(DIR-e亚家族)
3.3 MsDIR6作为干旱胁迫响应的潜在基因
基于转录组分析,MsDIR2、3、4、5、6、7、11和52被鉴定为耐旱候选基因。qRT-PCR也证实了这些基因的干旱响应表达,其中MsDIR2、6、11和52的表达水平超过0 h的20倍(图2a)。值得注意的是,MsDIR6诱导最为显著,在干旱暴露12 h后达到峰值,增加211倍。这些发现促使我们聚焦MsDIR6进行更深入分析。转录组数据显示MsDIR6在苜蓿各组织中转录水平不同。为进一步研究其空间表达模式,我们构建了表达proMsDIR6::GUS报告基因的拟南芥转基因株系。组织化学染色显示根、叶和叶柄中GUS活性强,而茎和角果中信号相对较弱(图2b)。值得注意的是,幼叶中GUS染色比成熟叶更强烈,提示MsDIR6可能在叶片早期发育中发挥优先作用。我们还通过用300 mM甘露醇处理1/2 MS上的转基因幼苗检测了MsDIR6对干旱胁迫的响应。结果显示,与对照相比,处理后12 h proMsDIR6::GUS表达显著诱导,24 h后进一步增加(图2c)。与该时间模式一致,干旱胁迫24 h后GUS酶活性明显增强(图2d)。总之,这些结果表明MsDIR6响应干旱,并可能在植物适应水分亏缺中发挥作用。
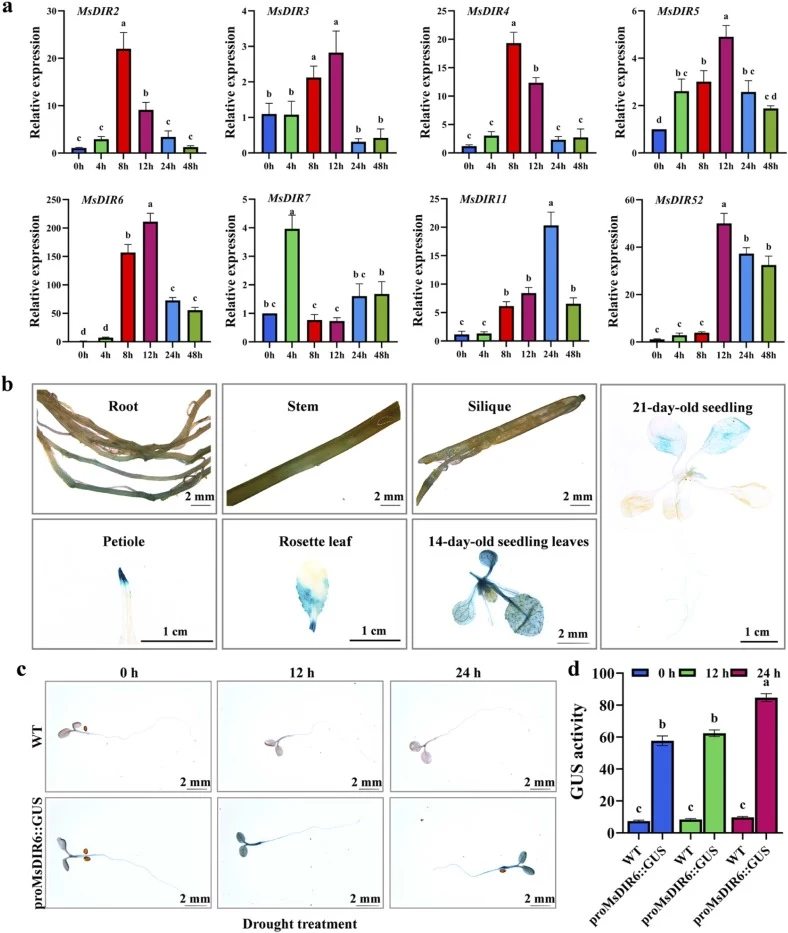
【数据】qRT-PCR验证候选基因:MsDIR2、6、11、52表达>20倍;MsDIR6峰值:12 h干旱后211倍;GUS强表达组织:根、叶、叶柄;弱表达:茎、角果;甘露醇浓度:300 mM;诱导时间点:12 h、24 h
3.4 MsDIR6的亚细胞定位及酿酒酵母渗透抗性分析
通过MsDIR6-GFP融合蛋白在烟草叶片中的瞬时表达检测MsDIR6的亚细胞定位(图3a)。荧光信号观察显示MsDIR6蛋白定位于细胞核和细胞膜,而GFP对照分布在整个细胞中。为在详细的植物功能分析之前初步筛选MsDIR6是否具有内在渗透胁迫保护活性,我们在酿酒酵母中异源过表达MsDIR6并评估其在渗透耐受性中的作用(图3b)。在甘露醇诱导的渗透胁迫下,表达MsDIR6的酵母细胞存活率显著高于携带空载体的细胞,尤其在100倍稀释时,表明MsDIR6过表达增强了酵母细胞的渗透胁迫抗性。
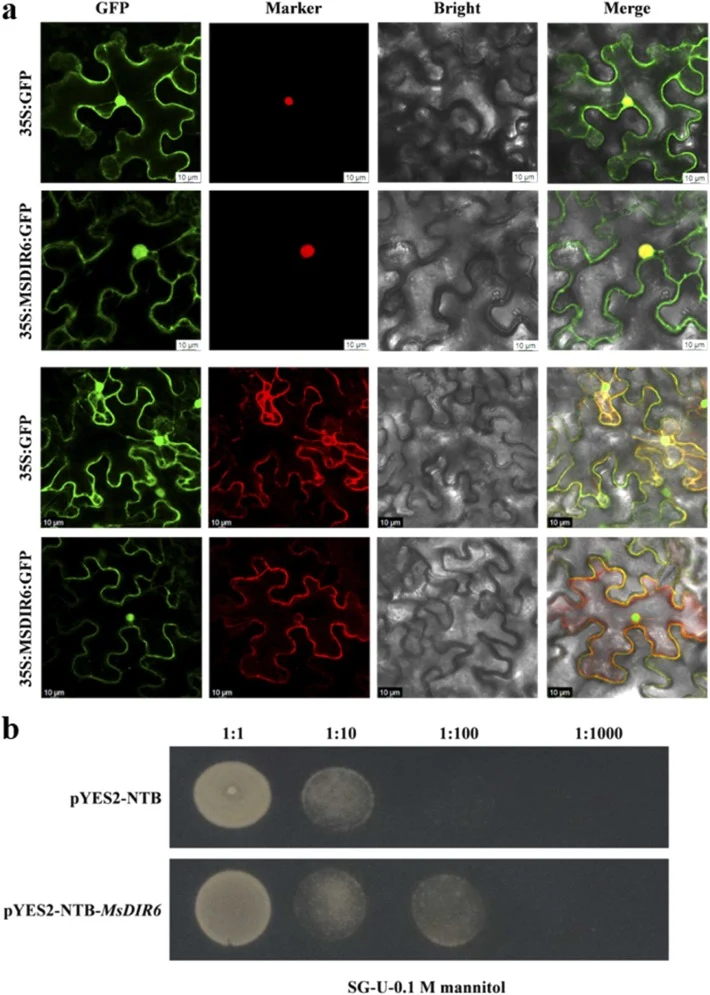
【数据】定位:细胞核和细胞膜;GFP激发:488 nm;渗透胁迫剂:0.1 M甘露醇;稀释梯度:1:1–1:1000;显著差异稀释度:100倍;酵母培养:28 °C、2天
3.5 MsDIR6异源过表达改善拟南芥干旱表现
为在异源系统中初步评估MsDIR6功能,选择两个抗旱性优越的代表性拟南芥过表达株系(OE2和OE7)进行功能分析。正常条件下,WT与OE株系间发芽率无明显差异。尽管300 mM甘露醇处理明显抑制所有株系发芽,但OE株系发芽率显著高于WT(图4a)。根生长实验中,300 mM甘露醇处理下10日龄OE幼苗初生根长于WT且子叶变绿率更高,而无甘露醇时无差异(图4b-d)。我们还发现侧根数在两种条件下基因型间均无显著差异(支持图:图S2)。为评估MsDIR6在后期发育阶段的耐旱功能,对三周龄WT和OE拟南芥植株进行14天断水处理。结果显示处理结束时大多数WT植株表现严重萎蔫症状,而仅少数OE植株出现萎蔫迹象(图4e)。复水5天后,WT植株存活率(18.75%)显著低于OE株系(71.88%),突显MsDIR6的显著保护作用(图4f)。干旱胁迫下生理分析显示OE株系维持显著更低的EL和……(原文节选至此结束,后续内容原文未详述)。
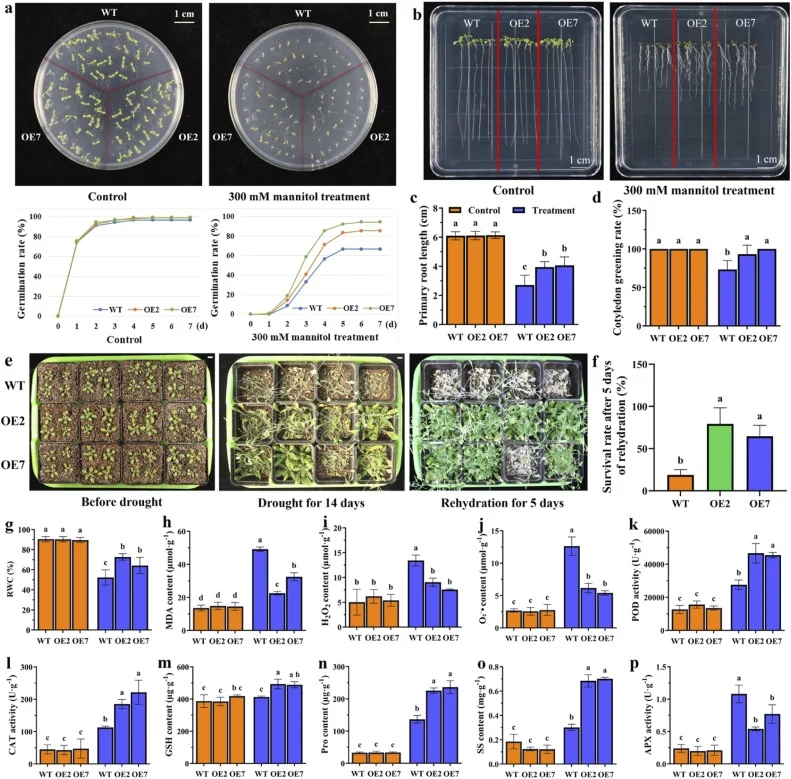
【数据】过表达株系:OE2、OE7;甘露醇浓度:0/300 mM;根生长实验苗龄:10天;干旱处理苗龄:3周;断水:14天;复水:5天;存活率:WT 18.75% vs OE 71.88%;侧根数:无显著差异
3.6 离体叶片失水与气孔运动分析
(原文节选未提供该部分正文,图5对应内容原文未详述。)
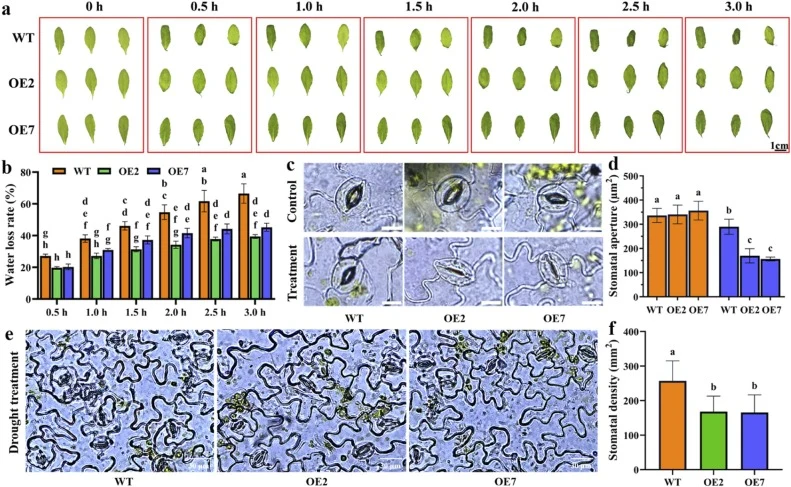
【数据】原文未详述
3.7 MsDIR6增强转基因苜蓿毛状根的抗旱性
(原文节选未提供该部分正文,图6对应内容原文未详述。)
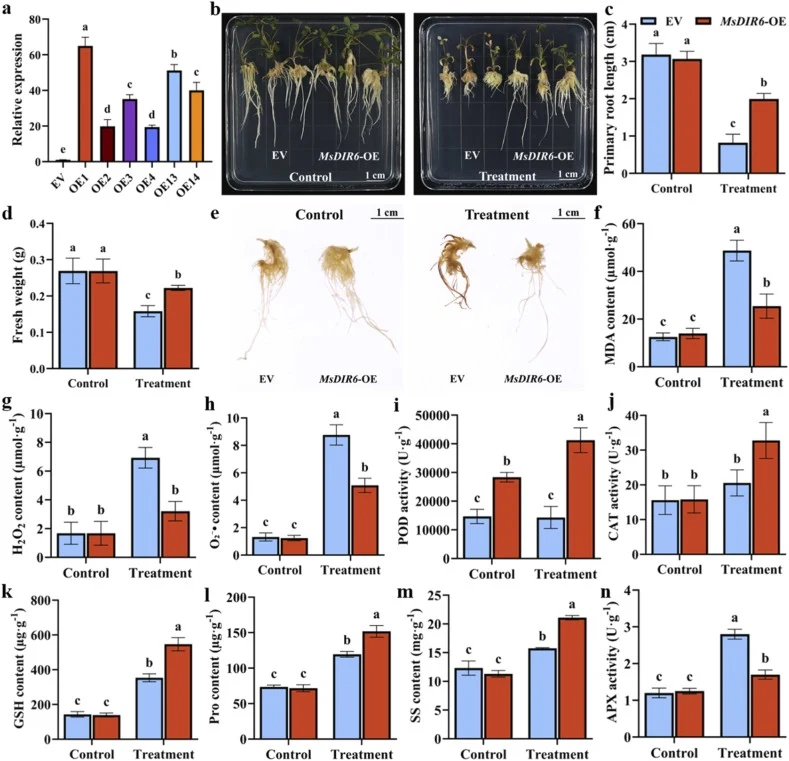
【数据】原文未详述
3.8 EV与MsDIR6-OE苜蓿毛状根的比较转录组分析
(原文节选未提供该部分正文,图7对应内容原文未详述。)
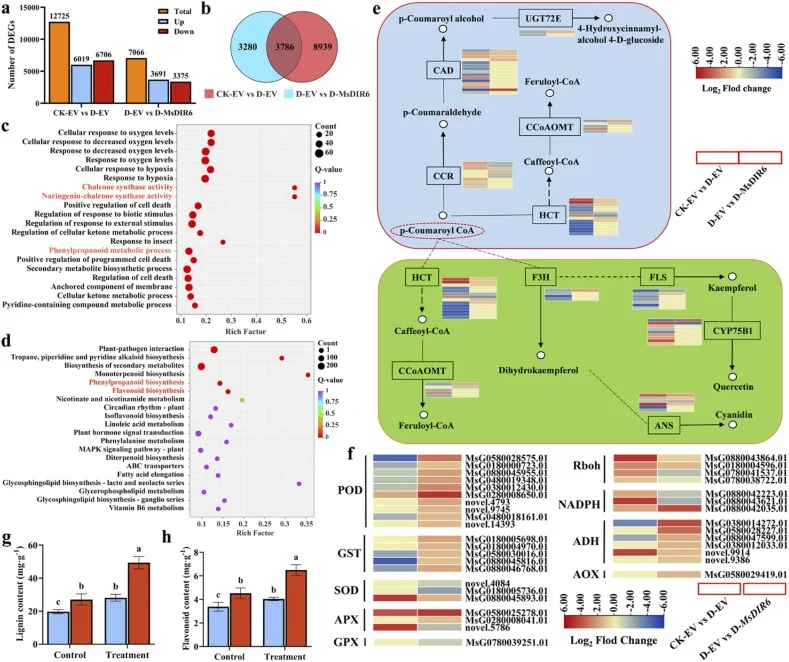
【数据】原文未详述
3.9 MsDIR6介导的干旱胁迫响应模型
(原文节选未提供该部分正文,图8对应内容原文未详述。)
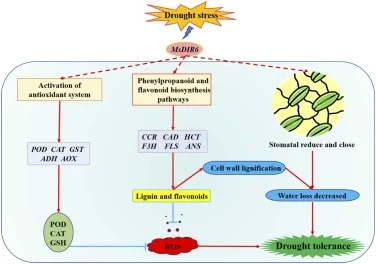
【数据】原文未详述
讨论与解读
植物抗旱性由整合多层次生理生化过程与动态遗传互作的复杂调控网络所支配。该网络的关键组分是精细的抗氧化系统,其进化用于减轻干旱胁迫下过量ROS对蛋白质、脂质和其他生物大分子造成的氧化损伤。DIR家族基因已知参与植物非生物胁迫响应,但其具体机制尚不完全清楚。本研究通过整合生物信息学与表达谱分析,将MsDIR6鉴定为苜蓿关键耐旱候选基因。在酵母、拟南芥和苜蓿毛状根中的功能分析表明,MsDIR6显著增强这些系统的耐旱性。转录组分析揭示MsDIR6过表达与抗氧化防御的转录重编程相关,包括苯丙烷和黄酮类生物合成通路的诱导,这些通路可能共同增强细胞ROS清除能力。这些发现为DIR介导的植物抗旱潜在机制提供了新的分子见解。DIR蛋白在不同植物物种间氨基酸长度和分子量存在显著种间变异——在茄子中DIR蛋白跨度146–546个氨基酸、分子量16.14–59.69 kDa,而DIR同源……(原文节选至此结束)。
编译者解读:该研究以"基因组鉴定—表达筛选—异源验证—同源验证—转录组解析"的标准范式,将MsDIR6从52个家族成员中层层锁定,逻辑链条完整。酵母渗透实验作为前置快速筛选、毛状根体系作为同源验证,是合成生物学中"底盘递进"思路的体现。局限在于:MsDIR6定位于核与质膜却无跨膜结构域,其分子作用靶标未明;过表达策略在田间多年生苜蓿中的稳定性与产量代价仍需评估。若能将MsDIR6与黄酮通路关键酶共表达或做启动子精细调控,或可降低组成型过表达的生长负担。
参考来源
期刊:Plant Science(2026)
DOI:10.1016/j.plantsci.2026.113442
DOI: 10.1016/j.plantsci.2026.113442