来源:蛋白表达包涵体诱导温度(DNA Lab Space 实验教程)| 编译:DNA Lab Space
做重组蛋白表达的人,几乎都被包涵体折磨过:诱导前满心期待,跑完SDS-PAGE一看,目标条带全在沉淀里,上清干干净净。你怀疑载体、怀疑菌株、怀疑人生。其实大部分包涵体问题,根子在诱导温度这一环——温度选错,后面怎么优化都白搭。这篇教程按实验流程拆成6步,从低级错误到进阶方案,给你一条能直接照着做的排查路径。含温度梯度、IPTG浓度、裂解对照的完整参数。
第一步:先别急着优化,这几个低级错误占了三成
新手的包涵体,很多时候不是"表达太强",而是操作细节崩了。
- 过夜菌直接接种诱导:从4°C拿出的过夜菌OD600常到3.0以上,直接加IPTG,菌体状态老化、代谢已经跑偏。解决:按1:100转接到新鲜LB,37°C 220 rpm摇到OD600 0.6–0.8再诱导。
- IPTG一把加到1 mM甚至5 mM:浓度越高表达越猛,也越容易堆成沉淀。解决:先降到0.1–0.3 mM试一轮。
- 37°C诱导过夜(16–20 h):菌体进入稳定期后蛋白酶释放、pH下降,目标蛋白降解或聚集。解决:37°C诱导控制在3–4 h,要过夜就把温度降到16–20°C。
- 甘油菌直接划板就接液体培养,抗生素忘了加或浓度不足:质粒丢失,表达量低,你却在拼命优化温度。解决:LB加卡那霉素50 μg/mL(或对应抗性),平板新鲜划线,别用放了两个月的板子。
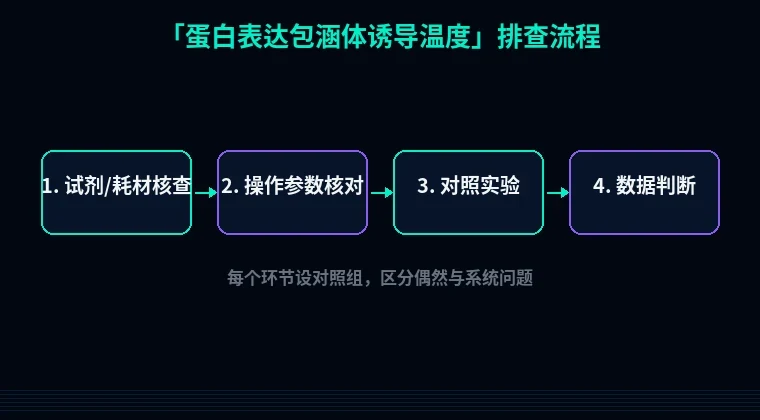
这四条对一遍只要十分钟,先排掉它们再谈别的。
第二步:按流程分模块系统排查
模块A:诱导前——种子液和培养基
1. 种子液活化不足
现象:诱导后菌长得慢,OD600 3 h只涨0.2,最终表达量极低且全在沉淀。
原理:刚划板的单菌落直接接5 mL液体,菌还没从平板状态恢复,比生长速率低,此时诱导,蛋白折叠机器(GroEL/ES、DnaK)表达水平也低。
解决步骤:单菌落接5 mL LB,37°C 220 rpm过夜12–16 h;按1:100转接50 mL新鲜LB;37°C摇至OD600 0.6–0.8(约2–3 h)。
验证方法:测OD600,同时留1 mL诱导前样品跑胶做对照,确认诱导前无泄漏表达。
2. 培养基pH和碳源
现象:TB培养基里长得快但包涵体比例更高;LB里加了0.5%葡萄糖后几乎不表达。
原理:葡萄糖走PTS系统,引起 cAMP 下降和乙酸积累,抑制 lac 启动子;TB营养太足,菌长得过旺,蛋白合成速率超过折叠速率。
解决步骤:常规用LB,pH调到7.2–7.4;需要高密度时用TB但诱导温度必须同步降下来;培养基里别额外加葡萄糖。缓冲体系可加50 mM Tris-HCl(pH 7.4)稳pH。
验证方法:诱导前后各测一次pH,若从7.2掉到6.0以下,说明产酸严重,换缓冲更強的培养基。
模块B:诱导参数——温度是核心变量
3. 诱导温度过高(最常见的坑)
现象:37°C诱导4 h,目标条带在沉淀中占70–90%,上清几乎看不到。
原理:高温下翻译速率快于折叠速率,新生肽链来不及折叠就被疏水区互相"粘"住;同时热休克蛋白系统被过载。大肠杆菌在37°C时蛋白合成速率约是16°C的3–5倍,折叠跟不上就是必然结果。
解决步骤:做温度梯度,同一批转化菌分装4管,OD600 0.6时加IPTG 0.3 mM,分别放37°C 4 h、30°C 6 h、25°C 8 h、16°C 16–20 h(16°C那管转速降到180 rpm,时间拉长)。离心收菌,超声裂解后分别取上清和沉淀跑SDS-PAGE。
验证方法:看目标条带在上清/沉淀的分配比例。多数可溶性蛋白在16–25°C能明显往上清转移。注意低温表达量会降低,通常降30–50%,用延长诱导时间(16–20 h)补回来。
4. IPTG浓度过高
现象:0.5–1 mM IPTG诱导,包涵体比例高;降到0.05 mM反而上清有带。
原理:lacUV5启动子被饱和占据,转录速率拉满,mRNA过量,翻译通量超出伴侣系统处理能力。
解决步骤:固定温度(比如16°C),IPTG梯度设0.05、0.1、0.3、0.5 mM,各诱导16 h,跑胶比对上清/沉淀比例。
验证方法:以"上清中目标蛋白绝对量"为指标而不是比例,找到总量和可溶性的平衡点,常见落在0.1–0.3 mM。
5. 诱导时机和时长失控
现象:OD600 1.5才诱导,或诱导了24 h。
原理:诱导时OD过高,菌已接近稳定期,蛋白酶(如Lon、ClpP)活性高;诱导时间过长,菌体自溶释放蛋白酶,目标蛋白被降解成小片段。
解决步骤:OD600严格卡0.6–0.8;16°C诱导16–20 h,25°C 6–8 h,37°C 3–4 h;到点立刻4°C 5000×g离心10 min收菌,或直接液氮速冻菌体存-80°C。
验证方法:诱导后每2 h取样1 mL,跑时间梯度胶,判断目标条带从什么时候开始降解或转沉淀。
模块C:宿主与载体
6. 宿主菌伴侣系统不足
现象:换了低温、降了IPTG,沉淀里仍有大量目标蛋白。
原理:BL21(DE3)本身不带 extra 伴侣,折叠压力大时GroEL/ES、DnaK/J/GrpE不够用。
解决步骤:换用BL21(DE3) pLysS(降低本底)或共表达伴侣质粒(GroEL/ES + DnaK/J/GrpE,如pGro7、pG-KJE8,需加阿拉伯糖或四环素诱导);也可换Origami或SHuffle菌株促进二硫键形成。
验证方法:共表达组和不共表达组同时跑胶,看可溶性比例是否提升;若目标是含二硫键的蛋白,SHuffle中上清条带明显增强即说明折叠受限是主因。
7. 稀有密码子拖慢翻译
现象:目标蛋白是哺乳动物来源,表达量低且多为截短片段。
原理:大肠杆菌稀有密码子(AGG/AGA/CGA等)处核糖体停顿,翻译不同步,部分折叠的中间体聚集。
解决步骤:用密码子优化工具把序列按E. coli偏好重设计;或直接用Rosetta(DE3)补充稀有tRNA。
验证方法:优化前后同一条件表达,比对上清中全长条带的强度。
第三步:进阶疑难问题
8. 低温诱导反而没表达?可能是启动子或质粒问题
16°C诱导20 h,胶上连沉淀里都没条带。这种情况别继续降温度。先查质粒:重新转化 fresh 感受态,挑3个单菌落小摇,各自诱导;同时做IPTG 0 mM对照,看有没有泄漏表达。T7启动子在低温下转录效率本身下降,有些构建在16°C就是起不来,试20–25°C。
9. 双阶段温度切换法
先把菌在37°C摇到OD600 0.6–0.8,加IPTG后立即转入16–20°C继续摇16–20 h。菌体量有了,折叠时间也给了。这个方法对多数"37°C必沉淀、16°C全长太慢"的蛋白最实用,可溶性比例常能从20%提到60%以上。
10. 包涵体不是废料
实在拿不到可溶蛋白,走复性路线:菌体用50 mM Tris-HCl(pH 8.0)、150 mM NaCl、1 mM EDTA重悬,冰浴超声(功率30%,工作3 s间歇5 s,共10 min),4°C 12000×g离心20 min收沉淀;沉淀用含2 M尿素的缓冲液洗两次去杂蛋白,再用8 M尿素(或6 M盐酸胍)4°C溶解过夜;然后按1:50梯度透析到无变性剂缓冲液,4°C每次≥4 h,换液3次。复性率通常10–30%,但拿到活性蛋白就够了。
避坑总结 + 实操建议
三条核心结论:
1. 先降温,再降IPTG。温度是第一变量,16–25°C是绝大多数可溶表达的主战场,37°C只用来拿包涵体做抗原。
2. 别只看条带有没有,要看在上清还是沉淀。每次表达必须留上清/沉淀双样品,不然你根本不知道问题出在表达量还是折叠。
3. OD600 0.6–0.8诱导、到点立刻收菌。这两个数字管住了,一半的降解和聚集问题自动消失。
两个日常习惯:
- 每次表达都做一张"诱导前—诱导后—上清—沉淀"四泳道胶,拍照存档,条件写进实验记录(温度、IPTG浓度、时间、OD),下次优化有对比。
- 转化后的平板现划现用,4°C存放不超过2周;甘油菌每3个月重新划线验证表达,别拿一管冻了半年的菌反复用。
需要动手前先算一算?这些工具能省一轮实验
序列还没优化就上表达,等于闭眼开车。做构建前先用密码子优化工具按 E. coli 偏好重设计目标序列,把稀有密码子密度降下来;扩增引物用引物设计工具算 Tm 和 GC,避免因为引物二聚体导致克隆失败、白白浪费一轮表达验证;拿到可溶性数据后,如果需要换标签或调融合伴侣,用蛋白可溶性优化工具评估不同 N 端融合方案(MBP、SUMO、GST)对折叠的预测影响,比一管一管试要快得多。参数算清楚,再做温度梯度,成功率完全不一样。