来源:Metabolic engineering of plasmid-free Escherichia coli for enhanced biosynthesis of O-succinyl-L-homoserine(Biochemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
O-琥珀酰-L-高丝氨酸(OSH)是合成C4化学品的重要平台中间体,但已报道的高产菌株大多依赖质粒表达,带来代谢负担和抗生素使用问题。本研究以无质粒大肠杆菌为底盘,依次平衡主路通量、阻断有机酸支路、优化葡萄糖摄取、改造TCA循环相关途径并强化NADPH供给,最终获得菌株OSHFY-32。5 L罐补料分批发酵OSH滴度达132.28 g/L,50 L罐放大后达134.16 g/L,为目前无质粒菌株报道的最高水平。
研究背景
OSH在医药、农药、食品和饲料工业中应用广泛。它既是微生物合成L-甲硫氨酸的关键中间体——经OSH巯基转移酶催化可与甲硫醇一步反应生成L-甲硫氨酸和琥珀酸,原子经济性高,被视为L-甲硫氨酸绿色生物制造的潜力路线;也是琥珀酸、γ-丁内酯、高丝氨酸内酯、1,4-丁二醇等增值化学品的合成前体,同时还是除草剂L-草铵膦的重要前体。传统化学合成法以L-高丝氨酸为底物,先在0°C饱和NaHCO₃水溶液中与氯甲酸苄酯反应,经酸化得到N-苄氧羰基-L-高丝氨酸,再在无水吡啶中加热与琥珀酸酐酰化,路线繁琐且原子经济性差。微生物发酵法因此受到合成生物学领域越来越多的关注。然而,已报道的工程菌株多依赖质粒过表达关键基因,质粒带来的代谢负担与抗生素选择压力制约了工业化应用。本研究即针对这一瓶颈,构建无质粒、无诱导剂的OSH生产菌株。
研究方法
2.1 菌株与质粒
本研究使用的重组大肠杆菌菌株与质粒列于表1。实验室前期构建的工程菌株OSH17[2]作为亲本菌株,其由OSH16衍生而来,在yahK位点整合了额外一份Ptrc-metA11-yjeH表达盒。大肠杆菌DH5α用于质粒构建。pTarget-X、pCas和pTrc99A分别用于基于CRISPR/Cas的基因组编辑和基因过表达。亲本菌株OSH17不含生产表达质粒,关键OSH生物合成基因整合于基因组中;而OSH23[2]携带由pTrc99A衍生的表达metA11-yjeH的质粒,因此作为携质粒对照菌株使用。
【数据】菌株:OSH17(亲本,无质粒)、OSH23(携pTrc99A-metA11-yjeH质粒对照)、DH5α(质粒构建);质粒:pTarget-X、pCas、pTrc99A;整合位点:yahK;启动子:Ptrc;基因:metA11、yjeH
2.2 遗传操作
大肠杆菌W3110的基因组编辑采用CRISPR-Cas9系统进行。质粒通过电转化导入,编辑效率通过测序验证[13]。本研究所用引物列于支持信息表S2。
【数据】宿主:E. coli W3110;编辑系统:CRISPR-Cas9;转化方式:电转化;验证方法:测序;引物:表S2(原文未详述具体序列)
2.3 摇瓶培养
摇瓶培养基含25 g/L葡萄糖、16 g/L (NH₄)₂SO₄、10 g/L酵母提取物、2 g/L甜菜碱盐酸盐、1 g/L KH₂PO₄、0.5 g/L MgSO₄、0.23 g/L L-苏氨酸、0.2 g/L L-异亮氨酸,以及1‰金属离子(0.0124 g/L FeSO₄·7H₂O、0.005 g/L MnSO₄、0.0045 g/L ZnSO₄)和微量氨基酸(0.003 g/L L-谷氨酸、0.004 g/L L-精氨酸)。挑取单菌落接种于10 mL LB培养基,37°C、220 rpm培养12 h。种子液以1%(v/v)接种量转接至含20 mL培养基的500 mL摇瓶中。接种时加入0.5 g CaCO₃,并按需补加50 mg/L硫酸卡那霉素和0.5 mmol/L IPTG。30°C培养48 h后取样分析。
【数据】培养基:25 g/L葡萄糖、16 g/L (NH₄)₂SO₄、10 g/L酵母提取物、2 g/L甜菜碱盐酸盐、1 g/L KH₂PO₄、0.5 g/L MgSO₄、0.23 g/L L-苏氨酸、0.2 g/L L-异亮氨酸、1‰金属离子、微量氨基酸;种子培养:LB、37°C、220 rpm、12 h;接种量:1%(v/v);摇瓶:500 mL装20 mL;CaCO₃:0.5 g;卡那霉素:50 mg/L;IPTG:0.5 mmol/L;培养:30°C、48 h
2.4 生物反应器补料分批发酵
5 L和50 L发酵的初始培养基与摇瓶培养基相同。补料培养基含500 g/L葡萄糖、8 g/L (NH₄)₂SO₄、10 g/L酵母提取物、2 g/L甜菜碱盐酸盐、12.5 g/L KH₂PO₄、0.5 g/L MgSO₄、1 g/L L-苏氨酸、2 g/L L-异亮氨酸、1‰金属离子及微量氨基酸。发酵过程采用分阶段控制策略,包括快速细胞生长阶段和高效OSH生产阶段。初始阶段(OD₆₀₀ < 10)维持37°C以促进细胞快速生长;此后生产阶段(OD₆₀₀ ≥ 10)降温至30°C,使代谢通量转向OSH生物合成。当细胞生长减慢、活力下降时,在生产阶段每隔8–10 h按初始发酵液体积(20 L发酵为每次200 mL)的1%(v/v)补加含23 g/L L-苏氨酸、20 g/L L-异亮氨酸和20 g/L L-甲硫氨酸的氨基酸溶液。补加L-苏氨酸、L-异亮氨酸和L-甲硫氨酸基于亲本菌株的营养缺陷型特征,用以支持细胞生长并维持发酵过程中的生理活性。发酵36 h后停止补加,共补加三次,累计补加体积约600 mL。全程用50%氨水维持pH 6.8 ± 0.2。通气与搅拌速率调整以维持溶氧(DO)水平:前期50%–55%,24 h后约20%–25%。当发酵罐中葡萄糖浓度降至3 g/L以下时启动补料。5 L补料分批发酵采用DO-stat补料策略,50 L发酵则采用阶梯调整补料策略。根据5 L发酵观察到的葡萄糖消耗特征及20 L初始工作体积,50 L罐初始补料速率设为约15 mL/h,随后每隔4–6 h根据残糖测定和细胞生长调整补料速率,维持残糖浓度0.2–1.0 g/L。5 L罐搅拌转速400–750 rpm,50 L罐250–500 rpm,两尺度通气量均为2 vvm。
【数据】补料培养基:500 g/L葡萄糖、8 g/L (NH₄)₂SO₄、10 g/L酵母提取物、2 g/L甜菜碱盐酸盐、12.5 g/L KH₂PO₄、0.5 g/L MgSO₄、1 g/L L-苏氨酸、2 g/L L-异亮氨酸、1‰金属离子;阶段温度:OD₆₀₀<10为37°C,OD₆₀₀≥10为30°C;补加液:23 g/L L-苏氨酸、20 g/L L-异亮氨酸、20 g/L L-甲硫氨酸,1%(v/v),每8–10 h一次,共3次,累计约600 mL;pH:6.8±0.2(50%氨水);DO:前期50%–55%,24 h后20%–25%;补料触发:残糖<3 g/L;残糖控制:0.2–1.0 g/L;50 L初始补料速率:约15 mL/h;搅拌:5 L为400–750 rpm,50 L为250–500 rpm;通气:2 vvm
2.5 NADP⁺/NADPH检测
胞内NADP⁺和NADPH水平采用WST-8法测定。收集样品后立即加入提取缓冲液。8,000 rpm、4°C离心5 min后收集上清,按说明书操作分析。总NADP⁺/NADPH含量由450 nm吸光度计算。定量NADPH时,提取液于60°C加热30 min分解NADP⁺,再按相应方案分析。NADPH和NADP⁺浓度由吸光度计算,NADP⁺含量由总NADP⁺/NADPH含量减去NADPH得到。每个样品分析三次。
【数据】方法:WST-8法;离心:8,000 rpm、4°C、5 min;检测波长:450 nm;NADP⁺分解:60°C、30 min;重复:每样品3次
2.6 分析方法
细胞生长通过分光光度计测定发酵液600 nm吸光度(OD₆₀₀)监测。残糖浓度采用3,5-二硝基水杨酸(DNS)法于540 nm测定[20]。OSH经邻苯二甲醛(OPA)柱前衍生后,用高效液相色谱(HPLC,Agilent Technologies)配C18柱(ODS,5 μm,4.6 mm × 250 mm)定量。有机酸用HPLC于HPX-87H柱、60°C分析,流动相为5 mmol/L H₂SO₄,检测波长210 nm。
【数据】细胞生长:OD₆₀₀;残糖:DNS法、540 nm;OSH:HPLC-C18柱(ODS,5 μm,4.6 mm×250 mm)、OPA柱前衍生;有机酸:HPX-87H柱、60°C、5 mmol/L H₂SO₄流动相、210 nm检测
2.7 统计分析
每个数据集至少来自三次独立重复,误差棒表示标准差。统计分析采用单因素方差分析(ANOVA),p值≤0.05视为具有统计学显著性。图中显著性以p ≤ 0.05、p ≤ 0.01、p ≤ 0.001、****p ≤ 0.0001表示。各单独比较所用参照菌株在相应图注中注明。
【数据】重复:≥3次独立重复;误差:标准差;统计方法:单因素ANOVA;显著性阈值:p≤0.05;标记:p≤0.05、p≤0.01、p≤0.001、****p≤0.0001
研究结果
3.1 平衡OSH合成主路代谢通量
前期构建的菌株OSH17[2]通过阻断降解与竞争途径并过表达metL,已具备改善的OSH生物合成能力;同时通过提高ppc、aspC、aspA和gdhA*的表达增强了前体L-天冬氨酸的积累。此外,关键酶基因metA11和外排基因yjeH在trc启动子下共表达并整合入基因组。然而补料分批发酵显示,OSH17仍受限于关键酶催化效率不足和前体通量分配失衡,OSH生物合成通量欠佳。虽然可采用质粒过表达增强下游合成能力,但本研究聚焦于在保持无质粒生产体系的前提下通过基因工程提高OSH产量。为在不引入生产表达质粒的情况下进一步提高OSH产量,从无质粒亲本菌株OSH17中敲除lacI以解除对trc启动子的阻遏,从而使相应生物合成基因实现组成型表达。所得菌株OSH17ΔlacI命名为OSHFY-0。HST催化L-高丝氨酸与琥珀酰辅酶A转化为OSH,是OSH生物合成的关键限速酶,但其表达和活性受转录阻遏蛋白MetJ及L-甲硫氨酸、S-腺苷甲硫氨酸等终产物严格调控。metA11编码的HST变体(Q64E)已被报道对反馈抑制不敏感[21]。为将碳通量从L-高丝氨酸导向OSH,将额外拷贝的metA11-yjeH整合入基因组,使拷贝数从2份增至5份,获得菌株OSHFY-1至OSHFY-3。如图2B所示,摇瓶发酵显示OSH产量随Ptrc-metA11-yjeH拷贝数增加而提高,OSHFY-1和OSHFY-2分别达到9.82 g/L和11.56 g/L。OSHFY-2的OSH滴度略高于携质粒菌株OSH23,且未检测到L-高丝氨酸积累。然而,拷贝数进一步增至5份的OSHFY-3使OSH滴度降至8.99 g/L,细胞生物量亦下降。这一降低可能与基因剂量增加带来的代谢负担有关,但重复表达盒间的启动子干扰、染色体整合位点效应及潜在遗传不稳定性等其他因素亦不能排除[22]。上述结果表明,在受试摇瓶条件下,适当优化基因拷贝数可获得与质粒过表达相当的OSH产量。因此,在所测试的摇瓶条件下,携带四份metA11–yjeH的OSHFY-2在评估的拷贝数变体中OSH滴度最高。
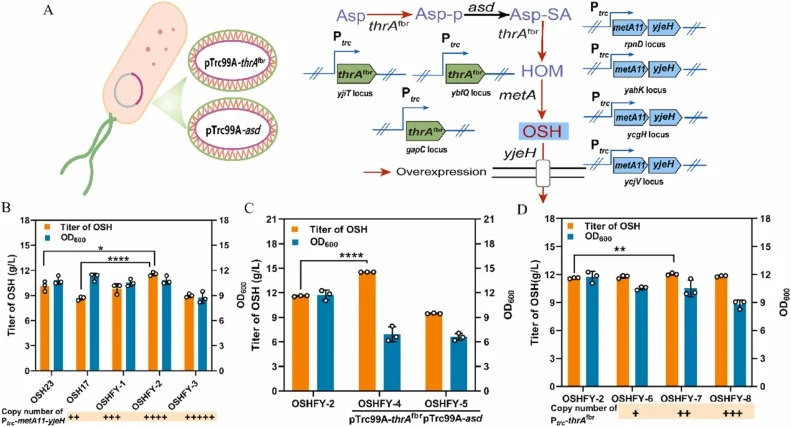
前期工作已通过代谢工程成功将碳通量从PEP-PYR-OAA节点导向L-天冬氨酸生物合成,但发酵中仍有少量L-天冬氨酸积累,说明L-天冬氨酸向下游L-高丝氨酸的转化不足以匹配增强的上游前体供给。因此,增强OSH生物合成需强化下游途径,使上游前体供给与产物生成相协调。如图2A所示,L-天冬氨酸经天冬氨酸激酶(AK I、AK II、AK III,分别由thrA、metL、lysC编码)、天冬氨酸半醛脱氢酶(ASD,由asd编码)和高丝氨酸脱氢酶(HSD I、HSD II,分别由thrA和metL编码)依次转化为L-高丝氨酸。我们推测增强这些关键酶的表达可平衡从L-天冬氨酸到L-高丝氨酸的碳通量,从而提高OSH生物合成通量。为验证该假设,将抗反馈抑制突变体thrAfbr(S345F)[23]和asd分别克隆入pTrc99A并导入OSHFY-2,获得菌株OSHFY-4和OSHFY-5。如图2C所示,OSHFY-4显著提高OSH滴度至14.53 g/L,较OSHFY-2提升25%;而OSHFY-5仅产9.48 g/L OSH,较亲本菌株下降18%。同时两株菌的生物量形成均明显受抑。这种抑制可能归因于过量碳通量被导向OSH生物合成,限制了细胞生长所需的L-天冬氨酸及其他前体供应[24]。asd过表达导致的滴度下降可能与潜在逆反应及胞内氧化还原失衡有关,二者均源于NADPH的过度消耗。为缓解质粒过表达带来的代谢负担,将额外三份thrAfbr依次整合入OSHFY-2的gapC、yjiT和ybfQ位点,分别获得OSHFY-6、OSHFY-7和OSHFY-8。如图2D所示,OSHFY-7的OSH滴度达到12.05 g/L。上述结果表明,以优化基因剂量进行thrAfbr染色体整合可有效增强OSH生物合成而不损害细胞生长,凸显了精细调控基因表达水平的重要性。过量表达酶并不必然提高产量,而须在产物生成与细胞生理状态之间建立最优平衡。
【数据】菌株:OSHFY-0(OSH17ΔlacI)、OSHFY-1至OSHFY-3(metA11-yjeH拷贝数递增)、OSHFY-4(pTrc99A-thrAfbr)、OSHFY-5(pTrc99A-asd)、OSHFY-6/7/8(thrAfbr整合于gapC/yjiT/ybfQ);摇瓶滴度:OSHFY-1 9.82 g/L、OSHFY-2 11.56 g/L、OSHFY-3 8.99 g/L、OSHFY-4 14.53 g/L(+25%)、OSHFY-5 9.48 g/L(−18%)、OSHFY-7 12.05 g/L;拷贝数:2→5份;突变:metA11 Q64E、thrA S345F;培养:摇瓶、30°C、48 h
3.2 阻断有机酸支路与调控葡萄糖摄取系统对OSH滴度的影响
OSH属于天冬氨酸家族化合物,其生物合成与EMP途径及TCA循环密切相关。限氧条件下,大肠杆菌倾向于积累甲酸、乙酸和乳酸等酸性副产物。这些副产物不仅降低碳源利用效率,还扰乱胞内能量代谢和氧化还原稳态,从而抑制目标产物合成[25,26]。代谢上,OSH合成需要糖酵解持续供给磷酸烯醇式丙酮酸(PEP)和丙酮酸(PYR),并与TCA循环偶联以提供前体、能量和还原力。然而PYR同时也是多个有机酸副产物途径的中心分支节点(图3A)。乳酸可经乳酸脱氢酶或甲基乙二醛途径生成[27],甲酸主要经PYR甲酸裂解酶途径生成,乙酸可经PYR氧化酶途径形成,并进一步受乙酰辅酶A/乙醛辅酶A代谢及胞内氧化还原状态影响[28]。代谢失调或底物失衡导致的乙酸、乳酸等有机酸过度积累,不仅使碳通量偏离PYR来源的前体供给,还破坏细胞能量代谢,最终降低目标产物生成。因此,在OSHFY-7中分别敲除adhE、mgsA、pflB、poxB和ldhA,获得菌株OSHFY-9至OSHFY-13;并迭代敲除这五个基因构建OSHFY-14。如图3B所示,单基因敲除未显著提高OSH滴度,表明在当前代谢背景下阻断单一副产物途径不足以实质性改变全局碳通量分布。该结果提示大肠杆菌中心代谢网络具有较强补偿能力:某途径被阻断后,碳通量可能经其他平行路线分流,从而削弱局部途径阻断的有利效应。迭代敲除……
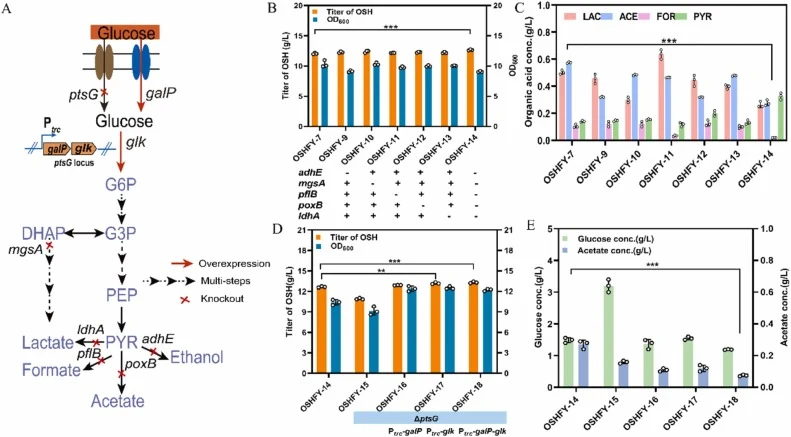
【数据】敲除基因:adhE、mgsA、pflB、poxB、ldhA;菌株:OSHFY-9至OSHFY-13(单敲除)、OSHFY-14(五基因迭代敲除);结果:单基因敲除未显著提高OSH滴度(原文该段具体数值未详述,节选止于"迭代敲除")
讨论与解读
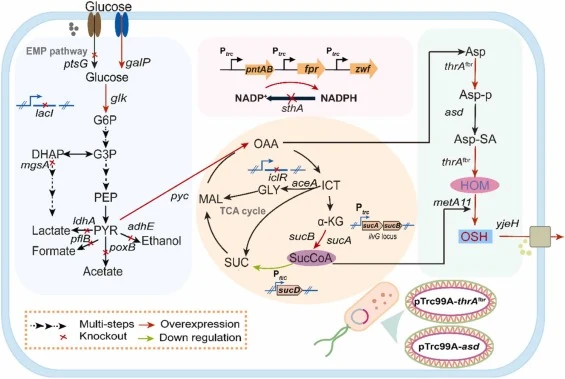
本研究构建了无质粒、无诱导剂的OSH生产工程菌。策略上先平衡主路通量,再通过阻断副产物途径和优化底物摄取系统改善碳源利用,随后调控涉及琥珀酰辅酶A代谢的TCA循环相关途径,并通过改造NADPH相关途径提升NADPH供给以进一步促进OSH积累。5 L罐补料分批发酵OSH滴度132.28 g/L,葡萄糖得率0.55 g/g,生产率1.28 g/L/h;50 L罐放大后滴度134.16 g/L,得率0.54 g/g,生产率1.26 g/L/h,滴度、得率和生产率均超过文献报道的无质粒菌株最高水平。结果展示了该工程菌在放大发酵规模下高产OSH的潜力,可为其他天冬氨酸家族氨基酸的微生物细胞工厂构建提供参考。不过,其长期遗传稳定性和生产稳定性仍需进一步评估。
编译者解读:该研究的亮点在于全程不用质粒——把关键基因以受控拷贝数整合到染色体,用lacI敲除实现组成型表达,避开了质粒丢失、抗生素选择和诱导剂成本这三类工业化痛点。50 L放大后指标不降反稳,说明策略具备可放大性。局限也很清楚:拷贝数与整合位点的选择仍偏经验性,五基因迭代敲除后节选未给出完整通量数据,长期传代稳定性作者自己亦承认待评估。对合成生物学而言,这是一条"去质粒化"的务实路线,但离理性设计还有距离。
参考来源
Biochemical Engineering Journal, 2026. DOI: 10.1016/j.bej.2026.110465
DOI: 10.1016/j.bej.2026.110465