来源:Systematic metabolic engineering for trans-aconitic acid production in Aspergillus niger(Synthetic and Systems Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
反式乌头酸(TAA)是兼具杀线虫活性与聚合物合成价值的生物基化学品。本研究以工业柠檬酸高产菌黑曲霉为底盘,通过异源表达乌头酸外排蛋白AexA打通分泌瓶颈,进而设计"推—拉"策略:线粒体MttA将顺式乌头酸输出至胞质,由TbrA异构化为TAA,同时强化胞质乙酰辅酶A供给。最终菌株在5 L生物反应器中6天产总乌头酸34.30 g/L,TAA占比超过90%。
研究背景
乌头酸存在顺式(CAA)与反式(TAA)两种几何异构体,功能迥异。CAA是TCA循环中乌头酸酶催化柠檬酸与异柠檬酸互变时的瞬时中间体;TAA则可通过CAA在生理条件下的自发异构化生成,或由乌头酸-Δ-异构酶(如TbrA)定向催化生成,后者特异性高、可实现TAA的定向富集。TAA兼具杀线虫活性与对褐飞虱的拒食作用,在常规农药监管趋严的背景下,是绿色植保的有潜力分子。微生物发酵被视为TAA可持续制造的最可行路线,不同底盘各有优势与局限。黑曲霉作为工业柠檬酸生产菌,具备成熟的发酵工艺与安全属性,其天然碳通量大量导向柠檬酸,为向下游衍生物重定向提供了理想起点。本研究即以此为出发点,系统改造黑曲霉以建立高效TAA细胞工厂。
研究方法
2.1 菌株与培养条件
本研究使用的黑曲霉菌株详见补充表S1。菌株S1075(ΔoahA,ΔcexA)为黑曲霉ATCC 1015的衍生株,作为后续所有遗传改造的亲本菌株。大肠杆菌JM109用于质粒构建与扩增,于37 °C在LB培养基中培养。孢子制备、转化子筛选及突变体表型分析均在马铃薯葡萄糖琼脂(PDA)上进行,参照已有方案执行。平板培养于28 °C,液体发酵于35 °C。必要时在培养基中添加250 μg/mL潮霉素B或100 μg/mL卡那霉素用于菌株构建中的筛选及质粒维持。
摇瓶实验所用原始乌头酸发酵培养基改编自黑曲霉产衣康酸方案并作修改。初始基础发酵培养基每升含:100.0 g葡萄糖、2.0 μg生物素、2.0 g (NH4)2SO4、50.0 mg二水合柠檬酸钠、100.0 mg KH2PO4、4.0 mg MgSO4·7H2O、2.0 mg CaCl2·2H2O、20.0 μg一水合柠檬酸、20.0 μg ZnSO4·7H2O、4.0 μg Fe(NH4)2(SO4)2·6H2O、1.0 μg CuSO4·5H2O、0.2 μg H3BO3、0.2 mg Na2MoO4及1 M MES,pH调至6.5。该原始培养基为3.5节优化实验的起点。
【数据】菌株:S1075(ΔoahA,ΔcexA)、大肠杆菌JM109;培养基:LB、PDA、基础发酵培养基;温度:大肠杆菌37 °C、平板28 °C、液体发酵35 °C;抗生素:潮霉素B 250 μg/mL、卡那霉素100 μg/mL;葡萄糖:100.0 g/L;pH:6.5;MES:1 M
2.2 质粒构建
本研究所用质粒列于补充表S1,相应引物见补充信息表S1。质粒构建使用南京诺唯赞(C112-01/02)ClonExpress II一步克隆试剂盒。aexA、Ate-acoA、mttA、pk、pta、adiA与tbrA的序列由苏州金唯智合成;Ang-acoA序列由菌株S1075 cDNA扩增获得,SC-acoA序列由酿酒酵母cDNA扩增获得。表达aexA、acoA、mttA、pk、pta、tbrA与adiA的质粒均按前人研究相同策略、以pLH454为骨架构建。以aexA过表达质粒pLH2156为例:将aexA编码序列插入pLH454中甘油醛-3-磷酸脱氢酶启动子(PgpdA)下游,以合成基因为模板、引物对1/2进行PCR扩增,产物连接至经BamHI与EcoRI酶切的pLH454,获得重组质粒pLH2156。按相同方法构建了Ang-acoA C表达质粒pLH2184、Ang-acoA M表达质粒pLH2185、Ate-acoA C表达质粒pLH2186、Ate-acoA M表达质粒pLH2187、Sc-acoA C表达质粒pLH2188、Sc-acoA M表达质粒pLH2189、mttA表达质粒pLH2331、pk-pta共表达质粒pLH2076、tbrA表达质粒pLH2342及adiA表达质粒pLH2343。
【数据】质粒骨架:pLH454;启动子:PgpdA;酶切位点:BamHI、EcoRI;质粒编号:pLH2156、pLH2184–pLH2189、pLH2331、pLH2076、pLH2342、pLH2343;试剂盒:ClonExpress II(C112-01/02)
2.3 菌株构建
采用PEG介导的原生质体转化法结合Cre-loxP系统切除hph抗性标记,构建一系列黑曲霉重组菌株。所有质粒均通过原生质体转化导入受体菌。转化后,将转化子在含多西环素(30 μg/mL)的PDA平板上培养以切除两侧带loxP位点的hph标记基因,随后筛选潮霉素B敏感菌落,并用引物hph-F/hph-R经PCR确认。基因过表达使用携带目标编码序列、由PgpdA与PpkiA控制的质粒。转化子在含250 μg/mL潮霉素B的PDA平板上于28 °C筛选5天。对潮霉素B抗性菌落进一步在含250 μg/mL潮霉素B的PDA平板上验证,并通过PCR确认表达盒整合正确。
菌株构建步骤如下:首先将过表达质粒pLH2156导入黑曲霉S1075获得S4060,切除hph后得到S4096。由S4096分别过表达定位于不同细胞器的不同来源acoA基因,获得菌株S4152、S4154、S4156、S4158、S4160与S4162。随后从S4154切除hph标记得到S4216。以S4216为受体,用pLH2076转化构建pk-pta共过表达突变株S4370,切除hph后获得S4373。S4373再用pLH2331转化获得S4420,并由此衍生S4423。以S4423为亲本,分别过表达adiA与tbrA,得到菌株S4427与S4430。从S4430切除hph标记得到S4492。以S4492为起始菌株,分别引入aexA、mttA与tbrA三个关键基因的第二个拷贝,生成菌株S4686、S4688与S4690。从S4690切除hph标记得到S5120。最终以S5120为亲本,获得携带三个tbrA基因拷贝的菌株S5126。所有表达盒均稳定整合于黑曲霉染色体,生产菌株未使用游离质粒,因此工程化通路无需持续抗生素选择即可维持。
【数据】转化方法:PEG介导原生质体转化;标记切除:Cre-loxP,多西环素30 μg/mL;筛选:潮霉素B 250 μg/mL、28 °C、5天;菌株链:S1075→S4060→S4096→S4152/S4154/S4156/S4158/S4160/S4162;S4154→S4216→S4370→S4373→S4420→S4423→S4427/S4430→S4492→S4686/S4688/S4690→S5120→S5126
2.4 关键基因转录分析
取适量RNA按反转录酶说明书反转录为cDNA,随后进行RT-PCR。qRT-PCR先按试剂盒方案反转录合成cDNA,再用TB Green Premix Ex TaqII法配制反应体系,在Applied Biosystems StepOne™实时PCR系统热循环模块上完成定量反应。以黑曲霉肌动蛋白编码基因(act)为内参基因,所有反应设三个重复。各目标基因扩增的阈值循环(Ct)值对内参基因(act)Ct值归一化,选定菌株与亲本菌株间基因转录水平的相对变化用2−ΔΔCt法计算。
【数据】内参基因:act;反应重复:3次;定量方法:2−ΔΔCt;试剂:TB Green Premix Ex TaqII;仪器:Applied Biosystems StepOne™
2.5 黑曲霉摇瓶发酵
发酵与取样方案改编自已有方法。将2.0 × 10^6 孢子/mL的黑曲霉接种至装液50 mL乌头酸发酵培养基的250 mL三角瓶中,于35 °C、250 rpm条件下摇瓶培养。每日测定摇瓶中水分蒸发量并及时补足。发酵6天后取样检测乌头酸含量或残糖。
【数据】接种量:2.0 × 10^6 孢子/mL;装液量:50 mL/250 mL;温度:35 °C;转速:250 rpm;发酵时间:6天
2.6 黑曲霉生物反应器发酵
发酵方案改编自已有报道。将工程黑曲霉接种至含50 mL无MES乌头酸发酵培养基的250 mL三角瓶中制备种子液,35 °C、250 rpm培养24 h。种子液转入5 L生物反应器中2.7 L发酵培养基,35 °C培养7天。发酵期间评估不同培养基配方对AA产量的影响。搅拌转速设为250 rpm,通气量维持3 vvm(每分钟每体积培养基通入的空气体积)。每24 h收集发酵液,上清用于AA定量,菌丝体用预称重滤纸收集。
【数据】种子液:50 mL/250 mL、35 °C、250 rpm、24 h;反应器体积:5 L;装液量:2.7 L;温度:35 °C;时间:7天;搅拌:250 rpm;通气:3 vvm;取样间隔:24 h
研究结果
3.1 引入乌头酸外排蛋白解除反馈抑制并揭示下游瓶颈
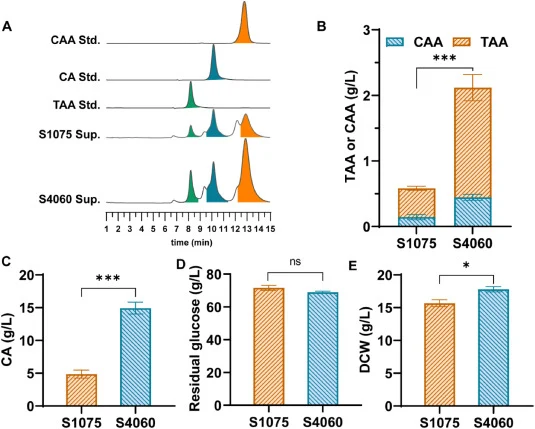
黑曲霉虽具备合成乌头酸的固有能力,但天然产量极低。亲本菌株S1075源自柠檬酸高产菌,其中主要柠檬酸外排基因cexA已被敲除,以降低背景柠檬酸分泌并将碳通量重定向至乌头酸合成。摇瓶发酵6天后,S1075仅产0.15 g/L CAA与0.44 g/L TAA,总乌头酸滴度0.58 g/L(图2A、B)。TAA占总AA的75.2%,表明即使无外源异构酶,培养过程中CAA向TAA的自发异构化依然发生。这证实黑曲霉内源可产生并分泌乌头酸,只是水平很低。
膜转运蛋白对黑曲霉有机酸生产不可或缺。以往研究多聚焦于改造胞内合成通路与优化发酵工艺,然而缺乏高效转运系统时,有机酸在胞内积累,造成代谢通路反馈抑制、细胞毒性,最终降低生产效率。乌头酸转运的分子机制尚不清楚,黑曲霉中亦未鉴定出功能明确的乌头酸外排蛋白。鉴于高效分泌对有机酸生产的关键作用,本研究尝试功能性地引入已证实具乌头酸外排活性的异源转运蛋白。Magnuson等报道,假地霉中aexA编码的蛋白具乌头酸转运活性,过表达aexA可使乌头酸滴度较野生型提高5倍。黑曲霉中或存在同源转运蛋白候选,但该宿主中尚无经实验验证活性的乌头酸转运蛋白。因此,本研究引入功能已表征的假地霉AexA,以在黑曲霉中建立有效的乌头酸分泌模块。
将表达盒PgpdA::aexA::TtrpC整合至S1075(ΔcexA)基因组,获得aexA过表达菌株S4060。对比摇瓶发酵显示,尽管敲除了cexA,S1075在6天后仍分泌4.87 g/L柠檬酸,证实存在经替代途径的残余柠檬酸外排(图2A、C)。相反,S4060的乌头酸产量显著提升:CAA与TAA滴度分别达0.45 g/L与1.67 g/L,总AA浓度2.12 g/L。相较S1075,CAA、TAA与总AA分别提高3.0倍、3.8倍与3.7倍(图2A、B),TAA占比升至78.8%。这表明AexA在黑曲霉中作为有效的乌头酸外排蛋白发挥作用。S4060的柠檬酸分泌亦大幅增加至14.93 g/L,较S1075提高3.1倍(图2A、C)。同时,S4060残糖由S1075的71.73 g/L降至69.03 g/L,总AA对消耗葡萄糖的质量得率由0.021提升至0.068 g/g。细胞干重中度增加13.6%(图2D、E)。
有机酸产量、碳利用与生物量的协同提升,与"AexA介导的外排可能缓解胞内三羧酸积累、进而减轻中心代谢反馈抑制"的推断相符,但确认该解释仍需直接测定胞内代谢物浓度。S4060上清中柠檬酸与乌头酸同时升高值得关注。这种共外排表型可能反映AexA的底物宽泛性——例如AexA除乌头酸外还可能转运柠檬酸或其他TCA中间体;另一种可能是AexA介导的乌头酸外排缓解了胞内对柠檬酸合酶的反馈抑制,从而增强柠檬酸合成,过量柠檬酸再经cexA缺失背景中仍存在的内源载体排出。两种机制并不互斥,现有数据无法区分。需将纯化AexA重构于脂质体进行体外转运实验,才能最终确定其底物谱。无论机制如何,该结果意味着通过单一转运蛋白改造乌头酸分泌可对TCA循环代谢网络产生更广泛影响,AexA因而成为调控TCA循环通量分布的潜在关键节点,为过量生产TCA衍生化合物提供了新策略。
S4060中大量柠檬酸积累亦指向下游瓶颈:乌头酸酶催化柠檬酸向CAA的转化似乎限制了整体通量。S1075原本因柠檬酸高产而被选育,其工程衍生株很可能保留了进入TCA循环的强碳通量,但下游酶促步骤尚未优化到与之匹配。因此,提升柠檬酸向CAA转化效率仍是进一步提高黑曲霉乌头酸产量的关键挑战,或需通过蛋白质工程改造乌头酸酶以移动反应平衡或提高催化效率,并优化辅因子供给。未来,筛选或改造对乌头酸特异性更高的AexA变体,可进一步减少柠檬酸共生产、提高过程选择性。
【数据】菌株:S1075、S4060;时间:6天;S1075:CAA 0.15 g/L、TAA 0.44 g/L、总AA 0.58 g/L、TAA占比75.2%、柠檬酸4.87 g/L、残糖71.73 g/L;S4060:CAA 0.45 g/L、TAA 1.67 g/L、总AA 2.12 g/L、TAA占比78.8%、柠檬酸14.93 g/L、残糖69.03 g/L;提升倍数:CAA 3.0倍、TAA 3.8倍、总AA 3.7倍、柠檬酸3.1倍;得率:0.021→0.068 g/g;DCW增幅:13.6%
3.2 仅过表达乌头酸酶而缺乏产物移除不足以提升产量
前文表明柠檬酸向CAA的转化很可能是瓶颈。为评估增加acoA基因剂量能否缓解该限制,设计了六个表达构建体:基因分别源自黑曲霉(Ang)、土曲霉(Ate)与酿酒酵母(Sc),每个变体分别靶向胞质(C)或线粒体(M)。构建体分别导入菌株S4096——S4060的无标记衍生株,产总AA 2.12 g/L、TAA占比78.8%。所得菌株为S4152(Ang-acoA C)、S4154(Ang-acoA M)、S4156(Ate-acoA C)、S4158(Ate-acoA M)、S4160(Sc-acoA C)与S4162(Sc-acoA M)。以S4096为对照进行摇瓶发酵,6天后分析有机酸谱。
胞质过表达一致降低总AA产量(图3A)。S4152、S4156与S4160分别产总AA 1.67 g/L、1.62 g/L与1.76 g/L,较S4096分别下降21%、24%与17%。这些菌株CAA维持较低(0.35~0.43 g/L),柠檬酸略高于S4096(14.93 g/L),为15.03~15.10 g/L;DCW增至19.3~20.7 g/L(图S1A);TAA/AA比维持在79%附近。结果表明胞质乌头酸酶过表达不改善乌头酸产量,反而可能使少量碳流偏离通路。
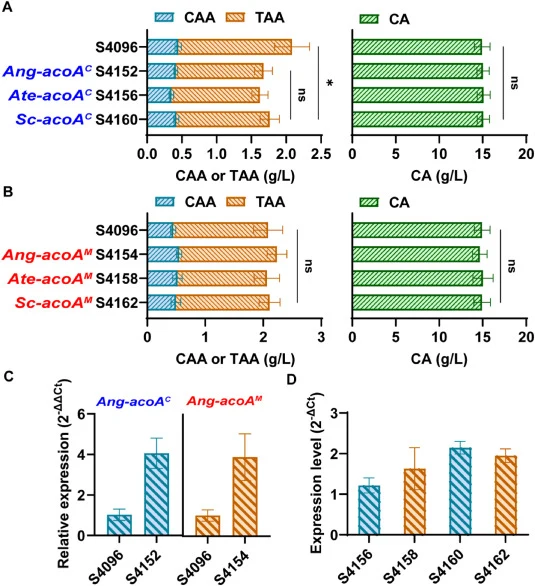
线粒体过表达则变化极小(图3B)。S4154(Ang-acoA M)在六个工程菌株中滴度最高:CAA 0.55 g/L、TAA 1.69 g/L、总AA 2.24 g/L,仅较S4096提高5.7%。柠檬酸(14.67 g/L)与残糖(78.17 g/L)无显著变化,DCW增加9.6%至19.50 g/L(图S1B)。S4158与S4162相对S4096差异更小。RT-qPCR证实引入的acoA基因被活跃转录。
【数据】菌株:S4096(对照)、S4152、S4154、S4156、S4158、S4160、S4162;时间:6天;S4096总AA:2.12 g/L;胞质株总AA:S4152 1.67 g/L、S4156 1.62 g/L、S4160 1.76 g/L,降幅21%、24%、17%;胞质株CAA:0.35~0.43 g/L;胞质株柠檬酸:15.03~15.10 g/L;胞质株DCW:19.3~20.7 g/L;S4154:CAA 0.55 g/L、TAA 1.69 g/L、总AA 2.24 g/L、增幅5.7%、柠檬酸14.67 g/L、残糖78.17 g/L、DCW 19.50 g/L(+9.6%)
3.3 推—拉策略对乌头酸产量的影响
在明确线粒体为CAA积累最优区室、且单独过表达乌头酸酶不足后,研究构建了推—拉策略组合菌株。以S4216(OE-aexA,OE-Ang-acoA M)为起点,依次引入pk-pta(S4370)、mttA(S4420)、adiA(S4427)与tbrA(S4430),比较6天摇瓶发酵的AA滴度、CA滴度、残糖与DCW(图4)。
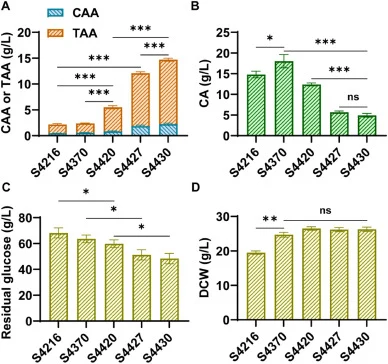
S4216为携带aexA与线粒体靶向Ang-acoA的菌株。在此基础上共过表达磷酸酮醇酶途径pk-pta(S4370)以强化胞质乙酰辅酶A供给,即"推"模块;引入线粒体MttA(S4420)将CAA输出至胞质,与胞质TbrA异构化形成"拉"模块。结果显示,仅引入mttA的S4420与亲本相比AA滴度变化有限;而进一步过表达tbrA的S4430使AA产量明显提升,表明TbrA催化的CAA→TAA异构化是拉模块生效的关键步骤。过表达adiA的S4427未见优于S4430的表现。上述比较说明,多拷贝或强表达的tbrA对将胞质CAA定向转化为TAA至关重要。
【数据】菌株:S4216、S4370、S4420、S4427、S4430;时间:6天;组合:S4216(OE-aexA,OE-Ang-acoA M)、S4370(+OE-pk-pta)、S4420(+OE-mttA)、S4427(+OE-adiA)、S4430(+OE-tbrA);具体滴度数值:原文该节图表数据未在节选中详述
3.4 关键基因拷贝数对乌头酸产量的影响
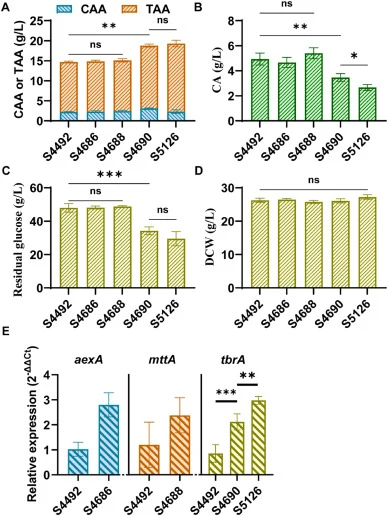
以S4492(OE-aexA,OE-Ang-acoA M,OE-pk-pta,OE-mttA,OE-tbrA)为基础,分别增加aexA、mttA与tbrA一个额外拷贝,获得S4686、S4688与S4690,比较6天摇瓶发酵的AA滴度、CA滴度、残糖与DCW,并用qRT-PCR分析基因相对转录水平(图5)。结果表明,增加tbrA拷贝的菌株在AA产量上表现最优,最终由S5120衍生出携带三个tbrA基因拷贝的菌株S5126。多拷贝tbrA是提升TAA产量的关键因素。
【数据】菌株:S4492、S4686、S4688、S4690、S5120、S5126;时间:6天;S4492组合:OE-aexA、OE-Ang-acoA M、OE-pk-pta、OE-mttA、OE-tbrA;S4686:S4492+额外一个拷贝;S5126:三个tbrA拷贝;具体滴度数值:原文该节图表数据未在节选中详述
3.5 培养基优化前后摇瓶发酵性能比较
对菌株S5126进行培养基优化,比较优化前后摇瓶发酵性能(图6)。优化后发酵表现提升,为后续生物反应器放大奠定基础。
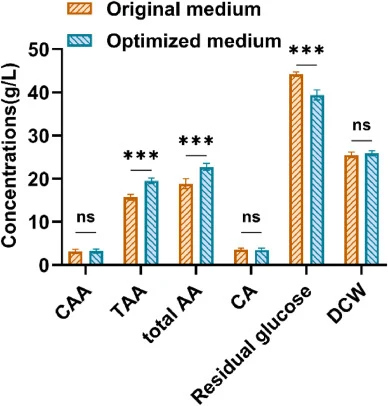
【数据】菌株:S5126;比较对象:优化前后培养基;具体数值:原文该节图表数据未在节选中详述
3.6 亲本菌株与工程菌株在5 L生物反应器中的比较
在5 L生物反应器中比较亲本菌株S1075与工程菌株S5126为期6天的发酵表现(图7)。S5126在5 L生物反应器中6天内产总乌头酸34.30 g/L,TAA占比超过90%,较亲本菌株S1075的0.88 g/L提高约39倍。
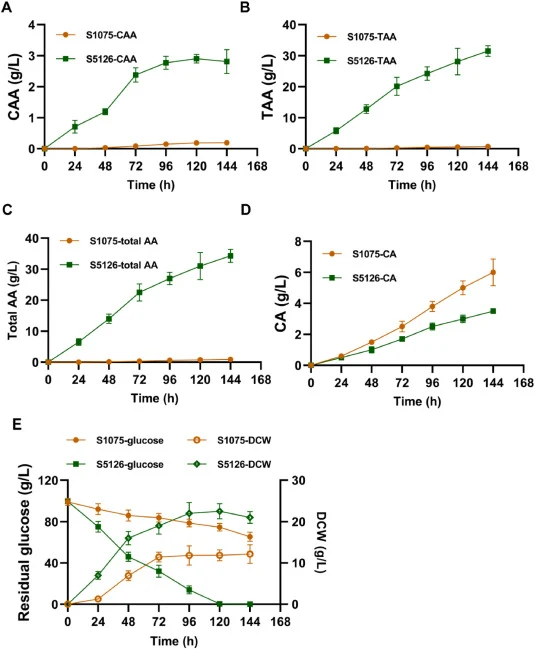
【数据】菌株:S1075、S5126;反应器:5 L;时间:6天;S5126总乌头酸:34.30 g/L;TAA占比:>90%;S1075:0.88 g/L;提升倍数:约39倍
讨论与解读
本研究将黑曲霉系统改造为专用于TAA生物合成的细胞工厂。最终菌株S5126在5 L生物反应器中产总乌头酸34.30 g/L,TAA占比超过90%,较亲本菌株S1075(0.88 g/L)提高约39倍。作者将本工作置于近期两项微生物TAA生产标志性研究——Geng等(2023)在土曲霉、Guo等(2026)在大肠杆菌——的背景下讨论其贡献与局限。柠檬酸是TCA循环中乌头酸的直接前体,作为大宗化学品虽市场成熟,但产业界正积极为其碳池寻找更高价值应用;将黑曲霉天然导向柠檬酸的巨量碳通量重定向至TAA等下游衍生物,兼具科学价值与经济潜力。本研究定位于利用黑曲霉无与伦比的工业成熟度与安全属性,建立稳健、可放大的TAA可持续生物合成平台。作者亦承认,土曲霉与假地霉是天然衣康酸生产者,碳通量本已导向顺式乌头酸,敲除cadA即可实现乌头酸积累;而黑曲霉则具有不同的代谢背景与优势。
编译者解读:该研究的亮点在于"区室化推—拉"设计——把CAA积累安排在线粒体、把异构化与产物形成放在胞质,用MttA跨膜输出把两个区室耦联起来,规避了乌头酸酶反应的热力学限制。方法上以拷贝数调优(三拷贝tbrA)而非单纯强启动子取胜,提示拉模块的通量匹配比表达强度更关键。局限在于柠檬酸共分泌仍高、AexA底物谱未明,且胞内代谢物数据缺失使反馈抑制假说停留于推断。对工业放大而言,无抗性标记、染色体整合的稳定性是加分项。
参考来源
期刊:Synthetic and Systems Biotechnology, 2027
DOI: 10.1016/j.synbio.2026.10.007
DOI: 10.1016/j.synbio.2026.10.007