来源:Marine Aspergillus terreus produces a chitinase exhibiting a substrate specific mode of enzymatic action(Biochimie)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
海洋来源真菌土曲霉(Aspergillus terreus)的胞外几丁质酶被系统表征。研究通过硫酸铵沉淀、几丁质消化亲和层析与凝胶过滤获得45 kDa纯酶,HPLC与高分辨质谱显示:对溶胀几丁质主要产GlcNAc,对壳六糖则产GlcNAc及其二至四聚体。质谱鉴定为内切几丁质酶1前体,但动力学却偏好外切酶特异性底物,效率高约4.7倍。分子对接进一步揭示隧道状活性口袋与底物特异性切割的关系。
研究背景
几丁质酶(EC 3.2.11.14)水解几丁质多糖的β-1,4-糖苷键。几丁质是自然界丰度仅次于纤维素的天然高分子,也是真菌细胞壁及昆虫、甲壳类外骨骼的主要成分。用几丁质酶从几丁质废弃物制备N-乙酰-D-氨基葡萄糖(GlcNAc),相比化学法被视为绿色路线。几丁质酶广泛存在于真菌、细菌、植物和哺乳动物中,生理功能多样。真菌几丁质酶有其独特之处:可产生不同同工酶,兼具外切、内切活性及转糖基活性;结构上多属GH18家族,参与细胞壁重塑、形态发生、竞争、防御及营养利用。因此真菌几丁质酶在生物防治、食品、农业、制药和生物燃料工业中的应用已被广泛研究和综述。海洋来源的几丁质酶对盐、pH、温度等理化条件适应性更强,工业潜力突出。然而,真正被系统表征、机制清楚的潜在微生物几丁质酶仍然很少,本研究即针对海洋土曲霉几丁质酶的底物特异性与切割模式展开。
研究方法
2.1 材料
溶胀几丁质用磷酸和几丁质片制备。乙二醇几丁质按Botha等(1997)的方法由乙二醇壳聚糖制备。六-N-乙酰壳六糖购自英国Carbosynth。乙二醇壳聚糖、pNPGlcNAc、4-甲基伞形酮酰-三-N-乙酰-β-几丁三糖苷和Sephadex G-75购自美国Sigma Aldrich。其余化学试剂均为实验室级或分析级,来自商业渠道。
【数据】试剂:磷酸、几丁质片、乙二醇壳聚糖、六-N-乙酰壳六糖、pNPGlcNAc、4-甲基伞形酮酰-三-N-乙酰-β-几丁三糖苷、Sephadex G-75;浓度/用量:原文未详述;温度:原文未详述;时间:原文未详述
2.2 几丁质酶纯化
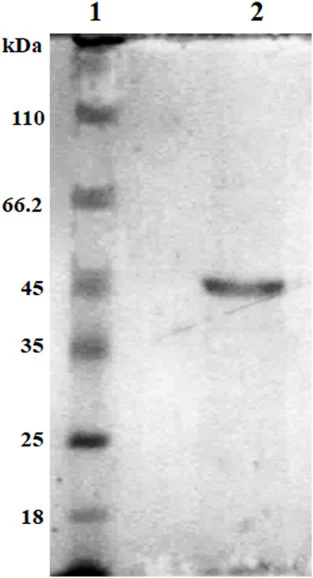
海洋土曲霉在几丁质酶生产培养基中培养三天,从培养液中纯化胞外几丁质酶。取浸没培养的真菌培养液,4°C、8000×g离心收集滤液,经硫酸铵沉淀盐析,随后进行几丁质消化亲和层析和尺寸排阻(凝胶过滤)层析。全程温度维持4°C。首先,1 L培养滤液用硫酸铵调至30%饱和度,11000×g离心30 min沉淀去除不需要的生物分子。所得上清液再调至70%硫酸铵饱和度,4°C过夜孵育使目标蛋白富集于沉淀中。沉淀经11000×g离心30 min后,重悬于乙酸缓冲液(50 mM,pH 5.5),并对同一缓冲液透析去除多余盐分。下一步按此前报道的方法进行几丁质消化亲和层析:简言之,取透析后蛋白5 mL与1 mL溶胀几丁质溶液(10 mg mL⁻¹)混合,4°C孵育30 min,使几丁质酶结合几丁质基质,而低温下几丁质聚合物不发生明显酶切。含几丁质基质与吸附酶的沉淀经4°C、4000×g离心15 min分离。用新鲜溶胀几丁质重复上述步骤,以确保上一步上清中的几丁质酶被最大程度吸附。各步沉淀合并,用补充1 M NaCl的乙酸缓冲液(50 mM,pH 5.5)洗涤,去除与几丁质基质松散结合的多余蛋白。随后将结合蛋白的几丁质重悬于3 mL乙酸缓冲液(50 mM,pH 5.5),37°C过夜孵育以启动几丁质消化。消化样品于4°C、4000×g离心30 min,收集富含几丁质酶的上清。为进一步纯化,上清浓缩后上预平衡的Sephadex G-75凝胶过滤树脂,去除非特异性污染物。洗脱蛋白于280 nm监测,流速1 mL/min。纯化蛋白的分子量通过12% SDS-PAGE测定。几丁质酶活性按Das等(2019)方法测定,"U"定义为每分钟释放1 μM GlcNAc所需的酶量,蛋白量用标准Bradford法测定。
【数据】培养时间:3天;离心条件:8000×g、4°C;硫酸铵饱和度:30%、70%;离心条件:11000×g、30 min;缓冲液:50 mM乙酸缓冲液、pH 5.5;亲和层析:5 mL蛋白+1 mL溶胀几丁质(10 mg mL⁻¹)、4°C、30 min;离心:4000×g、15 min、4°C;洗脱:1 M NaCl;消化:37°C过夜;凝胶过滤:Sephadex G-75、流速1 mL/min、280 nm检测;电泳:12% SDS-PAGE;酶活单位定义:1 μM GlcNAc/min
2.3 平板几丁质分解活性检测
纯化蛋白样品的几丁质分解活性在几丁质-琼脂糖平板上评估。平板由0.5%(w/v)可溶性乙二醇几丁质与1%琼脂糖混合制备。在几丁质-琼脂糖平板上打四个圆孔,其中两孔加入纯化蛋白,另两孔分别加入乙酸缓冲液(50 mM,pH 5.5)和市售里氏木霉几丁质酶(10 mg mL⁻¹)作为阴性和阳性对照。加样平板于37°C孵育3.5 h,使乙二醇几丁质水解。样品几丁质分解活性的检测通过将平板与0.1% Ranipal溶液孵育15 min完成。平板用蒸馏水彻底洗涤至少五次,于254 nm紫外透射仪下观察透明圈。
【数据】平板:0.5%(w/v)乙二醇几丁质+1%琼脂糖;阳性对照:里氏木霉几丁质酶10 mg mL⁻¹;阴性对照:50 mM乙酸缓冲液pH 5.5;孵育:37°C、3.5 h;染色:0.1% Ranipal、15 min;洗涤:蒸馏水≥5次;检测波长:254 nm
2.4 串联质谱鉴定蛋白
为鉴定纯化蛋白,先经SDS-PAGE分离(图S2)。从凝胶切下蛋白条带并切成小块。凝胶块用碳酸氢铵(25 mM)与乙腈溶液(1:1)脱色至少三次。凝胶块内蛋白用DTT(10 mM)还原,半胱氨酸残基用碘乙酰胺(55 mM)烷基化。随后按已发表方案用胰蛋白酶(10 ng μl⁻¹)消化凝胶块。提取的胰蛋白酶肽段进行MALDI ToF/ToF分析,获得肽质量指纹图谱。干燥的胰蛋白酶肽段用含50%乙腈的三氟乙酸(0.1%)溶液复溶,与α-氰基-4-羟基肉桂酸基质混合后点样于MALDI板,经激光离子化(4800 MALDI ToF/ToF,Applied Biosystems,美国加州福斯特城)。质谱中强度显著的峰汇总后进行碰撞诱导解离(CID),以空气为碰撞气。串联质谱数据用MASCOT软件(Matrix Science Ltd.,英国伦敦)检索NCBI其他真菌(酵母属除外)非冗余蛋白数据库,参数为最大漏切位点2、固定羧甲基化修饰、可变甲硫氨酸氧化;前体质量容差50 ppm,碎片质量容差0.6 Da。
【数据】脱色液:25 mM碳酸氢铵+乙腈(1:1)、≥3次;还原剂:DTT 10 mM;烷基化:碘乙酰胺55 mM;酶切:胰蛋白酶10 ng μl⁻¹;复溶液:0.1%三氟乙酸+50%乙腈;基质:α-氰基-4-羟基肉桂酸;检索参数:最大漏切2、前体容差50 ppm、碎片容差0.6 Da
2.5 溶胀几丁质与六-N-乙酰壳六糖水解
为考察几丁质酶对不同底物的作用方式,纯化酶分别与溶胀几丁质和六-N-乙酰壳六糖进行酶水解。溶胀几丁质悬液(1% w/v)与纯化几丁质酶(1 mg mL⁻¹,溶于50 mM乙酸缓冲液,pH 5.5)在45°C反应,时间从1 h到24 h不等。反应通过将混合物浸入100°C水浴5 min终止。反应液5000×g离心10 min,上清中释放的产物进行HPLC和HRMS分析。六-N-乙酰壳六糖水解:将5 nmol底物与10 μl乙酸缓冲液(50 mM,pH 5.5)混合,45°C孵育1 h,100°C煮沸终止反应,产物经HPLC和HRMS鉴定。
【数据】溶胀几丁质:1%(w/v);酶浓度:1 mg mL⁻¹;缓冲液:50 mM乙酸缓冲液pH 5.5;温度:45°C;时间:1–24 h;终止:100°C、5 min;离心:5000×g、10 min;壳六糖用量:5 nmol;反应体积:10 μl;孵育:45°C、1 h
2.6 HPLC与HRMS分析
取六-N-乙酰壳六糖和溶胀几丁质水解液20 μl进样,经Zorbax碳水化合物柱(250 × 4.6 mm,5 μm粒径)在高效液相色谱(Agilent Technologies,1100系列,美国加州)上分离。以乙腈与去离子水(95:5)线性梯度洗脱,二极管阵列检测器(Agilent 1100系列DAD)监测。收集洗脱组分冻干后进行高分辨ESI-MS(HRMS)分析。冻干粉样(0.5 mg)溶于50%乙腈水溶液,用高分辨质谱仪(Xevo G2 QTof,Waters,美国马萨诸塞州)测定水解产物的质量及元素组成。样品以 infusion 方式进样,在100至1000 Da质量范围内以正、负离子模式扫描。
【数据】进样量:20 μl;色谱柱:Zorbax碳水化合物柱250 × 4.6 mm、5 μm;流动相:乙腈:水=95:5线性梯度;检测:DAD;冻干样品量:0.5 mg;复溶:50%乙腈;扫描范围:100–1000 Da;离子模式:正、负
2.7 酶动力学
为测定外切几丁质酶活性,取50 μl可溶性底物p-硝基苯基N-乙酰-β-D-氨基葡萄糖苷(pNPGlcNAc,5 mM)与50 μl纯化几丁质酶(0.2 mg mL⁻¹)在乙酸缓冲液(50 mM,pH 5.5)中反应,另加200 μl乙酸缓冲液。反应混合物……(原文此处节选结束)
【数据】底物:pNPGlcNAc 5 mM、50 μl;酶:0.2 mg mL⁻¹、50 μl;缓冲液:50 mM乙酸缓冲液pH 5.5、200 μl;温度:原文未详述;时间:原文未详述
研究结果
3.1 几丁质酶纯化
海洋土曲霉胞外几丁质酶经硫酸铵沉淀、几丁质消化亲和层析和尺寸排阻层析逐步纯化。观察到大部分几丁质分解活性集中在70%硫酸铵饱和度组分,且该组分污染物较少。硫酸铵沉淀所得蛋白组分进一步通过酶-底物亲和层析(即几丁质消化)纯化。此处,结合于溶胀几丁质的几丁质酶通过将基质温度升至37°C释放,溶胀几丁质被降解,酶从基质上脱落。部分纯化的几丁质酶收集后继续纯化。随后对亲和层析洗脱蛋白进行凝胶过滤层析。浓缩蛋白最终上Sephadex G-75尺寸排阻树脂,用乙酸缓冲液(50 mM,pH 5.5)洗脱。SDS-PAGE分析确定纯化几丁质酶分子量约45 kDa(图1)。纯化各步及每个洗脱组分均检测几丁质分解活性。不同纯化步骤比活性的倍数提升反映了各步蛋白纯度(表1)。
【数据】硫酸铵饱和度:70%;释放温度:37°C;凝胶过滤:Sephadex G-75;洗脱液:50 mM乙酸缓冲液pH 5.5;分子量:约45 kDa;电泳:SDS-PAGE
3.2 平板法检测几丁质酶
纯化几丁质酶几丁质分解活性的定性检测采用乙二醇几丁质平板法,平板用Ranipal染色。Ranipal是一种二氨基二苯乙烯化合物,含荧光染料,对多糖β-糖苷键有亲和力。因此Ranipal只与完整几丁质分子结合,不与水解产物结合。平板中未水解的乙二醇几丁质与Ranipal结合,在紫外光下产生强烈蓝色荧光。相反,孔周被几丁质酶水解的区域呈透明圈(图S1)。土曲霉纯化几丁质酶表现出高水平几丁质分解活性,平板上可见明显透明圈。
【数据】平板染色剂:Ranipal;检测方式:254 nm紫外透射仪;透明圈:可见;定量数值:原文未详述
3.3 纯化几丁质酶的串联质谱分析
采用SDS-PAGE与MALDI ToF/ToF联用鉴定土曲霉纯化几丁质酶的蛋白图谱(图S2)。考马斯染色蛋白条带切碎后进行肽质量指纹图谱分析。胰蛋白酶消化肽段的质量及其碎片离子由MALDI ToF/ToF测定,共产生9条肽段。肽质谱数据输入MASCOT辅助数据库查询,鉴定出纯化酶(表2)。蛋白鉴定以MASCOT评分大于60为标准。该蛋白被鉴定为内切几丁质酶1前体,登录号XP_001217186(gi|115402219),427个氨基酸。MASCOT分析确定其分子量为46.9 kDa,等电点5.06。
【数据】肽段数:9条;MASCOT评分阈值:>60;登录号:XP_001217186;氨基酸数:427;分子量:46.9 kDa;等电点:5.06
3.4 溶胀几丁质与六-N-乙酰壳六糖水解
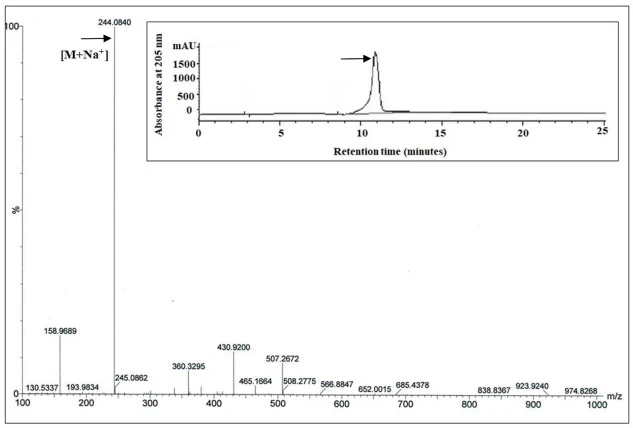
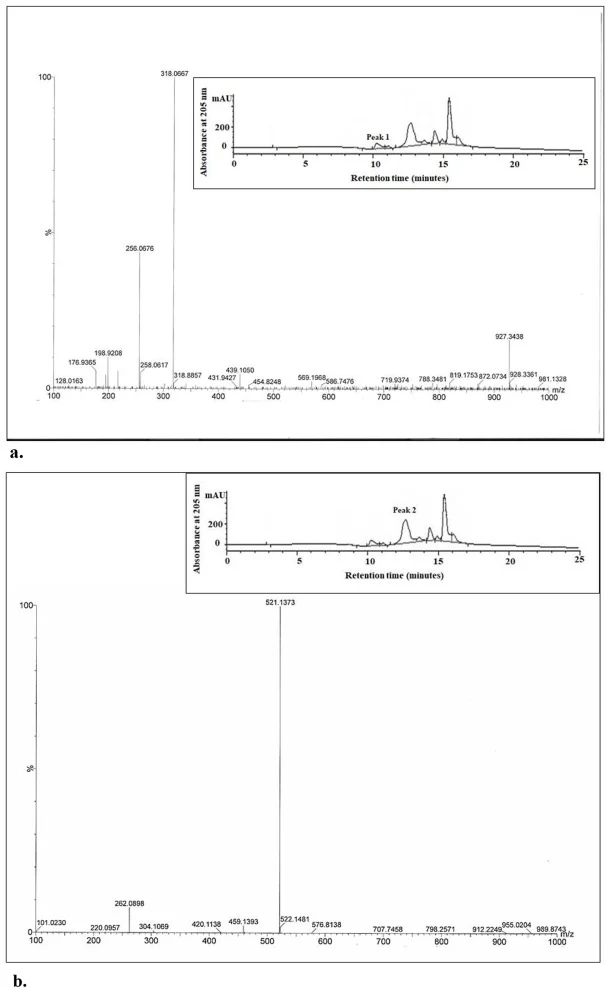
蛋白质组学分析将土曲霉纯化几丁质酶鉴定为内切几丁质酶1前体。然而,尚无生化证据可依据底物特异性和切割模式将该酶归入特定类别。几丁质酶的评判取决于产物类型,因此我们推测,用不同长度底物对土曲霉几丁质酶进行酶学表征,应能恰当评估该酶的性质。本研究联合HPLC与HR-MS分析鉴定产物。简言之,溶胀几丁质聚合物水解后,水解液经HPLC及HR-MS分析。HPLC与质谱分析均显示,在HRMS正离子模式下,GlcNAc是溶胀几丁质酶水解反应的主要产物(图2)。这一观察确认了海洋土曲霉纯化几丁质酶的外切几丁质酶行为。相反,六-N-乙酰壳六糖水解在孵育1 h内产生GlcNAc及其多聚体。有趣的是,HPLC色谱显示壳六糖水解产物在10至17 min保留时间内洗脱,HR-MS鉴定为GlcNAc(图3a)、二-N-乙酰壳二糖(图3b)、三-N-乙酰壳三糖(图3c)和四-N-乙酰壳四糖(图3d)。壳六糖酶解产物中出现三-N-乙酰壳三糖以及二-N-乙酰壳二糖(图3b)和四-N-乙酰壳四糖(图3d),表明纯化酶具有内切几丁质酶行为。因此,土曲霉纯化几丁质酶在不同大小和长度底物存在下表现出底物特异性的作用模式。
【数据】溶胀几丁质主要产物:GlcNAc;壳六糖产物:GlcNAc、二-N-乙酰壳二糖、三-N-乙酰壳三糖、四-N-乙酰壳四糖;壳六糖孵育时间:1 h;HPLC保留时间:10–17 min;HRMS离子模式:正离子(图2)、负离子(图3);底物浓度:1%(w/v)溶胀几丁质、5 nmol壳六糖
3.5 不同底物的酶动力学研究
土曲霉纯化几丁质酶的动力学参数通过酶与显色底物pNPGlcNAc和荧光底物4-甲基伞形酮酰-三-N-乙酰-β-几丁三糖苷分别反应测定。显色底物pNPGlcNAc用于评估几丁质酶的外切几丁质酶活性,荧光底物4-甲基伞形酮酰-三-N-乙酰-β-几丁三糖苷则广泛用于研究内切几丁质酶活性。外切与内切几丁质酶的动力学参数由Michaelis–Menten方程推导,使用GraphPad Prism v 5.0软件(GraphPad Software,美国加州拉霍亚)。纯化几丁质酶对pNPGlcNAc的催化效率比4-甲基伞形酮酰-三-N-乙酰-β-几丁三糖苷高约4.7倍(表3)。该酶对pNPGlcNAc的Km也更低,表明对外切酶特异性底物亲和力更高(图S5,表3)。
【数据】底物:pNPGlcNAc(显色)、4-甲基伞形酮酰-三-N-乙酰-β-几丁三糖苷(荧光);催化效率倍数:约4.7倍;Km:pNPGlcNAc更低;分析软件:GraphPad Prism v5.0
3.6 几丁质酶的亚细胞定位研究
从NCBI数据库提取鉴定几丁质酶的氨基酸序列,研究目标蛋白的亚细胞定位。SignalP v4.1确定其含22个氨基酸的N端信号肽(图S3),证实该蛋白翻译后发生转运。此外,SCL-Pred服务器预测土曲霉内切几丁质酶1前体为分泌蛋白,置信度高。事实上,该几丁质酶原本即从胞外培养基中纯化,与计算机分析和实验观察高度一致。
【数据】信号肽长度:22个氨基酸;预测工具:SignalP v4.1、SCL-Pred;定位:分泌型;置信度:高
3.7 二级结构分析
采用生物信息学工具预测与圆二色谱(CD)分析共同表征几丁质酶在液态下的总体构象。PSIPRED和Predict Protein的计算机预测显示,土曲霉几丁质酶由25.86% α-螺旋、19.46% β-折叠和54.68%无规卷曲组成(表4)。圆二色谱分析进一步验证了这一点。特征性CD谱确认纯化蛋白在纯化过程中保持稳定且正确折叠。纯化几丁质酶的CD光谱数据经K2D3软件分析,显示蛋白具有αβ特征结构,含28.37% α-螺旋、19.19% β-折叠和52.44%无规卷曲(表4)。
【数据】预测值:α-螺旋25.86%、β-折叠19.46%、无规卷曲54.68%;CD实测:α-螺旋28.37%、β-折叠19.19%、无规卷曲52.44%;分析软件:PSIPRED、Predict Protein、K2D3
3.8 三维结构分析
海洋土曲霉几丁质酶的三维结构迄今尚未阐明。此处选择计算机结构分析,作为替代费时费力的NMR或晶体学三维结构解析的最简便方案……(原文此处节选结束)
【数据】结构解析方法:计算机模拟(同源建模);实验结构:原文未详述
讨论与解读
从几丁质聚合物生产GlcNAc及其衍生物,取决于几丁质酶的酶学性质与作用模式。已有多个研究者探索不同微生物几丁质酶以增值几丁质废弃物,进而生产GlcNAc或其多聚衍生物,用于健康护理与环境相关应用。然而,真正被系统表征、机制清楚的潜在微生物几丁质酶很少。本研究借助生化测定、生物物理表征和生物信息学分析,阐明海洋土曲霉几丁质酶的几丁质水解模式,揭示从几丁质生产GlcNAc的关键机制,并按传统分类模式对该酶归类。早期文献指出,水解模式是几丁质酶分类的关键依据,可由释放产物的性质判定。外切几丁质酶从非还原末端切除几丁质聚合物,产生GlcNAc或其二聚体(二乙酰壳二糖);内切几丁质酶则随机切割几丁质链,产生不同长度的N-乙酰壳寡糖衍生物。本研究用HPLC结合高分辨质谱(HRMS)分析表征产物……(原文讨论节选至此)
一个酶,两副面孔。这篇工作最有意思的地方,是它用扎实的产物分析戳破了"序列即功能"的简单假设:质谱把酶鉴定为内切几丁质酶1前体,动力学却显示它更偏爱外切酶底物,而对溶胀几丁质又主要产单糖。对合成生物学而言,这意味着几丁质酶的分类注释不能只看数据库比对,产物谱和动力学必须实测。局限也明显:三维结构全靠同源建模,缺乏晶体结构验证;动力学部分节选未给出完整参数。若要把它改造成高效的GlcNAc细胞工厂模块,下一步需要结构解析与定向进化来锁定决定切割模式的残基。
参考来源
期刊:Biochimie(2026)
DOI:10.1016/j.biochi.2026.10.010
DOI: 10.1016/j.biochi.2026.10.010