来源:PmHY5-PmMYB113-mediated anthocyanins biosynthesis underlies flower color variation in industrially important woody ornamental Prunus mume(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
梅花(Prunus mume)是原产中国的重要木本观赏植物,花色从深红到纯白差异显著,花瓣中花青素与黄酮醇的积累比例是决定花色的关键。本研究通过对红、粉、白三种花色品种的比较转录组与代谢物分析,锁定PmHY5-PmMYB113-PmCOP1调控模块,并证实PmMYB113可异源激活烟草花青素合成。该工作为高花青素含量梅花品种的分子育种提供了可直接操作的靶基因。
研究背景
梅花在中国的栽培史超过3000年,品种逾500个,是木本观赏植物遗传改良的模式材料。其花色多样性直接关系到观赏价值与工业价值——干花入药、花瓣提取物用于保健品与化妆品,花青素与黄酮类物质正是这些用途的物质基础。花青素是决定梅花花色由红到粉的主要色素,因此解析其生物合成调控机制,既是理解花色形成的基础问题,也是培育高花青素含量观赏品种的育种前提。前人已在近缘李属植物中报道了多个MYB家族转录因子参与花青素调控,但梅花中负责花青素合成的核心调控因子及其上游光信号响应机制长期不清楚。本研究以三个花色品种为材料,试图从转录组与代谢物两个层面同时切入,找出控制花色差异的关键基因与调控路径。
研究方法
2.1 种质采集
梅花花瓣于2025年3月第二周独立采集,分别取S2(花芽膨大期)、S6(花瓣清晰可见期)和S8(盛花期)三个发育时期(Yuan et al., 2021),材料来自种植于浙江农林大学风景园林学院试验站的7年生桃红(红)、宫粉(粉)和白羽蝶(白)植株,试验站位于北纬30.2652°、东经119.7131°,海拔650 m,杭州,中国。采集组织置入2 mL离心管后立即于液氮中冷冻,在液氮下用电动研磨仪以35 Hz研磨90 s成细粉。研磨样品随后保存于−80°C超低温冰箱,直至RNA提取与黄酮类定量(Zhao et al., 2026)。
【数据】采样时间:2025年3月第二周;发育时期:S2、S6、S8;树龄:7年;研磨频率:35 Hz;研磨时间:90 s;保存温度:−80°C;海拔:650 m;坐标:30.2652° N, 119.7131° E
2.2 RNA提取、文库构建与比对
每个样品的总RNA用快速植物RNA提取试剂盒(Vazyme,南京,中国)按厂家说明提取。为去除残留基因组DNA,RNA在干浴孵育器(BIOBASE,济南,中国)中于37°C用无RNase的DNase I(TaKaRa,大连,中国)处理30 min,操作按厂家说明进行。RNA质量用1%琼脂糖凝胶电泳检测。纯度与浓度用分光光度计(NanoDrop 2000,Thermo Fisher,MA,USA)测定。用于RNA-seq分析的第一链cDNA由三个品种S8(盛花期)的总RNA经反转录试剂盒(TransGen Biotech,北京,中国)按厂家说明合成。随后用RNA-se文库预混试剂盒(TransGen Biotech,北京,中国)按厂家方案合成双链cDNA。纯化后的双链cDNA连接接头,用于构建短片段文库。所得RNA-seq文库在Illumina HiSeq 2000平台上以双端150-bp模式测序(Zhang and Sun, 2019)。依据Q20值,用FASTX Toolkit v.0.14过滤原始RNA-seq数据以去除低质量reads。用TopHat v2.0.12将clean reads比对到梅花基因组(https://www.rosaceae.org/Analysis/13114608),读数用HTSeq v0.6.1生成(Wang et al., 2024)。
【数据】DNase I处理:37°C、30 min;电泳检测:1%琼脂糖凝胶;测序平台:Illumina HiSeq 2000;测序模式:双端150-bp;过滤工具:FASTX Toolkit v.0.14;比对工具:TopHat v2.0.12;计数工具:HTSeq v0.6.1;测序时期:S8
2.3 差异表达分析与基因注释
利用基因长度与比对到该基因的read count,采用maP/med计算FPKM值。用DESeq R包分析差异表达基因(DEG)。统计显著性以Benjamini-Hochberg校正P值< 0.05为准。不同花色梅花之间所有MYB家族差异表达转录因子均被选出用于后续分析。用KEGG注释在已鉴定的DEG中识别与花青素和黄酮醇相关的基因,这些基因被选出进入后续分析(Bao et al., 2022)。
【数据】定量方法:FPKM(maP/med);差异分析工具:DESeq R包;显著性阈值:Benjamini-Hochberg校正P < 0.05;筛选对象:MYB家族差异表达转录因子;注释数据库:KEGG
2.4 花部花青素与黄酮醇的定量与定性分析
上述梅花品种的花瓣在S2、S6和S8三个发育时期采集,于液氮中研磨成粉。随后每个样品的花瓣组织(200.0 mg)分别置于离心管中,加入提取试剂(甲醇–水–甲酸–三氟乙酸,v/v/v/v 70:27:2:1);混合物室温涡旋1 min,然后在KQ 2200B超声清洗器(江苏,中国)中于4°C超声提取15 min(Hashimoto et al., 2000)。混合物于−20°C静置过夜,再于4°C、12,000 rpm离心10 min(A-14C,Sartorius,Goettingen,德国)。收集上清,经0.22 μm聚酰胺膜过滤后用于HPLC-MS分析。花青素与黄酮醇的HPLC分析使用Waters 2695系统(Waters,USA),配置W2996光电二极管阵列检测器,连接C18柱(5 μm,4.6 × 250 mm i.d.;WondaCract ODS−2;Shimadzu,上海,中国),方法参照前人描述并略作修改(Zhang et al., 2012)。柱温30°C,进样量10 μL,流速0.8 mL/min。检测波长范围200至600 nm,色谱图主要于520 nm监测花青素、360 nm监测黄酮醇。分离使用流动相A(水中0.5%甲酸)和流动相B(乙腈中0.1%甲酸)。梯度程序为0 min,5% B;5 min,10% B;20 min,20% B;30 min,25% B;33 min,10% B;35 min,5% B;50 min,5% B。定量采用外标法,设生物学重复。花青素标准品为氯化矢车菊素−3-O-葡萄糖苷,黄酮醇标准品为山奈酚−3-O-葡萄糖苷、山奈酚−3-O-芸香糖苷、槲皮素、槲皮素−3-O-葡萄糖苷和山奈酚,均通过与真实标准品及已发表数据的保留时间、紫外–可见光谱和LC-MS信息比对鉴定。标准品用与样品制备相同的溶剂系统(水–乙腈–甲酸–三氟乙酸,70:27:2:1,v/v/v/v)配制。主要峰通过匹配保留时间、紫外–可见光谱和LC-MS信息与真实标准品及已发表数据鉴定。
【数据】花瓣用量:200.0 mg;提取试剂:甲醇–水–甲酸–三氟乙酸(70:27:2:1,v/v/v/v);涡旋:室温、1 min;超声:4°C、15 min;静置:−20°C过夜;离心:12,000 rpm、10 min、4°C;滤膜:0.22 μm聚酰胺膜;柱温:30°C;进样量:10 μL;流速:0.8 mL/min;检测波长:200–600 nm(花青素520 nm、黄酮醇360 nm);流动相A:0.5%甲酸水;流动相B:0.1%甲酸乙腈
2.5 RT-qPCR验证候选基因
RT-qPCR表达分析所用RNA从上述三个品种的三个发育时期S2、S6和S8提取。合成第一链cDNA以验证与花青素和黄酮醇生物合成相关的DEG的表达模式。所鉴定基因的编码序列(CDS)从蔷薇科基因组数据库(GDR;http://www.rosaceae.org/)获取用于引物设计。基因特异性引物用Primer-BLAST软件(National Center for Biotechnology Information,Maryland,USA)设计。qPCR使用LightCycler 480系统(Roche Diagnostics,Mannheim,德国)按厂家方案进行。引物列于表S1。相对表达值用2-ΔΔCT法计算(Ding et al., 2023)。PmACT(Pm005252)作为内参基因(Xiujun et al., 2022)。
【数据】发育时期:S2、S6、S8;引物设计工具:Primer-BLAST;qPCR仪器:LightCycler 480;计算方法:2-ΔΔCT;内参基因:PmACT(Pm005252);引物信息:表S1
2.6 PmMYB113在烟草中的过表达
PmMYB113的CDS(735 bp)以红花品种桃红的cDNA为模板经PCR扩增,克隆入载体ORE-R4,转化大肠杆菌Dh5α,在含Kana(硫酸卡那霉素)的LB中培养。随后从单阳性菌落提取质粒,经PCR和DNA重测序确认序列后,将质粒转化根癌农杆菌菌株GV3101。菌落生长于含Kana和RIF(利福平)的LB培养基上。序列确认后,含质粒的单菌落用转化缓冲液(含10 mM MES、10 mM MgCl2和150 μM AC)洗涤三次。细菌随后悬于转化缓冲液中3 h,再转化烟草(Nicotiana tabacum)叶片。转化叶片暗处放置两天,随后为诱导愈伤组织,叶片置于1/2MS盐培养基 + 2%蔗糖 + 0.8%琼脂 + 1 mg/L NAA(α-萘乙酸)和6-BA(6-苄氨基嘌呤),并加Kana和头孢噻肟以防细菌感染,培养两周。为诱导芽,将健康无感染的愈伤组织转入改良MS培养基,配合NAA与2,4-D组合培养两周。芽诱导后,小植株在NAA浓度提高的改良MS上生长。整个流程中培养基pH调至5.8。植株于24–26°C、16/8 h光周期下培养。所有转化及培养基间转移操作均在层流台中完成,使用前消毒30 min。经PCR确认基因表达后,植株……
【数据】CDS长度:735 bp;载体:ORE-R4;大肠杆菌菌株:Dh5α;农杆菌菌株:GV3101;抗生素:Kana、RIF、头孢噻肟;转化缓冲液:10 mM MES、10 mM MgCl2、150 μM AC;缓冲液悬浮:3 h;暗处理:2天;愈伤诱导:1/2MS + 2%蔗糖 + 0.8%琼脂 + 1 mg/L NAA + 6-BA、两周;芽诱导:改良MS + NAA + 2,4-D、两周;pH:5.8;培养温度:24–26°C;光周期:16/8 h
研究结果
3.1 花色与花青素生物合成
本研究选取的三个梅花栽培品种属观赏类群,花色分别为红(桃红)、粉(宫粉)和白(白羽蝶)(图1a、图2a)。红、粉两品种的花芽在S2(花芽膨大期)颜色几乎相同(粉褐色),两者花芽中均有少量花青素,但粉、白花芽中黄酮醇含量相对更高(图2b、c)。白花花芽在S2时更偏绿色,花青素积累很低乃至没有(图2b、c)。到S6(花芽清晰可见期),粉花花芽呈深粉色,红花花芽呈深红色,白花花芽呈绿白色。为进一步确认红、粉、白花瓣间的代谢物差异,对桃红、宫粉和白羽蝶花瓣不同发育时期的主要花青素与黄酮醇进行了HPLC/LC-MS谱分析。主要花青素峰通过与混合标准品及LC-MS数据比对鉴定,包括矢车菊素−3-O-葡萄糖苷、矢车菊素−3-O-芸香糖苷、矢车菊素衍生的糖苷、天竺葵素衍生的花青素以及芍药素−3-O-葡萄糖苷。主要黄酮醇为芦丁/槲皮素−3-O-芸香糖苷、槲皮素−3-O-葡萄糖苷、山奈酚−3-O-芸香糖苷、槲皮素、山奈酚−3-O-葡萄糖苷和山奈酚。HPLC结果显示三个品种间花青素积累差异显著(图2C)。桃红花瓣花青素峰最高,尤其在发育后期;宫粉花青素峰强度中等(图S1)。相反,在相同强度标尺绘制色谱图时,白羽蝶花瓣仅显示痕量花青素信号。这些结果与可见的红、粉、白花瓣表型一致。黄酮醇谱呈现与花青素相反的趋势。白羽蝶花瓣中黄酮醇相关峰更丰富,尤其在S6和S8,而桃红中黄酮醇信号相对较弱。宫粉呈中间模式(图2D)。结果表明,梅花花色变异不仅与花青素积累差异有关,也与黄酮醇代谢差异有关。概括而言,化合物水平的HPLC/LC-MS数据表明:红花瓣花青素高积累,白花瓣花青素低而黄酮醇高积累,粉花瓣为中间代谢模式。红花在S6时相较深红呈现红色。花色与三种表型中花青素(R2= 0.72)和黄酮醇(R2= 0.89)含量的变化相关(图2d)。这些结果使我们能够选择用于转录组分析的最佳时期,以鉴定与花青素和黄酮醇生物合成相关的基因。由于S8显示出清晰的花色动态及花青素、黄酮醇含量变化,因此选择S8进行后续转录组分析。
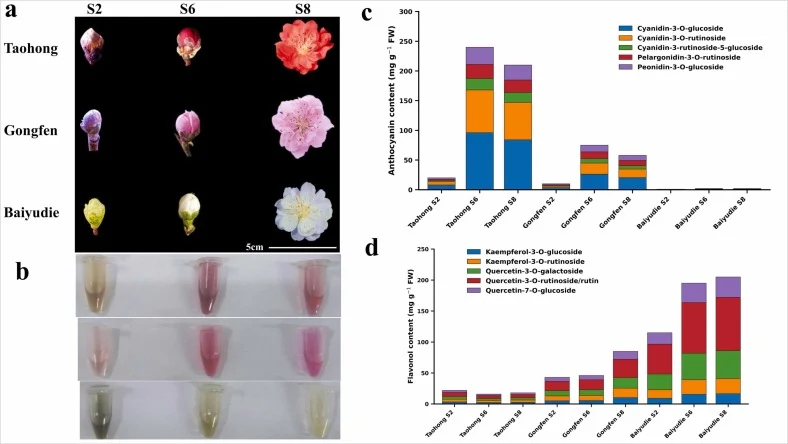
【数据】花青素标准品:矢车菊素−3-O-葡萄糖苷等;黄酮醇组分:芦丁/槲皮素−3-O-芸香糖苷、槲皮素−3-O-葡萄糖苷、山奈酚−3-O-芸香糖苷、槲皮素、山奈酚−3-O-葡萄糖苷、山奈酚;花色-花青素相关性:R2 = 0.72;花色-黄酮醇相关性:R2 = 0.89;转录组选用时期:S8
3.2 转录组分析鉴定与花色相关的基因
从三个品种S8(盛花期)(图2a)提取的RNA样品用于转录组分析。构建的12个文库共产生52.4 GB clean data,即Red-I、Red-II、Red-III、Pink-I、Pink-II、Pink-III和White-I、White-II、White-III。质量控制测得红花clean reads为95%,粉花93.2%,白花96%。比对到梅花参考基因组的比例分别为粉花97%、白花89%、红花88%,这指向红、白品种的遗传分化,并确认参考基因组很可能来源于粉花表型。梅花花中共表达19284个基因,其中1505个基因在红、粉、白花间差异表达。这些基因基于FPKM的热图见图1b。红花中178个DEG,粉花361个,白花966个(图1c)。白花DEG数目最多。通过KEGG功能注释,鉴定出16个基因与花青素(5个基因)和黄酮醇(11个基因)相关(图1d)。这些基因的表达连同其他1505个DEG一并展示于热图中(图1b)。这16个基因的表达水平经RT-qPCR验证并展示于图1e。16个基因中有6个——即PmMYB113、PmCOP1、PmDFR、PmFLS、PmHY5和PmFOGT——在盛花期显示出显著较高的相对表达,与其FPKM值及花色一致。基于其功能注释及在近缘植物中广泛报道的花青素和其他黄酮类生物合成作用,这6个基因被选为后续分析的候选基因(图1e)。
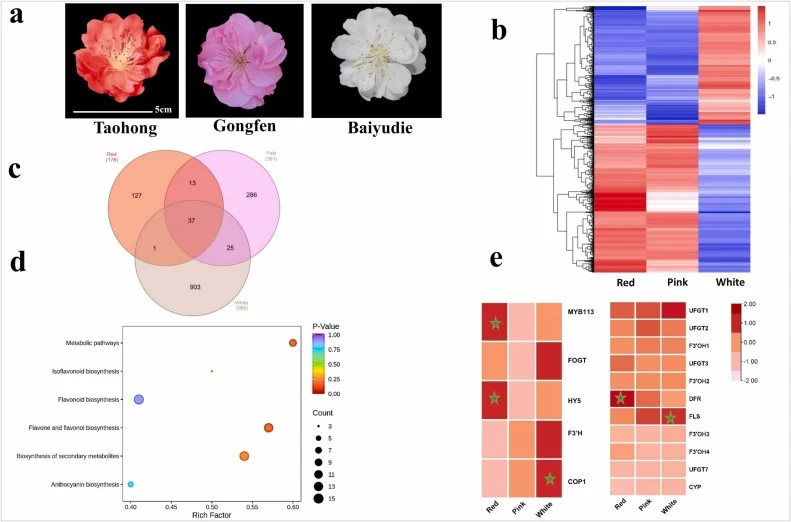
【数据】clean data总量:52.4 GB;文库数:12个;clean reads比例:红花95%、粉花93.2%、白花96%;基因组比对率:粉花97%、白花89%、红花88%;表达基因数:19284;DEG总数:1505;分花色DEG:红花178、粉花361、白花966;KEGG关联基因:16个(花青素5个、黄酮醇11个);候选基因:6个(PmMYB113、PmCOP1、PmDFR、PmFLS、PmHY5、PmFOGT)
3.3 参与黄酮类生物合成的结构基因与调控基因
为进一步探究所鉴定候选基因(图1e)在花青素生物合成中的作用,在用于花青素和黄酮醇定量的三个发育时期S2、S6和S8评估了这些基因的RT-qPCR表达水平。结果显示,PmHY5、PmMY113和PmDFR在红花中表达水平显著较高,粉花次之,白花中表达显著较低。PmFoGT在红花中表达较高,白花次之。PmCOP1和PmFLS在白花中表达显著较高(图3)。表达值与花青素、黄酮醇含量的Pearson相关分析显示,PmHY5、PmMY113和PmDFR与花青素含量强相关(R2 = 0.87、0.98和0.980),因而与整个花发育过程中的红花花色相关(图3)。另一方面,PmFLS与红、粉、白花中黄酮醇含量相关(R2 = 0.79)。PmCOP1同样未显示与黄酮醇含量的显著高相关,但与PmFoGT不同,PmCOP1在白花整个花发育过程中具有均一的高表达模式,这指向其间接作用而非主要候选基因,同时也由于PmHY5的鉴定——PmCOP1与PmHY5在蛋白水平上已确立花青素抑制的间接作用。因此我们仍将其纳入后续分析。然而,PmFoGT在整个花发育过程中与花青素或黄酮醇含量均无显著相关。这指向其仅因S8时较高的FPKM和RT-qPCR值(图1b、1e和图3)以及在其它植物中黄酮类生物合成作用的注释而被选为候选基因。因此,由于PmFoGT在本研究所用任何花色表型中均缺乏一致表达,其在后续功能验证实验中被排除出候选基因之列。
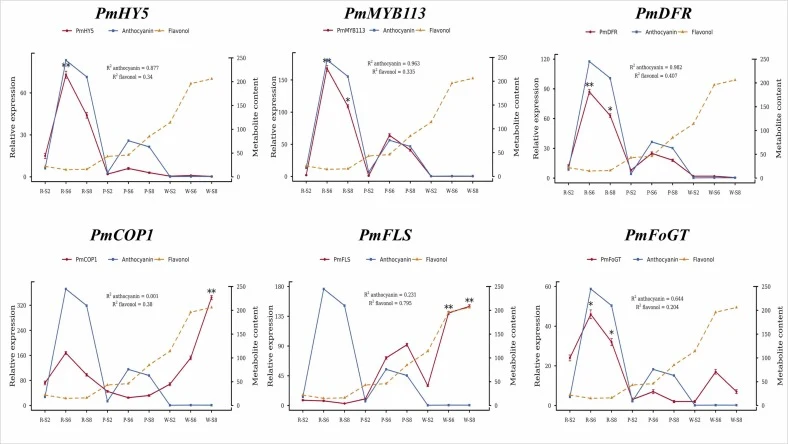
【数据】表达趋势:PmHY5/PmMY113/PmDFR红花>粉花>白花;PmFoGT红花>白花;PmCOP1与PmFLS白花最高;与花青素相关性:PmHY5 R2 = 0.87、PmMY113 R2 = 0.98、PmDFR R2 = 0.980;PmFLS与黄酮醇相关性:R2 = 0.79;排除基因:PmFoGT
3.4 PmMYB113的表达与分子特征
在所鉴定基因中,PmMYB113在红花中表达水平最高,且与花青素含量高度相关(图3)。由于MYB蛋白在调控黄酮类生物合成通路基因中的作用被广泛报道,我们进一步研究了其在梅花花青素生物合成中的作用。对PmMYB113在梅花不同组织中的RT-qPCR表达进行了分析。为此选用在某一阶段积累花青素的梅花组织,如红花的萼片、花瓣、雄蕊、雌蕊,以及含花青素的幼叶和成熟果实。结果表明,PmMYB113表达水平在花瓣中显著最高,雌蕊次之,均高于其他组织(图4a)。这表明PmMYB113主要在花瓣和雌蕊中表达,指向其花瓣特异性花青素生物合成功能。为进一步了解其作用方式与作用部位……
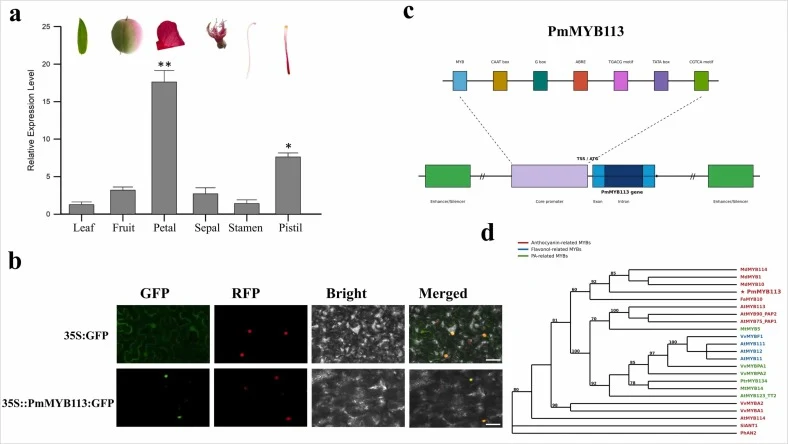
【数据】最高表达组织:花瓣;次高:雌蕊;检测组织:萼片、花瓣、雄蕊、雌蕊、幼叶、成熟果实;表达定量方法:RT-qPCR
讨论与解读
花青素是植物抵御光氧化胁迫的次生代谢物,也参与病原防御。对人类的用途同样明确:观赏与花卉产业依赖花青素赋予花朵的丰富色彩,医药领域用于心血管疾病、糖尿病等,化妆品工业用于护肤美容产品。花青素经苯丙氨酸代谢起始、终于花青素糖苷或黄酮醇的生物合成通路产生,受MYB家族转录因子调控。近缘李属物种中已报道PmMYB1、PpMYB1、PpMYB10、PpMYB39、PpMYB108、PsMYB110、PdMYB113、PMYB114等多个MYB成员参与花部花青素调控,MYB蛋白通过转录激活直接调控花青素通路结构基因。本研究在这一框架下补上了梅花中的关键环节:PmHY5作为光响应主调控因子在细胞核中激活PmMYB113,后者下调黄酮醇合成基因PmFLS1、上调花青素通路关键基因PmDFR,从而把代谢流导向花青素;PmCOP1则在无光条件下于核内降解PmHY5蛋白,负向关闭该通路。PmMYB113在烟草中过表达可上调NtDFR并显著提高花朵花青素含量,说明该模块在异源系统中具备可移植性。
编译者解读:该研究的价值在于把光信号(PmHY5/PmCOP1)与MYB核心调控(PmMYB113)串成一条可解释花色深浅的完整链路,靶点明确、异源验证可行,对梅花分子育种而言比单纯过表达结构基因更具操作性。局限也明显:PmMYB113的异源验证在烟草完成,梅花自身的稳定转化与田间光调控实验仍缺位,PmCOP1对PmHY5的降解是否为直接泛素化修饰原文未详述。
参考来源
期刊:Industrial Crops and Products(2026)
DOI: 10.1016/j.indcrop.2026.124119
DOI: 10.1016/j.indcrop.2026.124119