来源:The impact of tetrabutylammonium lactate (TBAL) semiclathrate former on the viability of Saccharomyces cerevisiae(Cryobiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
冷冻保存中冰晶形成引发的溶液效应与机械损伤是细胞活力损失的主因。本研究首次系统评估了半笼形水合物形成剂——四丁基乳酸铵(TBAL)在酿酒酵母冷冻保存中的作用。结果表明TBAL对细胞膜不可渗透,浓度超过0.6 M即产生毒性;但在60 mM低浓度下,TBAL显著提升冻后存活率,效果与常规冷冻保护剂相当。研究为半笼形水合物类新型保护剂的应用提供了概念验证。
研究背景
细胞悬液通常借助机械超低温冰箱或液氮实现长期保存。若管理不当,低温暴露会导致细胞活力丧失,其根源主要在于不受控的冰晶形成。冰晶生长时,残余未冻液中的溶质被浓缩,细胞同时承受"溶液效应"引起的高渗损伤,以及胞内冰形成或胞外小冰晶重结晶带来的机械损伤。常规冷冻保存策略依靠冷冻保护剂(CPA)并优化加载/卸载方式与降温/升温程序来减轻冰损伤。玻璃化策略则通过高浓度CPA快速降温越过玻璃化转变温度(Tg),使溶液形成无定形玻璃态固体,从而完全避免冰形成;或者利用冰浓缩溶质相后残余未冻部分在较高温度(Tg′)发生玻璃化。此类方案多针对特定细胞类型经验性开发,需权衡CPA种类、浓度与降温速率等因素。然而,现有CPA仍存在毒性、渗透压冲击等局限,亟需新型CPA配方与替代思路。部分与水混溶的离子型多烷基鎓盐可形成类冰的半笼形水合物晶体。半笼形水合物可在0 °C以上解离,且与冰不同,它能把形成半笼形水合物的溶质纳入晶相,从而可能降低残余环境的张力。这些特性对细胞存活的影响尚未被探索。
研究方法
2.1 细胞培养、生长培养基与缓冲液组成
酿酒酵母S288C(ATCC 204508)细胞培养于锥形瓶中,30 °C、50 mL酵母膏胨葡萄糖(YPD)培养基,成分为10 g/L酵母提取物、20 g/L蛋白胨和20 g/L葡萄糖,在200 RPM轨道摇床中培养。初始接种物 stock 由四个50 mL锥形瓶培养物制备,离心后转入含终浓度15%(v/v)甘油的1 mL冻存管,保存于−70 °C。每次实验使用2.2 × 10⁵ CFU/mL接种量,取自独立冻存管,于40 °C水浴中解冻5 min。长期细胞 stock 的冷冻保存方案改编自参考文献[2]和[18]。对数期细胞在生长17–18 h后收集,稳定期细胞在36 h后收集。用于洗涤细胞悬液的生理盐水稀释液由8.5 g/L NaCl、0.3 g/L KH₂PO₄、0.6 g/L Na₂HPO₄和0.1 g/L蛋白胨溶于蒸馏水配制[17]。本研究中"生理盐水稀释液"均特指该混合物。溶液使用前经高压蒸汽灭菌。
【数据】菌株:S. cerevisiae S288C(ATCC 204508);培养基:YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖);温度:30 °C;转速:200 RPM;对数期收集时间:17–18 h;稳定期收集时间:36 h;冻存甘油浓度:15%(v/v);接种量:2.2 × 10⁵ CFU/mL;解冻条件:40 °C水浴5 min;生理盐水稀释液:8.5 g/L NaCl、0.3 g/L KH₂PO₄、0.6 g/L Na₂HPO₄、0.1 g/L蛋白胨
2.2 半笼形水合物形成剂的合成与添加剂混合物制备
四丁基乳酸铵(TBAL),[N(C₄H₉)₄]⁺[CH₃CHOHCOO]⁻,通过将40.5%(w/w)四丁基氢氧化铵水溶液(Sigma-Aldrich,178780,批号BCCG6033)与88.5%(w/w)乳酸水溶液(Sigma-Aldrich,252476,批号MKCN0147)中和合成:逐滴加入酸直至溶液pH达到7.0,在精密天平(Denver Instrument A-250)上监测。加入酸的质量在化学计量所需量的0.3%至0.7%范围内,最终预期TBAL浓度为1.35 M。四丁基乙酸铵(TBAAce),[N(C₄H₉)₄]⁺[CH₃COO]⁻,仅用于验证TBAL MTT实验中观察到的趋势的可重复性。TBAAce以0.99 M水溶液购得(Thermo scientific,B24773.14,批号10227768),并在高精度天平上蒸发浓缩至与TBAL相同的摩尔浓度(1.35 M)。使用冰点渗透压仪(Advanced Instrument Model 3D3)检查渗透压,测得68 mM TBAL时为135 mOsm,50 mM TBAAce时为103 mOsm。合成后,将TBAL或TBAAce与浓缩生理盐水稀释液、D-(+)-海藻糖二水合物(Sigma-Aldrich,T9531,批号SLCH0062,纯度>99%)、二甲基亚砜(DMSO)(Sigma-Aldrich,472301,纯度>99.9%)或蒸馏水混合,制备待测配方。所有组分均通过高压蒸汽灭菌或过滤除菌。基于−70 °C暴露后预期相对存活率(由MTT活力实验测定,见补充信息第1.5节),使用三种对照作为基准:(i)CPA-1,含1.5 M DMSO与0.15 M生理盐水稀释液,预期存活率100%;(ii)CPA-2,含70 mM海藻糖与0.15 M生理盐水稀释液,预期存活率40%–60%;(iii)无CPA,仅含0.15 M生理盐水稀释液,通常存活率<40%。
【数据】TBAL合成:40.5%(w/w)四丁基氢氧化铵 + 88.5%(w/w)乳酸,滴定至pH 7.0;TBAL终浓度:1.35 M;TBAAce浓度:1.35 M;渗透压:68 mM TBAL为135 mOsm,50 mM TBAAce为103 mOsm;CPA-1:1.5 M DMSO + 0.15 M生理盐水稀释液;CPA-2:70 mM海藻糖 + 0.15 M生理盐水稀释液;无CPA对照:0.15 M生理盐水稀释液
2.3 比色MTT活力实验
此处概述方案流程,详细内容见后续各节。简言之,酿酒酵母细胞在液体培养基中培养至对数期,经离心洗涤并浓缩。将少量细胞悬液转移至高导热96孔板的各孔中,与待测添加剂混合。随后将96孔板直接放入−70 °C冰箱中放置3 d。取出后,在40 °C水浴中速融。为去除添加剂,细胞在生理盐水稀释液中进行两步洗涤稀释。随后使用比色MTT法评估细胞活力——MTT代谢为甲臜的量指示活细胞数量。甲臜用DMSO溶解,用酶标仪测定各孔吸光度(OD570)。每次实验中,使用经琼脂平板计数确定的已知稀释度生成标准曲线,以预测各孔中的CFU数。结果以相对于冻前细胞的存活率表示。
【数据】冷冻温度:−70 °C;冷冻时间:3 d;解冻温度:40 °C;检测波长:OD570;洗涤步骤:2步;标准曲线:琼脂平板计数确定
2.3.1 96孔板布局
图1展示了该方案所用96孔板的布局。每次实验可容纳16个不同浓度,每个浓度设4个重复。第9至12列通常保留给两个对照(细胞悬于0.15 M生理盐水稀释液、无添加剂)和一条6点标准曲线。标准曲线在解冻后加入孔中;在此之前,这些孔填充蒸馏水(详见后续各节)。使用8通道移液器从储液槽或板中转移溶液,按重复顺序:第1列首先填充,第5列第二,第9列第三,第2列第四,依此类推。该顺序可最大限度减少因CPA暴露和MTT孵育的时间敏感性导致的数据偏斜。
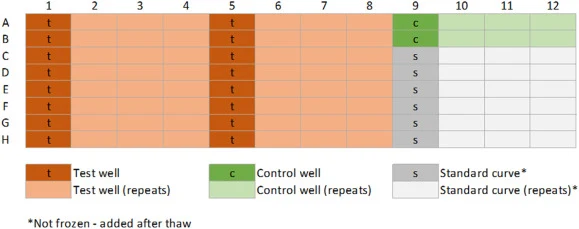
【数据】孔板:96孔;浓度数:16个;重复数:4;对照与标准曲线占用列:第9–12列;标准曲线点数:6点;移液器:8通道
2.3.2 细胞制备、CPA添加与低温暴露
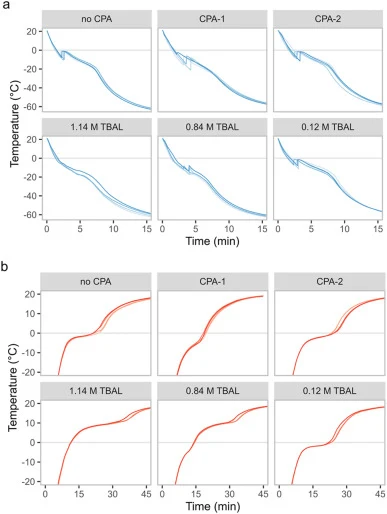
对数期酿酒酵母细胞在50 mL YPD培养基中(如上所述)培养17至18 h。随后将细胞悬液分装至四个10 mL离心管中离心形成沉淀。去除上清,细胞重悬于生理盐水稀释液。重复两次,共洗涤三次。随后离心并将细胞悬液浓缩约25倍——这是在MTT实验中稀释后获得最佳细胞数所必需的。低温暴露前的细胞计数通过琼脂平板系列稀释确定(如上所述)。约0.4 mL浓缩细胞悬液留出用于后续标准曲线制备。在室温(21 °C)下,用8通道移液器将10 μL细胞悬液转移至排列在高导热多孔"Cryo-plate"(Corning CoolRack XT PCR96)中的8联PCR管中。随后用8通道移液器将190 μL添加剂转移至细胞悬液,通过上下吹打混合。190 μL添加剂缓慢加入以限制渗透压冲击。Cryo-plate中部分孔保留给标准曲线,填充蒸馏水以确保所有孔之间冻结/解冻均匀。盖上PCR管盖,用防水密封塑料膜包裹板子,随后立即(无有意延迟)放入−70 °C冰箱3 d。四个0.2 mL生理盐水稀释液(0.15 M)样品的降温曲线见图2。从21 °C至总温差80%的平均降温速率为4.6 °C/min。
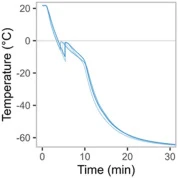
【数据】培养时间:17–18 h;洗涤次数:3次;浓缩倍数:约25倍;细胞悬液体积:10 μL;添加剂体积:190 μL;添加温度:21 °C;冷冻温度:−70 °C;冷冻时间:3 d;平均降温速率:4.6 °C/min;参比样品:0.2 mL 0.15 M生理盐水稀释液
2.3.3 解冻、CPA去除与标准曲线制备
在−70 °C暴露3 d后,取出Cryo-plate直接放入40 °C水浴中15 min,置于防水塑料套内。解冻后,用8通道移液器将20 μL细胞悬液转移至含180 μL生理盐水稀释液的96孔"Wash-plate"中,上下吹打混合。使用第二块"Wash-plate"再重复一次。通过稀释悬浮于生理盐水稀释液、在室温下保存与板子冷冻相同时间的未冻细胞,制备含4个重复的6点标准曲线。CFU在室温下3 d后测定,显示与操作前CFU无差异。标准曲线通常由相对于初始细胞浓度的以下百分比组成:60%、45%、30%、20%、10%和0%(即仅生理盐水稀释液、无细胞)。标准曲线加入第二块洗涤板,以便系统性转移至实验96孔板。
【数据】解冻温度:40 °C;解冻时间:15 min;洗涤体积:20 μL细胞悬液 + 180 μL生理盐水稀释液;洗涤次数:2次;标准曲线点数:6点;重复数:4;标准曲线相对浓度:60%、45%、30%、20%、10%、0%;CFU测定时间:室温3 d
2.3.4 MTT代谢与甲臜测定
用8通道移液器将总共10 μL洗涤后的细胞悬液转移至平底96孔板(Corning Cat. No. 351172)。向每孔……(原文节选至此结束)
【数据】细胞悬液体积:10 μL;板型:平底96孔板(Corning Cat. No. 351172);原文未详述后续试剂用量与孵育条件
研究结果
3.1 −70 °C暴露后的细胞活力
采用比色MTT法评估对数期酿酒酵母细胞在不同半笼形水合物形成剂混合物中于−70 °C暴露3 d后的冻后活力,结果见图3a(TBAL)、图3b(TBAL+70 mM海藻糖)、图3c(TBAL+70 mM DMSO)和图3d(TBAAce),各代表独立实验。表格结果见补充信息。所有半笼形水合物形成混合物均含固定浓度70 mM生理盐水稀释液,并与3种对照比较:高效CPA(CPA-1:1.5 M DMSO + 0.15 M生理盐水稀释液)、中等效CPA(CPA-2:70 mM海藻糖 + 0.15 M生理盐水稀释液)和无CPA(0.15 M生理盐水稀释液)。所有存活率均相对于CPA-1均值归一化。由于样本量小及实验间方差,各实验中CPA-1、CPA-2和生理盐水的平均存活率存在差异(图3a–d)。但对照的存活率与 elsewhere 报道的−70至−80 °C保存酿酒酵母细胞结果相似(见参考文献[29])。在所有情况下,细胞活力严重依赖半笼形水合物形成剂浓度。添加60 mM TBAL或TBAAce在所有情形下均显著提高冻后存活率至无CPA对照以上,但在120至240 mM以上,存活率一般等于或低于生理盐水对照。具体而言,细胞悬于TBAL时(图3a),TBAL浓度增至120 mM以上导致存活率下降,至0.84 M TBAL时最低为9 ± 3%。随后存活率在1.14 M TBAL时回升至34 ± 7%,再在1.21 M TBAL时略降至27 ± 3%。向TBAL中添加70 mM海藻糖(图3b)使TBAL摩尔浓度在30至240 mM之间的冻后存活率提高至约77%——高于CPA-2对照的48 ± 8%。然而,存活率在0.48 M TBAL时急剧下降,0.72 M以上几乎完全丧失活力。向TBAL中添加70 mM DMSO(图3c)对存活率的正向作用较海藻糖温和,TBAL摩尔浓度30至240 mM之间冻后存活率约为59%。但与添加海藻糖类似,DMSO在0.48 M TBAL时引起相似的存活率下降——0.72 M TBAL及以上时存活率等于或低于无CPA对照。为验证图3a趋势的可重复性,还评估了细胞悬于类似半笼形水合物形成剂TBAAce时的活力(图3d)。观察到相似趋势,但浓度低于TBAL——30和60 mM TBAAce时最高存活率约54%。存活率在120 mM TBAAce时急剧下降,最低约15%(0.24至0.84 M TBAAce),随后在1.02 M TBAAce及以上略回升至约30%。
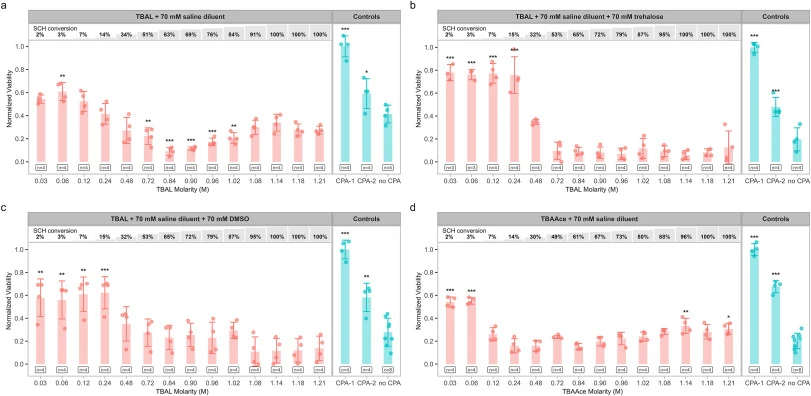
【数据】暴露温度:−70 °C;暴露时间:3 d;TBAL最低存活率:9 ± 3%(0.84 M);TBAL 1.14 M存活率:34 ± 7%;TBAL 1.21 M存活率:27 ± 3%;TBAL+海藻糖30–240 mM存活率:约77%;CPA-2对照存活率:48 ± 8%;TBAL+DMSO 30–240 mM存活率:约59%;TBAAce最高存活率:约54%(30和60 mM);TBAAce最低存活率:约15%(0.24–0.84 M);TBAAce 1.02 M以上存活率:约30%;固定生理盐水稀释液浓度:70 mM
3.2 −70 °C暴露后的菌落形成能力
图4显示对数期酿酒酵母细胞在含60 mM TBAL、DMSO或海藻糖(各含70 mM生理盐水稀释液)的悬液中于−70 °C保存3 d后的菌落形成能力。平均菌落形成能力为TBAL 92 ± 11%、DMSO 84 ± 11%、海藻糖76 ± 5%。与含70或150 mM生理盐水稀释液的对照相比,后者菌落形成能力分别为43 ± 7%和17 ± 1%。悬于0.84 M或1.21 M TBAL(含70 mM生理盐水稀释液)的对数期细胞未回收到菌落(数据未显示)。图5展示稳定期酿酒酵母细胞(已知对环境胁迫更具韧性[22,33])在含1.21 M TBAL与70 mM生理盐水稀释液中于−70 °C保存长达7 d的结果。菌落形成能力在整个保存期内保持约30%恒定。相比之下,CPA-2对照(70 mM海藻糖 + 0.15 M生理盐水稀释液)在相同7 d期内未显示可察觉的培养力下降。
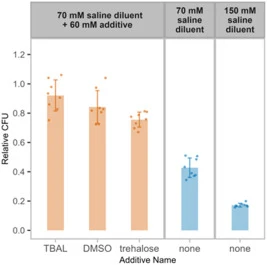
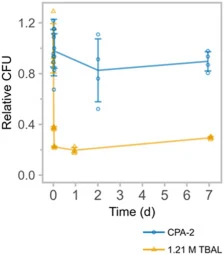
【数据】添加剂浓度:60 mM TBAL/DMSO/海藻糖(各含70 mM生理盐水稀释液);保存温度:−70 °C;保存时间:3 d(图4)/7 d(图5);菌落形成能力:TBAL 92 ± 11%、DMSO 84 ± 11%、海藻糖76 ± 5%;70 mM生理盐水对照:43 ± 7%;150 mM生理盐水对照:17 ± 1%;0.84 M和1.21 M TBAL:0菌落;稳定期细胞1.21 M TBAL:约30%(7 d);CPA-2:无显著下降
3.3 半笼形水合物形成剂(TBAL)的毒性与渗透性
评估酿酒酵母在21 °C暴露于0.4至1.2 M TBAL后的菌落形成能力(图6a,对数期细胞;图6b,稳定期细胞)。对数期细胞暴露于0.8 M TBAL 2 h后未回收到菌落,1.2 M TBAL下15 min内完全丧失培养力。相比之下,稳定期细胞耐受1.2 M TBAL长达1 h,但菌落数降至初始值的26 ± 2%。为区分化学毒性与渗透毒性,将稳定期细胞暴露于1.2 M NaCl;1 h内未观察到菌落形成能力下降(数据未显示)。使用碘化丙啶(PI)染色评估稳定期细胞的膜完整性。暴露于1.2 M TBAL 30 min后,几乎所有细胞群体呈PI阳性(图7a),与PI阴性对照(图7b)形成对比。作为参照,PI阳性对照见图7c。使用收缩–膨胀实验检查对数期细胞中TBAL的渗透性(图8)。暴露后,细胞体积在2 min内降至初始值的36%,随后在24 min后部分恢复至47%。相比之下,暴露于等摩尔NaCl溶液导致2 min时初始收缩至67%,18 min时略降至61%。
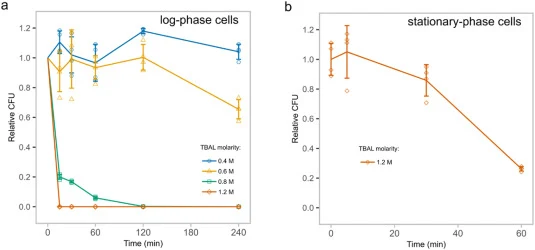
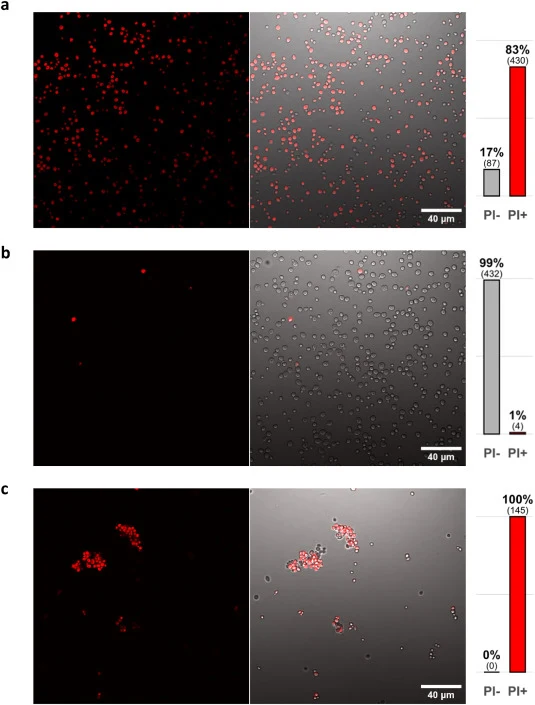
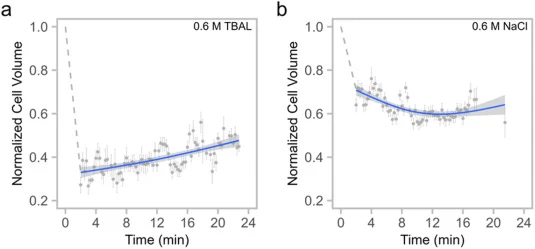
【数据】暴露温度:21 °C;TBAL浓度范围:0.4–1.2 M;对数期细胞0.8 M TBAL:2 h无 colony;对数期细胞1.2 M TBAL:15 min内完全丧失培养力;稳定期细胞1.2 M TBAL 1 h:26 ± 2%;1.2 M NaCl 1 h:无下降;PI染色:1.2 M TBAL 30 min几乎全阳性;收缩–膨胀:TBAL 2 min体积36%、24 min恢复至47%;NaCl 2 min体积67%、18 min 61%
3.4 TBAL半笼形水合物形成的热力学与动力学特征
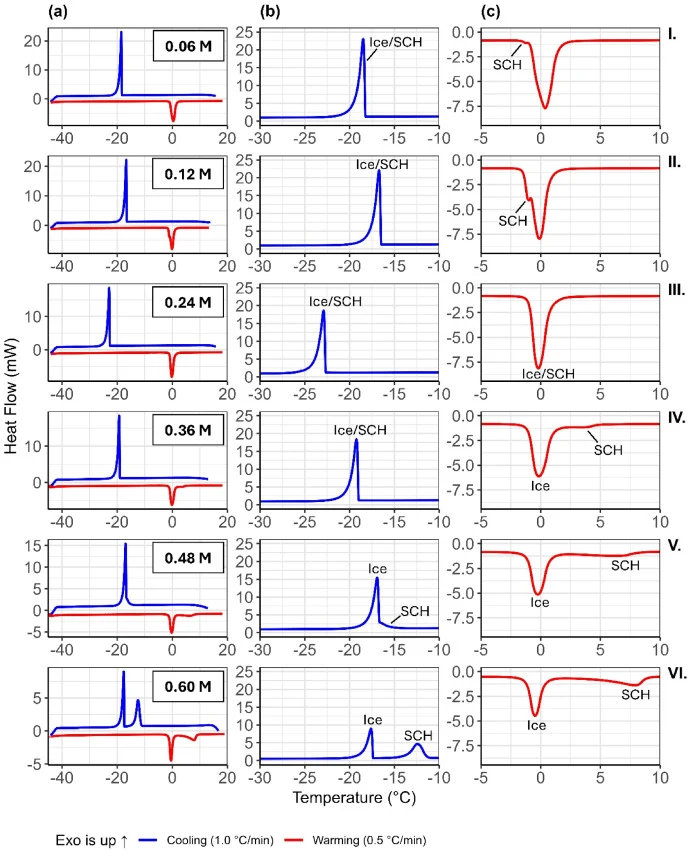
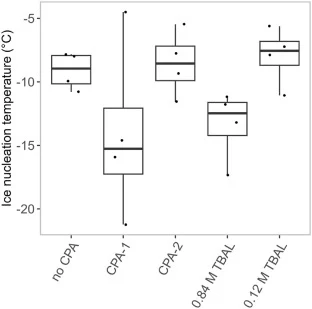
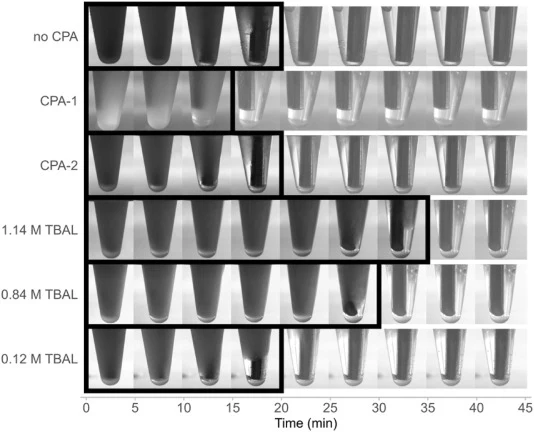
半笼形水合物相平衡与能量学复杂,TBAL已有详细研究[30,49]。据报道TBAL(含或不含海藻糖)存在三种可能多晶型,标记为多晶型A、B和C,最大解离温度约12 °C(多晶型C)。对于0.6 M以上TBAL浓度,在1或0.5 °C/min降温速率下,半笼形水合物总是先于冰成核[49]。然而,低于0.6 M的半笼形水合物形成剂浓度尚未充分研究。图9显示0.06至0.6 M TBAL样品以1 °C/min冷却至−45 °C、随后以0.5 °C/min升温的热分析图。半笼形水合物成核放热可通过起始后热流的逐渐增加与冰引起的急剧增加相区分。例如,如图9b第VI面板所示,0.6 M TBAL在冷却过程中半笼形水合物先于冰成核。0.06至0.36 M TBAL,冷却过程中冰先于半笼形水合物成核,半笼形水合物放热无法区分,合并为冰放热的一部分。升温时,0.06和0.12 M TBAL至少一种半笼形水合物多晶型在低于冰的温度解离。0.24 M TBAL时,半笼形水合物与冰吸热无法区分地合并。0.36、0.48和0.60 M TBAL时,至少一种半笼形水合物多晶型在高于冰的温度解离。图10–12显示1.14、0.84和0.12 M TBAL样品(均含70 mM生理盐水稀释液)与CPA-1(1.5 M DMSO + 0.15 M生理盐水稀释液)、CPA-2(70 mM海藻糖 + 0.15 M生理盐水稀释液)和"无CPA"(0.15 M生理盐水稀释液)的宏观动力学评估结果。样品对应图3a。1.14 M TBAL浓度下,图10a中未观察到冰形成引起的温度急剧升高。升温时,1.14 M TBAL样品显示半笼形水合物约12 °C解离(图10b),且如图12所示,在室温(21 °C)下解离所需时间几乎是冰融化时间的两倍。0.84 M TBAL样品的冰成核温度降至−13.4 °C,而无CPA对照为9.1 °C,如图11所示。
【数据】DSC降温速率:1 °C/min;DSC升温速率:0.5 °C/min;DSC最低温度:−45 °C;TBAL浓度范围:0.06–0.6 M;最大解离温度:约12 °C(多晶型C);1.14 M TBAL半笼形水合物解离温度:约12 °C;解离时间:约为冰融化的2倍(21 °C);0.84 M TBAL冰成核温度:−13.4 °C;无CPA对照冰成核温度:9.1 °C;宏观样品体积:0.2 mL;重复数:n = 4
3.5 细胞存在下TBAL半笼形水合物形成的可视化
在4 °C温度台上对1.21 M TBAL溶液成像时,观察到两种不同的半笼形水合物晶体形态(图13)。块状多边形晶体见图13a,针状……(原文节选至此结束)
【数据】TBAL浓度:1.21 M;成像温度:4 °C;晶体形态:块状多边形、针状(原文节选至此结束);原文未详述后续定量数据
讨论与解读
对悬于水溶液的细胞而言,冰形成导致细胞与溶质在冰晶间残余环境中被浓缩。因此,水从细胞流出、细胞收缩始终是冷冻的结果[26]。但在半笼形水合物形成情况下,转化为晶相的液态水摩尔数取决于半笼形水合物多晶型的水合数Hn(形成一个半笼形水合物晶胞所需半笼形水合物形成剂与水的摩尔比)。对TBAL而言,这意味着半笼形水合物形成过程中,残余环境每移除约30个水分子,也会移除一个TBAL分子(近似Hn为29.8[30])。TBAL进入半笼形水合物晶相可能导致残余环境相对于初始张力呈低渗、等渗或高渗(见补充信息第3节)。鉴于细胞对渗透压胁迫的敏感性,这一特性可能影响了本研究中观察到的存活率。然而,对数期细胞的毒性阈值为0.6 M,超过后2 h培养力开始下降(图6a)。这一毒性限制反映在−70 °C暴露后的活力结果中,0.48 M TBAL以上冻后回收普遍较差(图3和图4)。
编译者解读:本研究以TBAL为模型,首次将半笼形水合物形成剂引入酵母冷冻保存,概念新颖。方法上采用96孔板高通量MTT筛选结合菌落计数验证,逻辑严谨。但TBAL的膜毒性与不可渗透性构成硬约束,使其有效窗口被压缩在60 mM附近,难以发挥半笼形水合物在更高浓度下的渗透调节优势。未来需通过结构改造降低阳离子膜毒性,或将其定位为低浓度辅助添加剂,与DMSO/海藻糖联用以减少常规CPA用量。
参考来源
期刊:Cryobiology, 2026
DOI: 10.1016/j.cryobiol.2026.105726
DOI: 10.1016/j.cryobiol.2026.105726