来源:Functional characterization of CqCYP86A1a and CqCYP86A1b in root suberin biosynthesis in Chenopodium quinoa(Journal of Plant Physiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
藜麦是典型的盐生植物,其根系木栓质在盐胁迫下显著增强。本研究从藜麦中鉴定出两个CYP86A1同源基因CqCYP86A1a与CqCYP86A1b,二者均在根中优势表达并受盐诱导。通过异源互补、烟草瞬时表达与定点突变,作者证明两者功能保守但活性分化,CqCYP86A1b的三个底物识别位点变异影响其酶活与蛋白丰度,为盐生植物木栓质屏障的分子设计提供了新靶点。
研究背景
木栓质是一种疏水性屏障,沉积于根、种皮和伤口部位的细胞壁上,防止水分流失——这一特性被认为是种子植物演化的重要基础。木栓质还沉积于根内皮层和外皮层,与凯氏带共同调控矿质营养吸收。根系木栓质完全缺失会显著降低拟南芥对干旱和盐胁迫的耐受性;反之,木栓质过度积累则大幅降低Ca、Mn、Zn的吸收。木栓质生物合成受干旱、盐和养分胁迫的动态调控:外源供应Al和NaCl明显促进根系木栓化,而Fe、Mn、Zn缺乏则显著抑制木栓质生成。
木栓质主要由芳香族和脂肪族单体组成,包括长链(C16–C18)和超长链(VLC,C20–C26)脂肪酸及其衍生的ω-羟基脂肪酸(ω-OH-FAs)、α,ω-二羧酸(DCAs)和伯醇。在拟南芥中,CYP86A1编码脂肪酸ω-羟化酶,是木栓质单体生物合成所必需的关键酶,在拟南芥、水稻和番茄中均发挥重要作用。然而,CYP86A1的功能在典型盐生植物藜麦中是否保守尚不清楚。
研究方法
2.1 植物材料与生长条件
本研究使用藜麦(Chenopodium quinoa,Q75)和拟南芥(Arabidopsis thaliana,Columbia-0,Col-0)种子。cyp86a1突变体(Salk_146813)购自AraShare(https://www.arashare.cn)。藜麦和拟南芥的种子消毒、萌发与生长按本课题组此前描述的方法进行(Wang et al., 2025)。为考察盐胁迫对藜麦生长的影响,将3日龄幼苗转移至含0、100、200或300 mM NaCl的培养基中继续培养6天,随后测量下胚轴和根长。为分析CqCYP86A1a/b的基因表达,收集土培6周龄藜麦植株的不同组织以及5日龄藜麦幼苗。同时,将半MS培养基上生长的5日龄藜麦幼苗转移至含300 mM NaCl的新鲜半MS培养基中,于盐胁迫处理后0、3、6、9、12和24 h收集根用于RNA提取。为进行木栓质单体分析,将土培4周龄藜麦植株用300 mM NaCl溶液处理两周后收获根。收集半MS培养基上生长的6日龄拟南芥用于根系木栓化的尼罗红染色,同时收获土培3周龄拟南芥植株的根用于木栓质化学组成分析。
【数据】材料:藜麦Q75、拟南芥Col-0、cyp86a1突变体Salk_146813;盐浓度:0、100、200、300 mM NaCl;处理时间:6天(幼苗生长)、2周(木栓质分析);取样时间点:0、3、6、9、12、24 h;植株年龄:3日龄、5日龄、6日龄、3周龄、4周龄、6周龄
2.2 RT-PCR与RT-qPCR分析
使用Flying SharkTM Universal Plant RNA Kit(gDNA-Filter)(TianYi RuiLin,南京,中国)从藜麦根或拟南芥幼苗中提取总RNA,并用Hifair AdvanceFast 1st Strand cDNA synthesis Kit(Yeasen,上海,中国)合成cDNA。RT-PCR用于检测拟南芥转基因株系(cyp86a1背景)中CqCYP86A1a/b转录本水平,以AtACTIN2作为内参。RT-qPCR在CFX96系统(BIO-RAD)上进行,检测盐胁迫后藜麦根中CqCYP86A1a/b的表达水平。20 μL反应体系含10 ng藜麦cDNA模板和SYBR Hieff UNICON Advanced qPCR SYBR Master Mix(Yeasen,上海,中国),运行程序为:95°C 2 min,随后40个循环的95°C 10 s、60°C 30 s。引物的扩增效率和特异性经RT-qPCR验证,采用2−ΔΔCt法并以CqUBQ10为内参基因定量基因表达(Livak and Schmittgen, 2001)。RT-PCR和RT-qPCR引物列于表S1。
【数据】反应体系:20 μL;模板量:10 ng cDNA;预变性:95°C 2 min;循环数:40;变性:95°C 10 s;退火/延伸:60°C 30 s;内参基因:AtACTIN2(RT-PCR)、CqUBQ10(RT-qPCR);定量方法:2−ΔΔCt
2.3 拟南芥转基因株系的构建
从1周龄藜麦根cDNA中扩增CqCYP86A1a/b的全长编码序列,克隆至pFGC-eYFP载体,分别构建Pro35S::CqCYP86A1a-YFP和Pro35S::CqCYP86A1b-YFP载体。两个载体进一步通过农杆菌EHA105介导的花序浸染法转化拟南芥cyp86a1突变体(Clough and Bent, 1998)。每个基因选取两个单T-DNA插入的独立转基因株系,T3代纯合株系用于后续表型分析。
【数据】载体:pFGC-eYFP;启动子:Pro35S;农杆菌菌株:EHA105;转化方法:花序浸染法;株系代次:T3纯合体;每基因株系数:2个独立株系
2.4 本氏烟草叶片瞬时表达
使用DNA Assembly Mix Ultra(Yugong Biotech,中国)在Pro35S::CqCYP86A1b-YFP中引入定点突变,构建Pro35S::CqCYP86A1b^F290V-YFP、Pro35S::CqCYP86A1b^N341K-YFP和Pro35S::CqCYP86A1b^T504M-YFP载体。这些载体随后按此前描述的方法瞬时转化本氏烟草叶片(Sparkes et al., 2006)。浸润3天后,使用活体植物成像系统Lumazone PyLoN1300B(Teledyne Princeton Instruments,上海,中国)捕获YFP荧光信号。此外,将所有版本的Pro35S::CqCYP86A1a/b-YFP单独或与Pro35S::AtMYB41共表达6天后,收集烟草叶片用于木栓质单体分析(Su et al., 2023)。
【数据】突变位点:F290V、N341K、T504M;载体:Pro35S::CqCYP86A1b-YFP衍生;荧光检测时间:浸润后3天;木栓质取样时间:共表达后6天;成像系统:Lumazone PyLoN1300B
2.5 木栓质单体分析
藜麦和拟南芥根及烟草叶片的木栓质单体分析按本课题组此前描述的方法进行(Wang et al., 2026)。简言之,样品于85°C异丙醇中浸提30 min,残渣转移至氯仿:甲醇(1:1,v:v)混合液中振荡24 h。溶剂更换四次以完全去除游离脂质,随后样品干燥至恒重。取10–20 mg样品加入3.6 mL甲醇、0.9 mL乙酸甲酯和1.5 mL甲醇钠的混合液,于60°C加热2 h进行酯交换。加入ω-十五内酯和十七烷酸酯作为内标。冷却后,加入10 mL二氯甲烷、1.5 mL冰醋酸和10 mL 0.5 M NaCl的混合液,涡旋提取木栓质单体。用10 mL 0.5 M NaCl洗涤两次后,向有机溶剂中加入6 g无水硫酸钠以完全去除水分。样品经氮气吹干,进一步用BSTFA(N,O-双三甲基硅基三氟乙酰胺)于60°C衍生化1 h。氮气吹干后,样品溶于二氯甲烷,通过气相色谱-火焰离子化检测器(GC-FID)分析。根系木栓化分析中,6日龄拟南芥幼苗于37°C在33 μg/mL尼罗红中浸泡30 min,随后用水洗涤三次。样品进一步用苯胺蓝室温复染1 h,用水洗涤三次。藜麦方面,将3日龄幼苗转移至含0、100、200或300 mM NaCl的培养基中继续培养6天,随后收集根并进行横切和氟黄(Fluorol Yellow)木栓质染色,方法同前(Wang et al., 2026)。尼罗红和氟黄染色信号分别使用DMi8显微镜(Leica,Wetzlar,德国)配TXR滤光片(激发540–580 nm,发射592–668 nm)和GFP滤光片(激发450–490 nm,发射500–550 nm)捕获。
【数据】浸提温度/时间:85°C、30 min;振荡时间:24 h;溶剂更换次数:4次;样品量:10–20 mg;酯交换体系:3.6 mL甲醇+0.9 mL乙酸甲酯+1.5 mL甲醇钠;酯交换温度/时间:60°C、2 h;内标:ω-十五内酯、十七烷酸酯;洗涤:10 mL 0.5 M NaCl×2;干燥剂:6 g无水硫酸钠;衍生化试剂:BSTFA;衍生化温度/时间:60°C、1 h;检测:GC-FID;尼罗红浓度:33 μg/mL;染色温度/时间:37°C、30 min;苯胺蓝复染:室温、1 h;氟黄染色激发/发射:540–580 nm/592–668 nm;GFP滤光片:450–490 nm/500–550 nm
2.6 CqCYP86A1a/b与油酸的分子对接
CqCYP86A1a结构由AlphaFold2预测(Cheng et al., 2023),从UniProt数据库(https://www.uniprot.org/)下载。采用AutoDock Vina 1.2研究油酸底物与CqCYP86A1a蛋白的结构互作。蛋白经MGLTools和Autodock Tools v.1.5.7(The Scripps Research Institute)添加极性氢并分配部分电荷后用于对接。每次对接运行生成十个模型,选择结合亲和力最优的模型用于进一步分析。所有结构图使用PyMOL(https://pymol.org/)生成。
【数据】结构预测工具:AlphaFold2;对接软件:AutoDock Vina 1.2;配体:油酸;每次对接模型数:10个;结构可视化:PyMOL
2.7 统计分析
统计分析使用GraphPad Prism v.9.0(San Diego, CA, USA)进行,显著性差异(P < 0.05)通过单因素方差分析(one-way ANOVA)结合Tukey's HSD事后检验或Student's t检验确定。
【数据】软件:GraphPad Prism v.9.0;显著性阈值:P < 0.05;方法:one-way ANOVA + Tukey's HSD或Student's t-test
2.8 登录号
本研究提及的所有基因序列均可在NCBI数据库获取,登录号如下:CqCYP86A1a(LOC110688292)、CqCYP86A1b(LOC110683428)、CqUBQ10(LOC110723743)、AtCYP86A1(AT5G58860)、AtMYB41(AT4G28110)和AtACTIN2(AT3G18780)。
【数据】基因登录号:CqCYP86A1a LOC110688292;CqCYP86A1b LOC110683428;CqUBQ10 LOC110723743;AtCYP86A1 AT5G58860;AtMYB41 AT4G28110;AtACTIN2 AT3G18780
研究结果
3.1 盐胁迫促进藜麦根木栓质单体生物合成
为考察盐胁迫对藜麦生长的影响,将3日龄幼苗用100、200和300 mM NaCl处理6天(图1A)。与对照相比,盐胁迫显著降低藜麦幼苗的下胚轴和根长。这种生长抑制呈剂量依赖性,300 mM NaCl处理抑制最强(图1A、B和1C)。随后对根进行横切并用氟黄染色以观察木栓质沉积。我们观察到木栓质特异性地沉积于藜麦根内皮层,且该模式在盐胁迫下保持不变(图S1)。在藜麦根中,木栓质单体主要由四类化学物质组成:脂肪酸、ω-OH-FAs、DCAs和伯醇(Wang et al., 2026)。其中,C18:1 ω-OH-FA及其衍生的C18:1 DCA是木栓质中的主要单体(图1D和E)。为考察盐胁迫对藜麦根木栓质生物合成的影响,将4周龄藜麦植株用300 mM NaCl处理2周,随后按本课题组此前描述的方法收获根进行木栓质单体分析(Wang et al., 2026)。与水处理的对照植株相比,盐处理藜麦植株根中除脂肪酸外所有类别的脂肪族木栓质单体均显著增加(图1D和E)。在这些木栓质单体中,C18:1 ω-OH-FA、C16:0和C18:1 DCAs以及C20:0伯醇的增幅相对较高,分别达到对照植株的118.5%、118.3%、120.7%和121.7%(图1D和E)。综上,这些结果表明盐胁迫正向调控藜麦根木栓质生物合成。
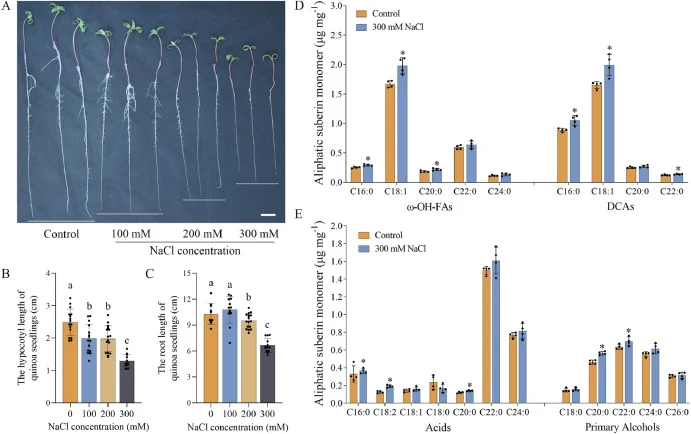
【数据】盐浓度:100、200、300 mM NaCl;处理时间:6天(幼苗)、2周(木栓质分析);C18:1 ω-OH-FA增幅:118.5%;C16:0 DCA增幅:118.3%;C18:1 DCA增幅:120.7%;C20:0伯醇增幅:121.7%;主要单体:C18:1 ω-OH-FA、C18:1 DCA;沉积部位:根内皮层
3.2 藜麦CYP86A1同源基因的分子鉴定
在拟南芥中,CYP86A1已被报道是参与ω-OH-FA和DCA单体生物合成的关键酶(Höfer et al., 2008),而这两个单体也是藜麦根在盐胁迫下被诱导的主要木栓质单体(图1D和E)。在藜麦中,我们近期的研究鉴定了两个CYP86A1同源基因CqCYP86A1a和CqCYP86A1b(Wang et al., 2026)。与AtCYP86A1类似,CqCYP86A1a/b均含有一个跨膜结构域、一个细胞色素P450结构域和六个保守的底物识别位点(SRSs)(图2A和S2),后者是控制CYP86A1活性的潜在区域(Duan and Schuler, 2005)。为研究CqCYP86A1a/b的时空表达,对不同藜麦组织进行RT-qPCR分析。由于CqCYP86A1a与CqCYP86A1b序列高度同源,设计了特异性引物,并对根cDNA扩增的相应PCR产物进行测序以确认引物特异性(图S3A和S3B)。在6周龄藜麦植株中,两个基因呈现相似的表达模式,根中转录本丰度高,叶、茎和穗中较低(图2B)。值得注意的是,CqCYP86A1a/b的最高表达也在5日龄幼苗中检测到,这主要归因于其在根中的强表达(图2C)。这些结果表明CqCYP86A1a/b主要在藜麦根中表达。为考察根中CqCYP86A1a/b的表达是否受盐胁迫诱导,对300 mM NaCl处理不同时间点的5日龄藜麦植株根进行RT-qPCR(图2D)。如图2D所示,两个基因的表达水平在盐处理后6、9和12 h显著上调,随后在处理后24 h开始恢复。值得注意的是,盐胁迫后6、9、12和24 h,CqCYP86A1b的表达显著高于CqCYP86A1a(图2D),表明CqCYP86A1a/b可能在藜麦根木栓质生物合成中发挥不同作用。
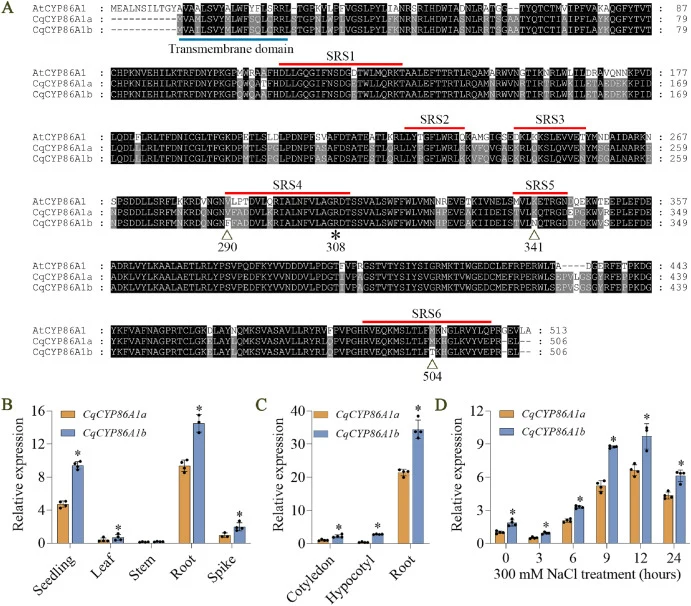
【数据】基因:CqCYP86A1a、CqCYP86A1b;结构域:跨膜结构域、细胞色素P450结构域、6个保守SRSs;表达部位:根(高)、叶/茎/穗(低);幼苗年龄:5日龄、6周龄;盐浓度:300 mM NaCl;诱导时间点:6、9、12 h显著上调,24 h恢复;CqCYP86A1b表达高于CqCYP86A1a的时间点:6、9、12、24 h
3.3 CqCYP86A1a/b过表达均恢复拟南芥cyp86a1突变体幼根的木栓质发育缺陷
为研究CqCYP86A1a/b是否在木栓质生物合成中发挥功能,构建Pro35S::CqCYP86A1a-YFP和Pro35S::CqCYP86A1b-YFP并稳定转化拟南芥cyp86a1背景(图S3C),该背景中AtCYP86A1转录本完全缺失(图S3D),以生成相应的转基因互补株系。每个基因随机选取两个株系用于进一步分析,并通过RT-PCR检测这些株系中CqCYP86A1a/b的表达(图S3D)。RT-qPCR分析显示,在四个株系中,CqCYP86A1b OE-2和OE-13株系中CqCYP86A1a/b表达水平相对较高,而CqCYP86A1a OE-13表达最低(图3A)。随后,按本课题组此前描述的方法对6日龄拟南芥幼苗进行尼罗红染色以检查这些株系的根系木栓化(Wang et al., 2026)。与野生型Col-0相比,cyp86a1根中尼罗红染色荧光强度显著降低(图3B),木栓化发育区域显著延迟(图3C),表明CYP86A1在拟南芥根系木栓化发育中发挥重要作用。当过表达CqCYP86A1a/b任一基因时,木栓质染色信号明显恢复(图3B),且所有转基因互补株系中cyp86a1的根系木栓化缺陷均完全恢复,其中CqCYP86A1a OE-13、CqCYP86A1b OE-2和CqCYP86A1b OE-13甚至有显著增强(图3C)。综上,这些结果表明CqCYP86A1a/b与AtCYP86A1在根系木栓化发育中具有保守功能。CqCYP86A1b过表达加剧cyp86a1 3周龄根的木栓质生物合成缺陷。除幼根外,我们还检测了3周龄拟南芥根木栓质单体的组成。在cyp86a1根中,与先前报道一致(Höfer et al., 2008; Wang et al., 2020),木栓质单体总量显著降低至野生型的59.1%,尤其是C16:0和C18:1 ω-OH-FAs及其衍生的DCAs(图4和S4)。与cyp86a1相比,CqCYP86A1a或CqCYP86A1b过表达株系中木栓质单体含量均未恢复(图4和S4)。相反,在CqCYP86A1b OE-13株系中,所有类别的脂肪族木栓质单体均显著降低,包括几乎所有ω-OH-FAs、C20-C24脂肪酸、C18:1和C22:0 DCAs、C22:0和C24:0伯醇(图4)。综上,这些结果表明CqCYP86A1b在抑制脂肪族木栓质生物合成中还具有独特作用。
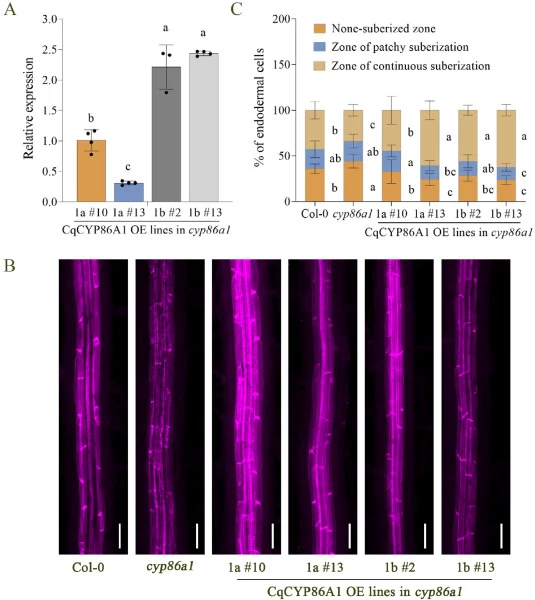
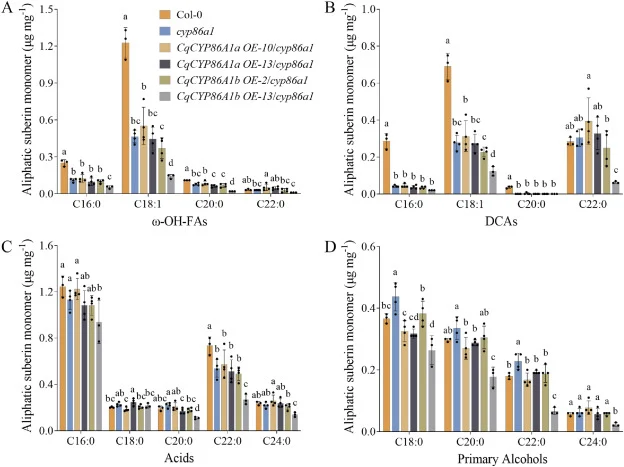
【数据】拟南芥株系:cyp86a1背景、CqCYP86A1a OE-13、CqCYP86A1b OE-2、CqCYP86A1b OE-13;幼苗年龄:6日龄(染色)、3周龄(单体分析);尼罗红浓度:33 μg/mL;cyp86a1木栓质单体总量:野生型的59.1%;CqCYP86A1b OE-13降低的单体:ω-OH-FAs、C20-C24脂肪酸、C18:1和C22:0 DCAs、C22:0和C24:0伯醇
3.4 CqCYP86A1a/b瞬时表达分别促进和抑制烟草叶片中AtMYB41介导的木栓质生物合成
为进一步分析CqCYP86A1a/b在木栓质单体生物合成中的功能差异,按先前报道建立本氏烟草叶片瞬时表达系统(Kosma et al., 2014),并稍作修改。正常条件下,烟草叶片中木栓质生物合成途径无活性,即使瞬时表达AtCYP86A1(图S5)——拟南芥木栓质生物合成的关键基因(Benveniste et al., 1998)——也是如此。然而,瞬时表达AtMYB41或其来自其他物种的同源基因(编码正向调控木栓质生物合成的关键转录因子)(Kosma et al., 2014; Wei et al., 2020; Zhang et al., 2020; Wang et al., 2021),可激活烟草叶片中多个内源木栓质生物合成基因的表达,包括NnCYP86A1、NnKCS2、NnFAR3(Wei et al., 2020)。本研究中,我们还发现瞬时表达AtMYB41引起烟草叶片中木栓质单体的异位积累,包括脂肪酸、ω-OH-FAs、DCAs和伯醇(图S5),与先前发现一致(Kosma et al., 2014; Wei et al., 2020)。同时,AtCYP86A1与AtMYB41共表达进一步促进烟草叶片中总木栓质单体积累,达到……的174.95%(原文此处截断)。
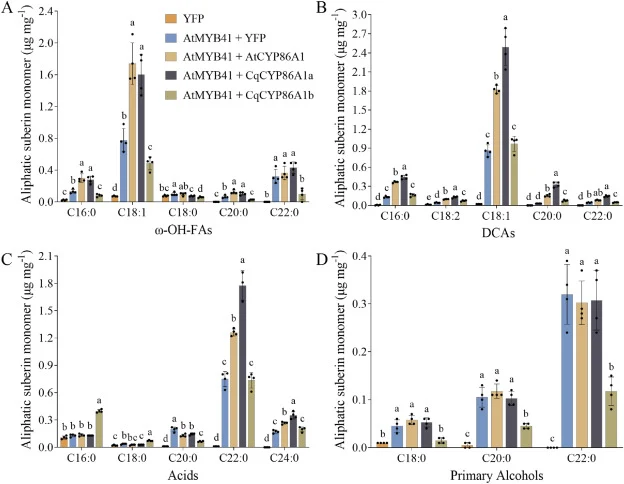
【数据】表达系统:本氏烟草叶片瞬时表达;转录因子:AtMYB41;内源基因:NnCYP86A1、NnKCS2、NnFAR3;共表达AtCYP86A1+AtMYB41总木栓质单体:174.95%(原文截断处数值);单体类别:脂肪酸、ω-OH-FAs、DCAs、伯醇
3.5 CqCYP86A1b的V290F、K341N和M504T变异影响木栓质生物合成与蛋白丰度
序列比较显示,CqCYP86A1b中的三个变异V290F、K341N和M504T位于保守的底物识别位点。为进一步研究这些变异对CqCYP86A1b功能的影响,构建了三个定点突变载体并在烟草叶片中进行瞬时表达。分子对接显示CqCYP86A1a蛋白(浅蓝色)与油酸(青色)的结合模式,底物结合口袋中的接触残基以小麦色显示(图6A和B)。木栓质单体分析表明,与CqCYP86A1b相比,V290F和M504T变异显著影响CqCYP86A1b活性和蛋白丰度(图6C)。K341N变异对CqCYP86A1b功能的影响在原文节选中未详述。
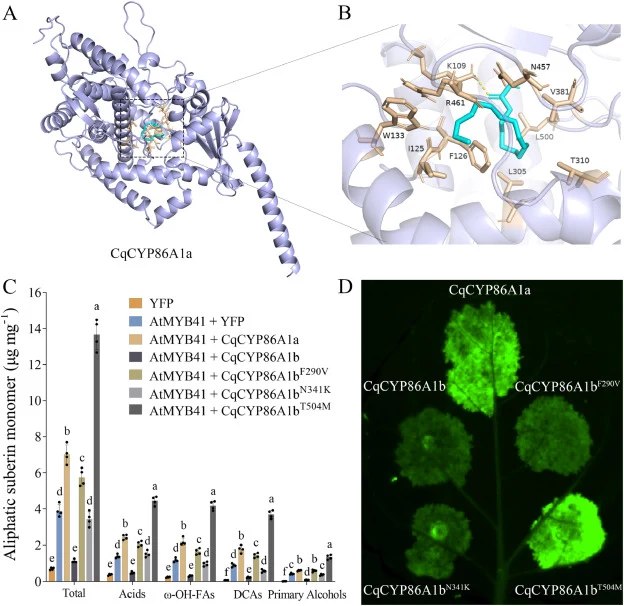
【数据】变异位点:V290F、K341N、M504T;配体:油酸;对接模型数:10个;显著影响活性和蛋白丰度的变异:V290F、M504T
讨论与解读
拟南芥CYP86A1及其同源基因CYP86A2/ATT1、CYP86A4、CYP86A7和CYP86A8/LCR属于细胞色素P450的CYP86分支(Duan and Schuler, 2005)。这五个蛋白均能催化C12至C18脂肪酸的ω-羟化(Benveniste et al., 1998; Wellesen et al., 2001; Duan and Schuler, 2005),并负责拟南芥不同组织的角质和木栓质生物合成(Wellesen et al., 2001; Xiao et al., 2004; Höfer et al., 2008; Li-Beisson et al., 2009)。与其他同源基因相比,CYP86A1在根中特异性表达(Duan and Schuler, 2005; Höfer et al., 2008),其功能缺失导致拟南芥、马铃薯、番茄、杨树、水稻和大豆木栓质发育与生物合成严重缺陷(Höfer et al., 2008; Serra et al., 2009; Wang et al., 2020; Cantó-Pastor et al., 2024; Huang et al., 2024; Yeung et al., 2026)。本研究在藜麦中鉴定了两个CYP86A1同源基因CqCYP86A1a和CqCYP86A1b,发现二者均在藜麦根中特异性表达(图2B和C)。同时,两个基因的过表达均能完全恢复拟南芥cyp86a1幼苗的根系木栓化缺陷(图3)。此外,与AtCYP86A1类似,CqCYP86A1a共表达进一步促进AtMYB41介导的烟草叶片中ω-OH-FA和DCA木栓质单体的异位积累(图5和S6)。这些结果表明CYP86A1功能在藜麦这一盐生植物中保守,同时CqCYP86A1b的独特变异赋予其抑制木栓质合成的特殊角色。
编译者解读:该研究以盐生植物藜麦为对象,通过异源互补与烟草瞬时表达拆解了两个高度同源CYP86A1拷贝的功能分化,方法路线清晰、证据链完整。对合成生物学而言,CqCYP86A1a可作为增强根系木栓质屏障的候选元件,用于提高作物耐盐抗旱性;而CqCYP86A1b的显性负效应提示多拷贝基因工程中需警惕同源抑制。局限在于木栓质单体分析依赖GC-FID而非更灵敏的质谱,且CqCYP86A1b抑制机制尚未在藜麦自身遗传背景中验证。
参考来源
期刊:Journal of Plant Physiology, 2026
DOI: 10.1016/j.jplph.2026.154890
DOI: 10.1016/j.jplph.2026.154890