来源:ATP-free fatty aldehyde biosynthesis enables an autonomous lux-based bioluminescence system(iScience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
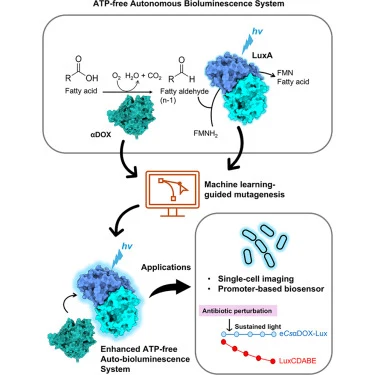
细菌Lux生物发光系统要实现持续发光,必须依赖LuxEC复合体以ATP和NADPH为代价合成脂肪醛底物,宿主代谢状态一波动,信号就跟着抖。这项研究用α-双加氧酶(αDOX)替换LuxEC——该酶直接把脂肪酸转成脂肪醛,不消耗ATP。研究者从三种αDOX同源物中筛出CsαDOX,再借机器学习引导的定向进化把发光强度提升约7.9倍,并实现单细胞级成像;在多种抗生素处理下,该系统的发光衰减幅度小于天然LuxCDABE系统。
研究背景
生物发光报告系统长期用于活细胞监测。萤火虫荧光素酶(FLuc)和NanoLuc(NLuc)信噪比高、无光漂白与光毒性、动态范围宽,但必须外源添加荧光素——连续采集受限、成本上升,组织内底物渗透与分布不均也是老问题。为摆脱外源底物,研究者把荧光素酶与荧光素合成基因一起整合进宿主,构建了细菌和真菌来源的自主发光系统。问题在于:这两类系统的荧光素合成都需要ATP(图1A)。营养匮乏或代谢抑制剂引起的细胞代谢波动,会直接压低发光强度,而且这种下降可以独立于发光基因表达的变化而发生。因此,寻找一条不依赖ATP的底物供给路线,成为自主发光系统走向稳定、长效监测的关键一步。
研究方法
关键资源表(试剂与资源)
菌株与病毒:大肠杆菌XL10-Gold(Agilent Technologies,Cat#200314);大肠杆菌JM109(DE3)(Promega,Cat#P9801)。
关键商业试剂盒与试剂:KOD FX Neo DNA聚合酶(Toyobo Life Sciences,Cat#KOD-201);FastGene凝胶/PCR提取试剂盒(NIPPON Genetics,Cat#FG-91302);BigDye Terminator v1.1循环测序试剂盒(ThermoFisher Scientific,Cat#4337450);T5核酸外切酶(New England Biolabs,Cat#M0663S);DpnI(Takara,Cat#1235A);肉豆蔻酸(Wako,Cat#544-63-8);羧苄青霉素(MP Biomedicals,Cat#195092);卡那霉素(Wako,Cat#25389-94-0);美罗培南(Sumitomo Pharma,Cat#876139);利福平(Wako,Cat#13292-46-1)。
数据沉积:质粒序列见Table S1,存放于 https://doi.org/10.5281/zenodo.23169225。
寡核苷酸:引物为ThermoFisher定制DNA寡核苷酸;合成cDNA(CsαDOX、CalαDOX、OsαDOX)为ThermoFisher GeneArt Strings DNA片段。
重组DNA:pRSETB-LuxAB(Kusuma等);pRSETB-LuxCDABE(Kusuma等);pRSETB-OsαDOX+LuxAB(本研究);pRSETB-CalαDOX+LuxAB(本研究);pRSETB-CsαDOX+LuxAB(本研究);pRSETB-'TesA+CsαDOX+LuxAB(本研究);pRSETB-TesB+CsαDOX+LuxAB(本研究);pRSETB-LuxD+CsαDOX+LuxAB(本研究);pRSETB-LuxD-G4S-CsαDOX+LuxAB(本研究);pRSETB-CsαDOX-G4S-LuxD+LuxAB(本研究);pRSETB-LuxAB-G4S-CsαDOX(本研究);pRSETB-LuxD+LuxAB-G4S-CsαDOX(本研究);pRSETB-LuxD+eCsαDOX+LuxAB(本研究);pRSETB-LuxD+eCsαDOX+LuxAB v.1(本研究);pRSETB-LuxD+eCsαDOX+eLuxAB(本研究);pRSETB-LuxD+eCsαDOX+eYNLX(本研究);pRSETB-YNLX(Kusuma等)。
软件与算法:BLAST(Altschul等,https://blast.ncbi.nlm.nih.gov/Blast.cgi);UCSF chimera(Pettersen等,https://www.cgl.ucsf.edu/chimera/);Origin8(OriginLab,https://www.originlab.com/);ImageJ(FIJI)(Schneider等,https://imagej.net/Fiji/);EvoProtGrad(Emami等,https://nrel.github.io/EvoProtGrad/);EVOLVEpro(Jiang等,https://github.com/mat10d/EvolvePro/)。
实验模型与研究对象信息:菌株及培养条件
大肠杆菌菌株在LB肉汤中培养,添加羧苄青霉素(100 μg/mL),37°C、200 rpm(LTI-700E,EYELA)。本研究使用的大肠杆菌菌株详细信息见关键资源表。
【数据】菌株:大肠杆菌XL10-Gold、JM109(DE3);培养基:LB肉汤;抗生素:羧苄青霉素100 μg/mL;温度:37°C;转速:200 rpm;仪器:LTI-700E(EYELA)
方法细节:通用方法
DNA寡核苷酸购自ThermoFisher Scientific。PCR扩增使用KOD-FX-Neo(Toyobo Life Science)。PCR产物经琼脂糖凝胶电泳纯化,使用FastGene Gel/PCR提取试剂盒(NIPPON Genetics)。用DpnI处理以降解反向PCR载体中的亲本载体。小规模质粒DNA从1.5 mL LB液体细菌培养物中经碱裂解与乙醇沉淀获得。cDNA构建体的DNA测序使用BigDye Terminator v1.1循环测序试剂盒(Life Technologies)完成。
【数据】质粒制备:1.5 mL LB培养物;方法:碱裂解+乙醇沉淀;测序试剂盒:BigDye Terminator v1.1;PCR酶:KOD-FX-Neo;载体降解:DpnI处理
方法细节:αDOX-Lux的构建
以pRSETB载体中的luxAB操纵子为起始材料,在大肠杆菌中构建不依赖ATP的Lux系统。OsαDOX、CalαDOX和CsαDOX的大肠杆菌密码子优化序列由ThermoFisher Scientific合成。所有αDOX基因的cDNA经PCR扩增,用T5核酸外切酶介导的低温DNA克隆法(TLTC)亚克隆进LuxAB操纵子,得到αDOX-LuxAB/pRSETB。硫酯酶克隆方面,'TesA与TesB从大肠杆菌K-12基因组扩增,LuxD从LuxCDABE/pRSETB载体扩增;PCR产物用TLTC组装亚克隆进CsαDOX-LuxAB/pRSETB,得到硫酯酶-CsαDOX-LuxAB/pRSETB。融合策略方面,用GGGGS连接肽将LuxD融合到CsαDOX的N端或C端,并用同一连接肽将CsαDOX融合到LuxB的C端,生成LuxB-GGGGS-CsαDOX,经TLTC法组装。诱变获得的CsαDOX与LuxA优化变体亚克隆进LuxD-CsαDOX-LuxAB操纵子。Venus通过EL连接肽与eLuxA融合,采用TLTC组装。
【数据】载体:pRSETB;克隆方法:TLTC(T5核酸外切酶介导低温DNA克隆);连接肽:GGGGS(LuxD-CsαDOX)、EL(eLuxA-Venus);融合体:LuxB-GGGGS-CsαDOX;基因来源:'TesA/TesB来自大肠杆菌K-12基因组,LuxD来自LuxCDABE/pRSETB
方法细节:机器学习引导的CsαDOX与LuxA定向进化
CsαDOX与LuxA的诱变由两种机器学习方法引导:EvoProtGrad与EVOLVEpro。EvoProtGrad源代码见https://nrel.github.io/EvoProtGrad/;EVOLVEpro源代码见https://github.com/mat10d/EvolvePro。两种模型均使用ESM2-3B基础层蛋白语言模型(PLM)进行进化。LuxA与CsαDOX的野生型序列最初作为EvoProtGrad框架的输入,采用两个专家模型:一个蛋白语言模型(PLM)和一个在GFP相关适应度数据集上训练的CNN模型。马尔可夫链蒙特卡洛(MCMC)参数设为100次迭代,每个变体最多12个突变。预测的候选变体经EVOLVEpro进入下一轮优化。所得候选通过定点诱变(SDM)引入突变,并进行发光活性实验评估。每轮筛选的变体随后作为下一轮EVOLVEpro活性优化的输入,至第4轮每周期产生最多12个新突变。多突变体构建时,人工选取每轮至少表现最好的前三个变体,组合有益突变,生成增强型LuxA与CsαDOX变体。使用重叠引物进行定点诱变(SDM),以LuxD-CsαDOX-LuxAB/pRSETB和LuxCDABE/pRSETB为模板获得突变变体。SDM热循环条件:18个循环的变性(94°C,15 s)、退火(55°C,30 s)、延伸(68°C,5 min)。PCR产物经DpnI处理,转化进大肠杆菌JM109(DE3)。
【数据】模型:ESM2-3B蛋白语言模型;MCMC迭代:100次;每变体突变上限:12个;循环数:4轮;SDM热循环:18循环,变性94°C 15 s,退火55°C 30 s,延伸68°C 5 min;宿主:大肠杆菌JM109(DE3)
方法细节:荧光素酶测定
修饰质粒转化进大肠杆菌JM109(DE3),在T7启动子下组成型表达。培养物过夜生长,铺于96孔白色板(Greiner Bio-One,150 μL/孔),用多模式板读仪(Spectra Max iD5,Molecular Devices)曝光3 s测定发光强度。发光值(含诱变)以OD600归一化,得到最终发光强度。eCsαDOX-eLux操纵子与LuxCDABE的抗生素处理实验中,过夜培养物调整至OD600 = 0.5,用同一板读仪曝光3 s测定发光。抗生素终浓度:美罗培南(30 μg/mL)、卡那霉素(50 μg/mL)、利福平(25 μg/mL)、羧苄青霉素(100 μg/mL)。IPTG添加至终浓度1 mM。肉豆蔻酸(Wako)添加至终浓度20–1000 μM。
【数据】板型:96孔白色板,150 μL/孔;曝光:3 s;归一化:OD600;抗生素终浓度:美罗培南30 μg/mL、卡那霉素50 μg/mL、利福平25 μg/mL、羧苄青霉素100 μg/mL;IPTG:1 mM;肉豆蔻酸:20–1000 μM;菌液OD600:0.5(抗生素实验)
方法细节:生物发光成像
取重组大肠杆菌菌落加入10 μL H2O。用琼脂垫法将0.3 μL各重组大肠杆菌引入35 mm玻璃底培养皿。发光成像用基于IXploreTM Live for Luminescence(EVIDENT)系统的倒置显微镜,配备EM-CCD相机(Andor iXon Ultra 888),曝光数分钟,EM增益1000×,×60物镜,2×2 binning设置。所有成像条件在37°C载物台培养箱STX(TOKAI HIT)中进行。所有发光图像用ImageJ软件分析。从原始图像中减去背景信号,用ImageJ自适应中值滤波去除宇宙射线伪影,不改变原始亮度或细胞形态。显微图像应用伪彩渲染,"Red Hot"查找表用于表示总发光强度。
【数据】样品体积:10 μL H2O重悬,0.3 μL点样;培养皿:35 mm玻璃底;相机:EM-CCD Andor iXon Ultra 888;EM增益:1000×;物镜:×60;binning:2×2;温度:37°C;曝光:数分钟;分析软件:ImageJ(FIJI)
方法细节:定量与统计分析
数据拟合与统计分析使用Origin8软件(OriginLab)或Microsoft Excel。统计值包括……(原文节选至此结束,后续内容未详述)。
【数据】软件:Origin8(OriginLab)、Microsoft Excel;统计方法:原文未详述
研究结果
不依赖ATP的自主生物发光系统设计
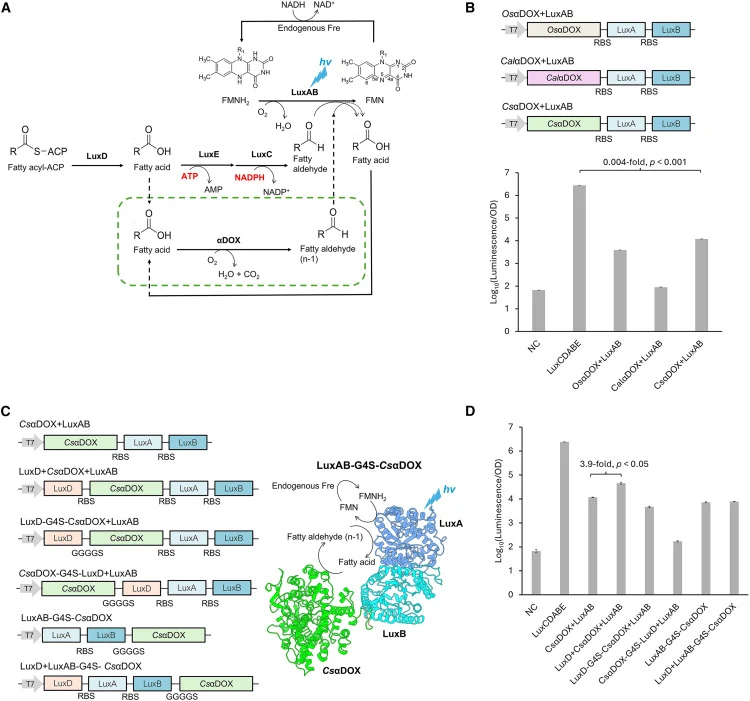
起点选细菌荧光素酶系统作为自主生物发光平台,理由是其溶解性和热稳定性优于真菌生物发光系统。天然生化通路中(图1A),荧光素合成由三酶级联介导:LuxD(硫酯酶)、LuxE(酰基-蛋白合成酶)和LuxC(酰基-CoA还原酶)。LuxE与LuxC形成脂肪酸还原酶复合体,以ATP和NADPH依赖的方式催化长链脂肪醛生成。为建立一条不以ATP为辅因子的替代性长链脂肪醛合成通路,研究者考察了α-双加氧酶(αDOX)。选取三个表征充分的αDOX同源物:源自水稻(Oryza sativa)的OsαDOX、源自Crocosphaera subtropica的CsαDOX、源自Calothrix parietina的CalαDOX。这些αDOX基因被引入luxAB表达系统,三种含αDOX的系统均在大肠杆菌JM109(DE3)中产生可检测的自主生物发光,与未转化阴性对照清晰区分(图1B)。所测酶中,CsαDOX相对其他αDOX同源物产生最高发光强度。该结果与先前报道一致:CsαDOX偏好利用中链脂肪酸底物(C10–C16),与细菌荧光素酶活性更兼容。相比之下,OsαDOX偏好更长链脂肪酸(>C16),CalαDOX表现相对较差,可能与其固有结构特性相关的蛋白聚集有关。尽管存在这些差异,所有基于αDOX的系统发光强度仍低于野生型LuxCDABE操纵子,说明要达到与ATP依赖通路相当的亮度还需进一步优化。
【数据】菌株:大肠杆菌JM109(DE3);αDOX同源物:OsαDOX、CsαDOX、CalαDOX;CsαDOX底物偏好:中链脂肪酸C10–C16;OsαDOX底物偏好:>C16;发光强度排序:CsαDOX最高,均低于野生型LuxCDABE;数值:原文未详述具体发光值
Lux系统的自主发光强度受细胞内脂肪酸可用性影响——脂肪酸是脂肪醛生产的前体。因此,增强脂肪酸供给(过表达脂肪酸生物合成酶如硫酯酶,或外源补充肉豆蔻酸)可调节LuxCDABE与CsαDOX-Lux操纵子的性能。为验证这一点,研究者检查了过表达硫酯酶(LuxD、'TesA和TesB)能否增强大肠杆菌脂肪酸生物合成(图1C与图S2A)。引入硫酯酶导致发光强度升高,其中LuxD比'TesA和TesB产生高达3.9倍的增强(图1D与图S2A)。这些结果表明,脂肪酸可用性是表达CsαDOX与LuxAB的大肠杆菌中脂肪醛生产的限速因素。与此解释一致,补充肉豆蔻酸导致发光强度呈浓度依赖性升高,最佳浓度为200 μM。该条件下,发光强度相对未补充肉豆蔻酸的大肠杆菌培养物提高至多19倍(图S2B)。此外,将LuxD纳入CsαDOX+LuxAB系统,使发光强度提高9.4倍,同时所需肉豆蔻酸浓度(50 μM)显著低于不含LuxD的CsαDOX+LuxAB系统(图S2C)。这些结果表明,仅LuxD就足以增强大肠杆菌脂肪酸可用性,从而支持更高发光输出,尽管要最大化性能可能还需通过额外代谢工程进一步优化。另外,与CsαDOX-Lux系统相比,表达LuxCDABE操纵子的大肠杆菌在补充低浓度肉豆蔻酸(20 μM)时发光强度提高至多4.3倍(图S2D)。这些条件下,体内脂肪酸向脂肪醛的转化在LuxEC依赖通路中似乎比CsαDOX-Lux系统更高效。
【数据】硫酯酶:LuxD、'TesA、TesB;LuxD增强倍数:3.9倍(相对'TesA/TesB);肉豆蔻酸最佳浓度:200 μM;补充肉豆蔻酸增强:19倍;加LuxD增强:9.4倍;加LuxD后肉豆蔻酸需求:50 μM;LuxCDABE+20 μM肉豆蔻酸增强:4.3倍
研究者进一步考察融合蛋白策略,旨在通过最小化酶间扩散距离加速脂肪醛通道化。该设计中,LuxD与LuxB分别融合到CsαDOX的N端与C端。然而该融合策略未导致发光强度升高(图1C与图1D)。鉴于CsαDOX分子量较大(70.5 kDa),蛋白折叠受损或酶活性降低可能造成了融合构建体性能有限。与此解释一致,LuxD-G4S-CsαDOX融合体的可检测发光仅在室温孵育48 h后出现,提示融合蛋白折叠或成熟延迟(图S3)。尽管有这些局限,LuxAB-G4S-CsαDOX融合架构为构建单复合体自主生物发光系统提供了概念性启示,可作为未来结构或蛋白工程优化的起点。
【数据】融合构建体:LuxD-G4S-CsαDOX、CsαDOX-G4S-LuxD、LuxAB-G4S-CsαDOX;CsαDOX分子量:70.5 kDa;融合体发光检出时间:室温48 h;发光增强:无(未升高)
机器学习引导的定向进化提升αDOX-Lux发光输出
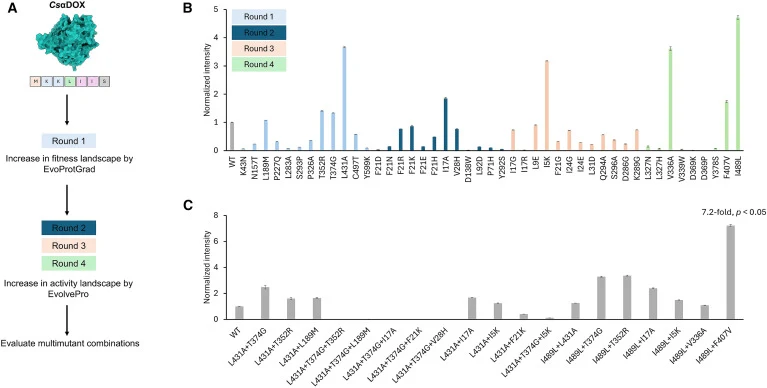
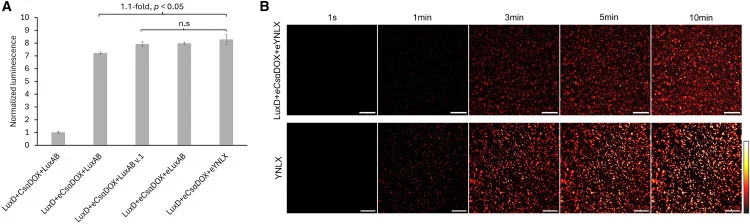
为进一步提高发光强度,研究者用机器学习引导策略对CsαDOX进行定向进化。具体而言,应用基于蛋白语言模型(PLM)的诱变,同时改善CsαDOX的适应度与催化活性景观。第一步采用基于PLM的零样本方法,用EvoProtGrad探索适应度景观。EvoProtGrad又称即插即用定向进化(PPDE),基于离散马尔可夫链蒙特卡洛(MCMC)框架整合无监督与有监督模型。后续轮次聚焦用EVOLVEpro增强活性景观,该方法此前已被证明可改善多种酶的催化性能,包括CRISPR核酸酶、先导编辑器和T7 RNA聚合酶。EvoProtGrad与EVOLVEpro均采用ESM-2作为突变设计的底层PLM。经过四轮迭代诱变,生成并评估了一组CsαDOX多突变变体(图2A)。CsαDOX-Lux操纵子(LuxD+CsαDOX+LuxAB)的亮度早在第一轮诱变即升高(图2B)。CsαDOX多突变变体筛选鉴定出CsαDOX-I489L/F407V突变体(下称增强型CsαDOX,eCsαDOX),其发光强度相对原始CsαDOX-Lux操纵子提高至多7.2倍(图2C)。平行地,在CsαDOX诱变之前,研究者用EvoProtGrad与EVOLVEpro对细菌荧光素酶催化亚基LuxA进行定向进化。LuxA诱变在天然LuxCDABE操纵子背景下进行。该筛选获得一个更亮的LuxA变体,携带C130E/N148G/F186N/A128F突变(LuxA v.1),亮度约为野生型LuxA的10倍。引入额外突变Q344A(eLuxA)后,亮度相对野生型LuxA进一步提高至约14倍(图S4)。随后将LuxA v.1与eLuxA纳入eCsαDOX-Lux操纵子,亮度相对原始CsαDOX-Lux操纵子提高至多7.9倍(图3A)。为进一步提高光子输出,研究者引入黄色荧光蛋白(Venus),通过生物发光共振能量转移(BRET)提高表观量子产率,此策略此前已在Nano-lanternX系统开发中得到验证。将Venus融合到eLuxA得到eCsαDOX-eYNLX操纵子;然而该修饰未导致亮度进一步提高……(原文节选至此结束,后续内容未详述)。
【数据】进化轮次:4轮;突变体:CsαDOX-I489L/F407V(eCsαDOX);eCsαDOX增强:7.2倍;LuxA v.1突变:C130E/N148G/F186N/A128F;LuxA v.1亮度:约10倍;eLuxA额外突变:Q344A;eLuxA亮度:约14倍;eCsαDOX-Lux(含LuxA v.1/eLuxA)增强:7.9倍;融合:Venus-eLuxA(eYNLX);eYNLX亮度变化:未进一步提高(原文节选至此)
表达LuxCDABE与eCsαDOX-eLux操纵子的大肠杆菌抗生素响应
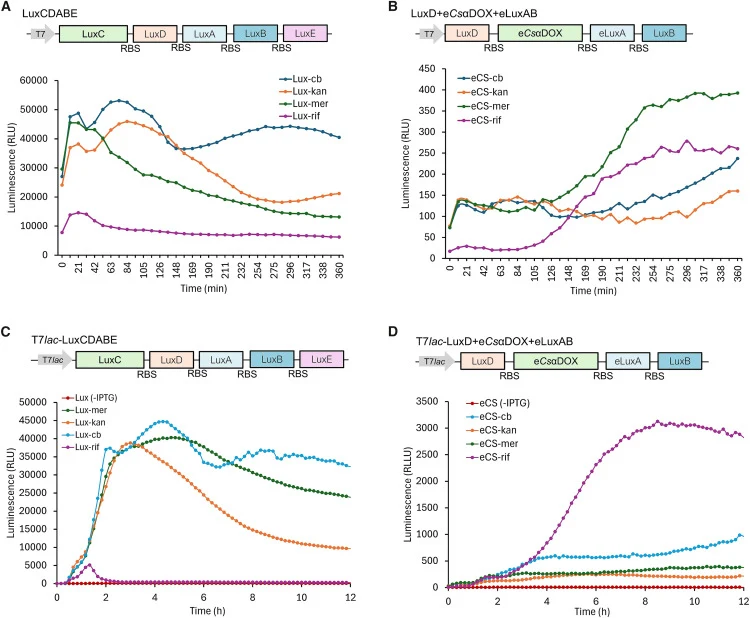
(原文结果节选未包含该小节文字,图4对应内容未详述。)
【数据】菌株:大肠杆菌JM109(DE3);操纵子:LuxCDABE、eCsαDOX-eLux;抗生素:原文节选未详述;数值:原文未详述
【数据】图5:原文未提供图注与对应结果文字,数据原文未详述
讨论与解读
本研究建立了一条源自细菌生物发光系统的替代性自主发光通路,不依赖ATP运行。该通路中,α-双加氧酶(αDOX)催化脂肪酸转化为脂肪醛,无需ATP或NADPH,从而在功能上替代ATP依赖的LuxEC复合体,作为细菌荧光素酶的荧光素供给模块。αDOX广泛分布于植物界,也见于蓝细菌等非植物生物。植物中拟南芥αDOX(AtαDOX)与水稻αDOX(OsαDOX)已被充分表征,有可用的晶体结构,偏好较长链脂肪酸(>C16)。相比之下,来自蓝细菌的αDOX,包括Crocosphaera subtropica(CsαDOX)、Calothrix parietina(CalαDOX)和Leptolyngbya sp.(LepαDOX),据报道偏好利用中链脂肪酸。鉴于中链脂肪酸与Lux通路生产脂肪醛更兼容,选择这些酶是期望以不依赖ATP的方式增强发光。尽管CsαDOX-Lux操纵子的发光强度仍低于天然LuxCDABE操纵子,这一差异可归因于若干因素。其一,CsαDOX产生(n−1)脂肪醛,偏好碳链长度的差异可能降低底物兼容性……(原文讨论节选至此结束)。
编译者解读
把底物供给从ATP依赖的LuxEC换成αDOX,思路干净:绕开能量货币,发光就不再随宿主ATP池起舞。机器学习引导的定向进化在四轮内把CsαDOX亮度拉高7.2倍、组合LuxA变体达7.9倍,说明PLM零样本+活性优化的组合对缺乏结构数据的酶确实管用。但亮度仍不及天然LuxCDABE,且(n−1)醛的链长兼容性、70.5 kDa大蛋白的融合折叠都是硬约束。抗生素实验只显示相关性,未确立ATP因果机制——这是该工作最需要后续补强的一环。
参考来源
期刊:iScience(2026)
DOI:10.1016/j.isci.2026.118029
DOI: 10.1016/j.isci.2026.118029