来源:Functional expression and substrate interaction mechanism of blueberry flavanone 3-hydroxylase in dihydrokaempferol biosynthesis(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
二氢山奈酚(DHK)是黄酮类化合物合成的关键前体,但植物提取与化学合成路线效率低下。本研究将蓝莓来源的黄烷酮3-羟化酶VcF3H在大肠杆菌BL21(DE3)中异源表达,经HPLC验证其可催化柚皮素转化为DHK。通过单因素优化全细胞转化条件,DHK产量达36.35 mg/L、底物转化率68.66%,较初始条件提高1.72倍。光谱分析、分子对接与动力学模拟进一步揭示了VcF3H与柚皮素的非共价结合特征,锁定Arg218、Gln278、Asp332为候选关键残基。
研究背景
DHK广泛存在于蓝莓、柑橘类果实和松树皮等植物中,具有典型黄酮骨架及多个羟基、酮基官能团。这些结构赋予其抗氧化、抗炎、抗肿瘤和心血管保护等多种生物活性,使其在营养补充、疾病预防和治疗开发中颇具潜力。DHK同时是黄酮生物合成通路中的重要中间体——由柚皮素经特定酶催化生成,又可被多种酶进一步修饰,衍生出包括花青素在内的结构多样黄酮类化合物。其分子中的羟基与酮基提供了多个酶促修饰反应位点。
市场对DHK的需求持续增长,但当前主要依靠从植物材料直接提取。植物中天然丰度普遍偏低,提取效率又受原料来源、季节、品种和提取工艺等因素制约。化学合成则面临路线复杂、副产物多和可持续性等问题。微生物异源合成因此成为有吸引力的替代路线,而其中关键酶的功能表征与催化条件优化是绕不开的环节。蓝莓来源的F3H此前研究有限,其能否在大肠杆菌中功能性表达、催化效率如何、底物如何与酶结合,均缺乏系统数据。
研究方法
2.1 化学试剂与菌株
大肠杆菌BL21(DE3)购自辽宁晶研生物科技有限公司(中国沈阳)。LB肉汤和LB琼脂培养基购自青岛海博生物技术有限公司(中国青岛)。柚皮素标准品、二氢山奈酚标准品和异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG)购自上海源叶生物科技有限公司(中国上海)。苯甲基磺酰氟(PMSF)溶液、细菌裂解液和溶菌酶购自北京索莱宝科技有限公司(中国北京)。NaCl、氨苄青霉素、α-酮戊二酸和FeSO4·7H2O购自上海麦克林生化科技有限公司(中国上海)。镍柱纯化缓冲液试剂盒和His标签蛋白纯化柱购自常州天地人和生物科技有限公司(中国常州)。
【数据】菌株:E. coli BL21(DE3);试剂:柚皮素标准品、DHK标准品、IPTG、PMSF、溶菌酶、α-酮戊二酸、FeSO4·7H2O、氨苄青霉素;培养基:LB肉汤、LB琼脂;原文未详述各试剂具体货号与批次
2.2 序列分析与重组表达系统构建
从NCBI数据库检索蓝莓(Vaccinium corymbosum)黄烷酮3-羟化酶(VcF3H;GenBank登录号MH321462.1)的核苷酸序列。检索所得核苷酸序列长度为1138 bp,其编码区编码一个366个氨基酸的蛋白。选取此前报道的柑橘(CF3H,GQ121373.1)、玉米(ZmF3H,U04434.1)和欧芹(PcF3H,AY230248.1)F3H序列作为参考序列(Deboo et al., 1995; Ma et al., 2023)。使用NCBI和ESPript 3.0进行多序列比对,分析VcF3H的保守结构域及其与其他植物来源F3H的序列同源性。
以pET32a质粒作为原核表达载体。按照天然序列合成蓝莓VcF3H的完整编码区,未进行密码子优化,并将其插入pET32a载体的BamHI和HindIII限制性位点之间,构建重组表达质粒pET32a-VcF3H。基因合成与载体构建由苏州君跻基因科技有限公司(中国苏州)完成。随后,将重组质粒转化至感受态大肠杆菌BL21(DE3)细胞。在含氨苄青霉素的LB琼脂培养基上筛选阳性重组菌株,并以甘油菌形式保存。携带空pET32a载体的大肠杆菌BL21(DE3)用作对照。
【数据】基因:VcF3H,GenBank MH321462.1,1138 bp,编码366 aa;参考序列:CF3H GQ121373.1、ZmF3H U04434.1、PcF3H AY230248.1;载体:pET32a;限制性位点:BamHI、HindIII;宿主:E. coli BL21(DE3);抗性:氨苄青霉素;密码子优化:未进行
2.3 重组VcF3H的表达验证
为验证VcF3H在重组菌株中的表达,将重组菌株和空载体对照菌株分别以1:50的比例接种至含氨苄青霉素的LB肉汤中,于37 °C、220 rpm培养至OD600约为0.6。随后加入IPTG至终浓度0.2 mM,于30 °C、180 rpm诱导蛋白表达7 h。
用于SDS-PAGE分析时,分别制备重组蛋白表达验证和蛋白分布分析样品。表达验证时,各取空载体对照培养物和重组培养物1 mL作为全细胞样品。蛋白分布分析时,另取1 mL重组培养物离心,分离培养上清与细胞沉淀。培养上清直接收集,相应细胞沉淀用1 mL PBS重悬并破碎,获得细胞裂解液。各样品与4×蛋白上样缓冲液按样品与缓冲液3:1的比例混合,100 °C加热5 min后立即置于冰上冷却。制备好的样品用于SDS-PAGE分析,检测重组VcF3H表达并评估其在培养上清与细胞相关组分之间的分布。SDS-PAGE在160 V下运行约40 min,当蛋白条带迁移至距凝胶底部约2 cm处时停止电泳。随后将凝胶转移至大培养皿中,用固定液固定30 min,再用考马斯亮蓝染色液染色40 min。之后用脱色液脱色,每轮20 min,重复4–5次。最后过夜脱色直至蛋白条带清晰可见。
【数据】接种比例:1:50;培养温度:37 °C;转速:220 rpm;诱导OD600:约0.6;IPTG终浓度:0.2 mM;诱导温度:30 °C;诱导转速:180 rpm;诱导时间:7 h;上样缓冲液:4×,样品:缓冲液=3:1;加热:100 °C,5 min;SDS-PAGE电压:160 V,约40 min;固定:30 min;染色:40 min;脱色:20 min/轮,4–5轮,之后过夜
2.4 柚皮素全细胞转化为二氢山奈酚
以重组菌株作为全细胞催化体系,评估VcF3H催化柚皮素转化为DHK的能力。初始转化实验中,诱导重组蛋白表达后,向培养物中加入柚皮素、α-酮戊二酸和FeSO4,终浓度分别为50 mg/L、8 mM和0.1 mM。培养物继续孵育24 h进行全细胞转化,用于验证VcF3H催化柚皮素生成二氢山奈酚的功能。携带空pET32a载体的大肠杆菌BL21(DE3)用作对照。
为进一步提高DHK生产效率,采用单因素实验优化全细胞转化条件。考察初始细胞密度(OD600 = 0.4、0.6、0.8、1.0和1.2)、IPTG终浓度(0、0.2、0.4、0.6、0.8和1.0 mM)、诱导温度(20、25、30、35和40 °C)、诱导时间(0、1、3、5、7和9 h)、α-酮戊二酸浓度(0、2、4、6、8和10 mM)、二价金属离子类型(FeSO4、MgSO4、CaCl2、ZnSO4和CuSO4)、二价金属离子浓度(0、0.1、0.2、0.4、0.6和2 mM)以及转化时间(4、8、12、16、20和24 h)对DHK产量的影响。
除另有说明外,基线条件为:初始细胞密度OD600 = 0.6、0.2 mM IPTG、诱导温度30 °C、诱导时间7 h、柚皮素50 mg/L、α-酮戊二酸8 mM、FeSO4 0.1 mM、转化时间24 h。每个单因素实验中仅改变所考察的参数,其余参数均维持上述基线值。考察二价金属离子类型时,离子浓度固定为0.1 mM。为进一步评估Fe2+可利用性对全细胞转化的影响,向反应体系中加入EDTA至终浓度1 mM以螯合可用的二价金属离子,随后补充FeSO4至终浓度0、0.1、0.2、0.4、0.6和2 mM。以未经EDTA处理的相应组作为对照,其他转化条件保持不变。所有处理均设三个重复。以DHK产量和底物转化率作为评价指标。
单因素实验完成后,将各参数选定的水平组合进行单独的验证性转化实验。组合条件为:初始细胞密度OD600 = 0.8–1.0、0.4 mM IPTG、30 °C诱导7 h、柚皮素50 mg/L、α-酮戊二酸8 mM、不额外补充外源Fe2+、转化时间20 h。验证实验设三个重复,DHK产量和底物转化以平均值±标准差表示。
DHK和柚皮素采用岛津LC-30AD超高效液相色谱系统(岛津公司,日本东京)定量。分离在Waters C18柱(5 μm,4.6 mm × 250 mm)上进行,于290 nm检测吸光度。流动相由水(流动相B)和乙腈(流动相C)组成。流速设定为0.5 mL/min,柱温维持30 °C,进样量10 μL。梯度洗脱程序如下:0至30 min,C相10–25%;30至50 min,C相25–50%;50至80 min,C相50–85%;80至90 min,C相85–10%;90至110 min,C相10%。
【数据】初始转化:柚皮素50 mg/L、α-酮戊二酸8 mM、FeSO4 0.1 mM、转化24 h;单因素范围:OD600 0.4–1.2、IPTG 0–1.0 mM、诱导温度20–40 °C、诱导时间0–9 h、α-酮戊二酸0–10 mM、金属离子0–2 mM、转化时间4–24 h;基线条件:OD600 0.6、IPTG 0.2 mM、30 °C、7 h、柚皮素50 mg/L、α-酮戊二酸8 mM、FeSO4 0.1 mM、24 h;EDTA:1 mM;验证条件:OD600 0.8–1.0、IPTG 0.4 mM、30 °C 7 h、柚皮素50 mg/L、α-酮戊二酸8 mM、无外源Fe2+、20 h;重复数:3;HPLC:C18柱5 μm、4.6 mm×250 mm,290 nm,流速0.5 mL/min,柱温30 °C,进样10 μL,梯度0–110 min
2.5 重组VcF3H的纯化
为进行蛋白纯化,将诱导后的重组……(原文节选至此中断,后续纯化步骤、光谱分析、分子对接与动力学模拟方法原文未详述)
【数据】原文未详述(节选内容在此处中断)
研究结果
3.1 VcF3H的序列特征与重组表达验证
从NCBI数据库检索获得蓝莓黄烷酮3-羟化酶(VcF3H;GenBank登录号MH321462.1)的基因序列。检索所得VcF3H核苷酸序列长度为1138 bp,其编码区编码一个由366个氨基酸组成的蛋白,预测分子量约为40.5 kDa。多序列比对显示,VcF3H与柑橘、玉米、欧芹等植物来源的F3H高度相似,序列相似性达75.82%(图1a)。保守结构域分析进一步表明,VcF3H含有PLN02515结构域,对应2-酮戊二酸依赖性双加氧酶超家族的典型2OG-Fe(II)加氧酶结构域(图1b)。该结构特征与植物F3H的催化特性一致——后者在羟化反应中通常需要2-酮戊二酸和Fe2+作为辅因子(Han et al., 2017; Tu et al., 2016)。这些结果为后续VcF3H的功能验证提供了结构基础。
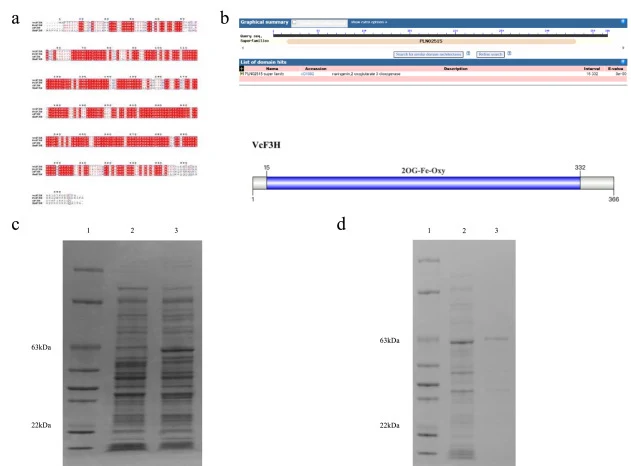
构建重组表达载体pET32a-VcF3H并转化至大肠杆菌BL21(DE3)进行异源表达。pET32a载体含有Trx、S和His标签,便于重组蛋白的表达、检测与纯化(Liu et al., 2024)。SDS-PAGE分析进一步支持了VcF3H的表达。由于VcF3H以融合蛋白形式表达,载体来源的标签序列约22 kDa,因此重组融合蛋白的预期分子量约为63 kDa,而VcF3H单独约为40.5 kDa(Liu et al., 2022)。与空载体对照菌株相比,重组菌株在目标融合蛋白预期分子量附近出现明显蛋白条带(图1c)。此外,将重组培养上清与相应细胞沉淀制备的细胞裂解液进行比较,发现特征条带主要出现在细胞相关组分中(图1d),表明重组VcF3H主要保留在细菌细胞内。综上,这些结果证实蓝莓来源VcF3H在大肠杆菌BL21(DE3)中成功异源表达。
【数据】基因长度:1138 bp;蛋白:366 aa;预测分子量:约40.5 kDa;序列相似性:75.82%;保守结构域:PLN02515(2OG-Fe(II)加氧酶);标签:Trx、S、His,约22 kDa;融合蛋白预期分子量:约63 kDa;SDS-PAGE:160 V,约40 min
3.2 VcF3H催化柚皮素转化为二氢山奈酚的功能验证
在确认重组VcF3H在大肠杆菌BL21(DE3)中成功表达后,以重组菌株进行全细胞转化,评估其催化柚皮素转化为DHK的能力。HPLC分析显示,柚皮素标准品在约50 min处呈现特征色谱峰,而DHK标准品在约40 min处呈现特征峰。以pET32a-VcF3H/BL21(DE3)重组菌株作为全细胞催化体系,pET32a/BL21(DE3)空载体菌株作为对照。向培养体系中加入柚皮素作为转化底物。转化后,培养液经HPLC分析(图2)。与空载体对照相比,重组培养物不仅显示柚皮素特征峰,还在约40 min处出现新的产物峰,与DHK标准品的保留时间一致。此外,柚皮素与产物峰在建立的色谱条件下分离良好。基于其与DHK标准品保留时间的一致性和在空载体对照中的缺失,新生成的产物被初步鉴定为DHK。这些结果支持重组全细胞体系具有VcF3H依赖性催化活性、能够将柚皮素转化为DHK的结论。不过,进一步的正交结构表征(如LC-MS/MS)将为产物身份提供更确凿的确认。然而,全细胞体系的催化性能不仅受酶功能影响,还受重组蛋白表达、细胞生理状态、底物与辅因子可利用性以及转化条件的影响。因此,在确认VcF3H催化功能后,进一步优化主要表达与转化参数以提高DHK生产效率。
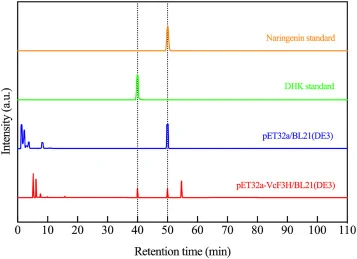
【数据】柚皮素标准品保留时间:约50 min;DHK标准品保留时间:约40 min;产物峰保留时间:约40 min;检测波长:290 nm;流速:0.5 mL/min;柱温:30 °C;进样量:10 μL
3.3 全细胞转化条件的单因素优化
为提高VcF3H介导柚皮素转化为DHK的效率,采用单因素实验优化重组菌株的全细胞转化条件。结果表明,细胞密度、IPTG浓度、诱导温度与时间、α-酮戊二酸浓度、二价金属离子类型与浓度以及转化时间均显著影响全细胞转化中的DHK产量。
转化过程中,DHK产量随诱导前初始细胞密度的增加先升高后降低。初始细胞密度达到OD600 0.8时,DHK滴度最高,为28.27 mg/L,对应转化率约56%(图3a)。初始细胞密度较低时,可用于目标蛋白表达的细胞数量不足,限制了催化体系中VcF3H的总量。此外,过早诱导可能抑制细胞生长,从而对后续蛋白表达产生不利影响。但初始细胞密度过高时,营养竞争加剧、代谢副产物过度积累和溶氧不足会损害正常细胞代谢与重组蛋白表达。同时,过高细胞密度可能使细胞处于生理应激状态,干扰蛋白正确折叠,最终降低酶活性。类似地,Wang等(2023)报道大肠杆菌高密度发酵导致发酵体系中乙酸积累,对表达蛋白的活性产生负面影响。
IPTG是重组基因表达常用的诱导剂,可特异性结合抑制基因表达的阻遏蛋白,从而解除转录抑制、启动下游目标基因表达。但IPTG对宿主细胞具有细胞毒性,可能损害细菌生长甚至导致细胞死亡。此外,IPTG浓度过高可能使重组蛋白表达速度超出细胞正确折叠能力,导致蛋白错误折叠并形成无活性包涵体,最终降低转化效率。本研究中IPTG浓度优化显示,0.4 mM IPTG时DHK产量最高,为32.24 mg/L,对应转化率64.48%(图3b)。
诱导温度和诱导时间是调控重组大肠杆菌底物转化效率的关键变量。诱导温度通过影响细胞活性和目标蛋白活性两方面影响DHK产量。温度较低时细胞代谢减慢,可能限制重组蛋白表达。温度过高则抑制细菌生长甚至导致细胞失活。此外,高温可能加速肽链合成,增加蛋白错误折叠和包涵体形成风险,从而降低酶活性(Thomas & Baneyx, 1996)。DHK产量随诱导温度升高先增后降,30 °C时最高,为25.17 mg/L,转化率50.34%(图3c)。诱导时间指从加入IPTG到……(原文节选至此中断,后续诱导时间、α-酮戊二酸、金属离子、转化时间等单因素结果及组合验证结果原文未详述)
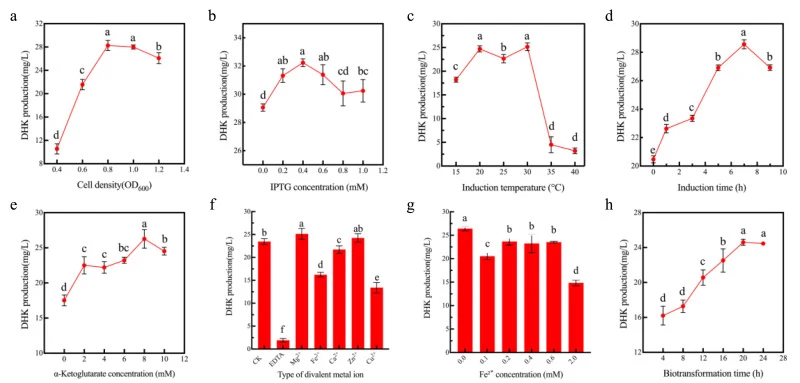
【数据】细胞密度:OD600 0.8时DHK 28.27 mg/L、转化率约56%;IPTG:0.4 mM时DHK 32.24 mg/L、转化率64.48%;诱导温度:30 °C时DHK 25.17 mg/L、转化率50.34%;其余单因素结果原文未详述(节选中断)
3.4 光谱表征、分子对接与动力学模拟(原文节选未含此节正文)
原文节选未提供3.4节及后续结果段正文,相关内容(图4、图5、图6对应结果)原文未详述。
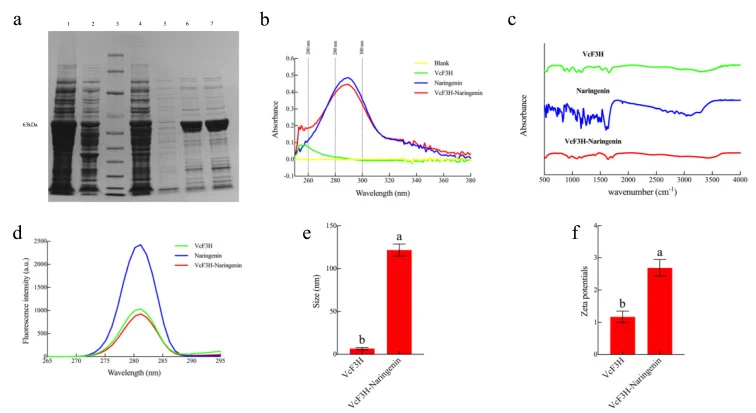
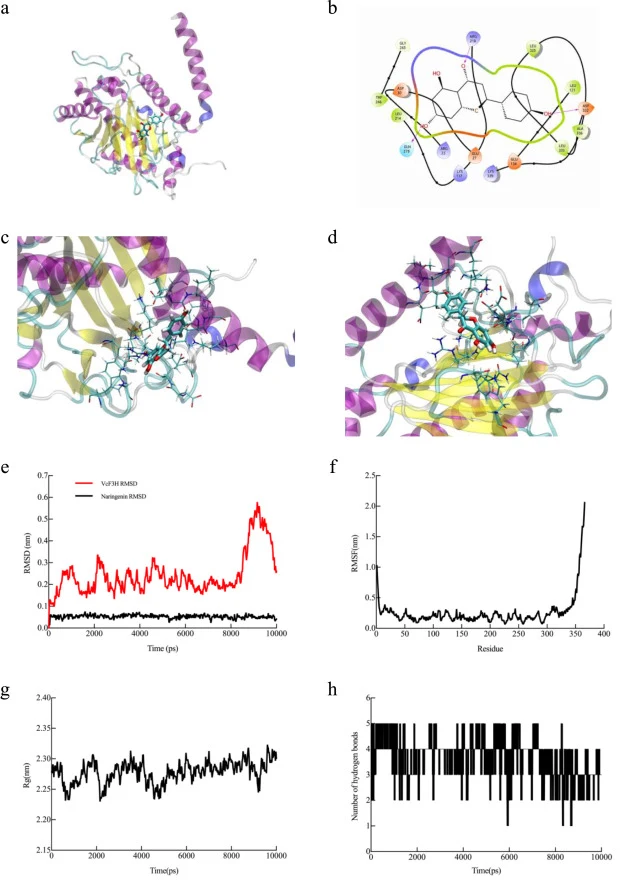
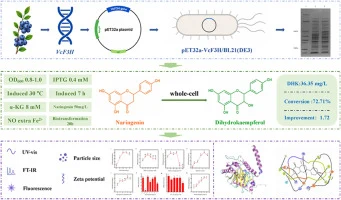
【数据】原文未详述(节选未含对应结果正文)
讨论与解读
本研究在大肠杆菌BL21(DE3)中构建了蓝莓来源黄烷酮3-羟化酶VcF3H的异源表达系统,HPLC分析结合DHK标准品支持其催化柚皮素向二氢山奈酚转化的能力。VcF3H具有2-酮戊二酸依赖性双加氧酶的保守结构特征,支持其作为F3H的功能归属。经全细胞转化条件单因素筛选,DHK产量达36.35 mg/L、转化率68.66%,较初始条件提高1.72倍。筛选确定的条件组合兼顾了诱导条件、底物加载、α-酮戊二酸补充和转化时间,且无需额外补充外源Fe2+。多光谱、粒径与zeta电位分析共同支持VcF3H与柚皮素之间存在相互作用,并提示氢键和π相关作用等非共价力的参与。分子对接与分子动力学模拟进一步表明柚皮素可稳定结合于VcF3H结合口袋内,氢键、疏水作用和π–π堆积共同贡献复合物稳定性。在相互作用残基中,Arg218、Gln278和Asp332被鉴定为候选关键残基。
编译者解读:该工作把酶学表征与过程优化串成一条线——先确认VcF3H在大肠杆菌里"能用",再用单因素法把产量拉高1.72倍,最后用光谱与模拟回答"怎么结合"。对合成生物学而言,36.35 mg/L的滴度仍属实验室量级,离工业发酵有距离;单因素法也无法捕捉参数间交互作用。但Arg218、Gln278、Asp332的锁定为后续半理性设计提供了可操作的靶点,这是本研究对酶工程最有价值的输出。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110321
DOI: 10.1016/j.fbio.2026.110321