来源:The transcription factor CiMYC2 positively regulates terpenoid biosynthesis by activating the expression of CiHMGR and CiTPS4 in Chrysanthemum indicum var. aromaticum(Plant Science)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
神农香菊是分布于湖北神农架高海拔地区的珍稀芳香菊科变种,其挥发物中萜类占比超过80%。本研究将转录因子CiMYC2导入普通菊(Chrysanthemum indicum),发现过表达可使叶片腺毛密度最高提升3.94倍、叶表渗出物总萜类相对含量最高提升21.88%,并证实CiMYC2直接结合CiHMGR与CiTPS4启动子中的E-box元件激活转录,同时与CiJAZ4/5/7/8蛋白互作整合茉莉酸信号。该工作为芳香菊花分子育种提供了靶点与机制依据。
研究背景
芳香植物的香气成分大致分为三类:萜类(异戊二烯、单萜、倍半萜为主)、苯丙烷类/苯环类以及脂肪酸衍生物。其中萜类是多数芳香植物气味的主要来源,在生态上承担吸引传粉者、辅助种子传播、抵御病原菌与食草动物等功能;部分萜类还具有抗炎、降血糖、抗癌等药理活性。除生物学功能外,萜类在香精、农化与生物燃料工业中应用广泛,因此解析其生物合成途径与调控机制兼具科学价值与社会经济意义。
神农香菊(Ci. var. aromaticum)自然分布于中国湖北神农架海拔2000米以上高山区域,全株具独特浓郁香气,是罕见的芳香型菊科变种。已有研究发现萜类占其总挥发物的80%以上,使其成为研究菊科萜类代谢的适宜材料。解析这一变种香气形成的分子基础,有望推动香型菊花的定向育种。
研究方法
2.1 植物材料与处理
普通菊(C. indicum)植株保存于东北林业大学园林学院(中国黑龙江省哈尔滨市150040)。普通菊与本氏烟草(N. benthamiana)均在16小时光照光周期、光强300 μE/(m²·s)、相对湿度65%–70%条件下栽培。普通菊生长温度维持18–25°C,本氏烟草为20–23°C。
【数据】光周期:16h光照;光强:300 μE/(m²·s);相对湿度:65%–70%;普通菊温度:18–25°C;本氏烟草温度:20–23°C
2.2 转录因子CiMYC2对普通菊的转化
通过农杆菌介导转化法在普通菊中过表达CiMYC2转录因子。pBI121-CiMYC2载体按此前描述的方法构建(Gao et al., 2023b),经电转化导入根癌农杆菌EHA105菌株。转化后的细菌培养后以甘油保存备用。植物转化时,从甘油菌种中活化携带载体的EHA105,培养至OD600为0.1–0.2。取组织培养普通菊幼苗的叶盘(直径1 cm),于Murashige and Skoog(MS)诱导培养基上28°C黑暗预培养2天,随后浸入细菌悬液8分钟,吸干后于相同培养基、相同条件下共培养2天。外植体随后转入分化培养基(MS添加1.0 mg/L 6-苄氨基嘌呤(6-BA)、0.8 mg/L萘乙酸(NAA)、5 mg/L卡那霉素(Kana)与200 mg/L头孢拉定(Cef))进行筛选,直至抗性芽出现。切取芽并在含5 mg/L Kana的培养基上生根。野生型(WT)对照植株按相同流程再生,但不经EHA105侵染并使用无抗生素培养基。
【数据】叶盘直径:1 cm;预培养:28°C、2天、黑暗;侵染:8 min;共培养:2天;6-BA:1.0 mg/L;NAA:0.8 mg/L;Kana:5 mg/L;Cef:200 mg/L;菌液OD600:0.1–0.2
2.3 转化普通菊中CiMYC2的分子筛选
用商业试剂盒(Omega Bio-Tek., Inc., Norcross, GA, USA)从WT与转基因普通菊幼苗中提取基因组DNA与总RNA。总RNA用ReverTra Ace® qPCR RT Master Mix(Toyobo Co., Ltd., 日本)逆转录为cDNA。转基因幼苗先用引物pBI121-F/CiMYC2-R通过PCR初步验证。定量分析时,cDNA稀释10倍作为qRT-PCR模板。基因特异性引物(q-CiMYC2-F与q-CiMYC2-R)用Primer Premier 5.0(PREMIER Biosoft International, San Francisco, CA, USA)设计。qRT-PCR在LightCycler®96 PCR系统(F. Hoffmann-La Roche Ltd., Basel, 瑞士)上使用2 × NovoStart® SYBR qPCR SuperMix Plus(Novoprotein Scientific Inc., 上海, 中国)进行,循环条件为:95°C 10 min;35个循环的95°C 10 s、60°C 30 s、72°C 32 s;随后进行熔解曲线分析(95°C 15 s、60°C 60 s、95°C 15 s、60°C 15 s)。以CmEF1α(登录号KF305681)为内参。CiMYC2相对表达量用2-ΔΔCT法计算,WT表达量归一化为1。本研究使用的全部引物序列见补充数据表S1。
【数据】cDNA稀释倍数:10倍;预变性:95°C、10 min;循环数:35;变性:95°C、10s;退火:60°C、30s;延伸:72°C、32s;内参基因:CmEF1α(KF305681);分析方法:2-ΔΔCT
2.4 CiMYC2转化普通菊的腺毛密度分析
选取生长条件一致、健康良好的8周龄WT与转基因普通菊扦插苗各5株进行腺毛密度分析。简言之,在每株第5片完全展开叶上,于叶尖、叶中、叶基三处,分别在近轴面与远轴面随机取一个视野(2 mm × 1.5 mm,3 mm²)(Gao et al., 2020)。用Leica DM2500荧光显微镜(Leica Mikrosysteme Vertrieb GmbH, Wetzlar, 德国)观察并拍摄腺毛密度,供后续定量。
【数据】苗龄:8周;每株取样叶位:第5片完全展开叶;每株数:5株;视野尺寸:2 mm × 1.5 mm(3 mm²);取样部位:叶尖/叶中/叶基×近轴面/远轴面
2.5 普通菊叶表渗出物的化学 profiling
采集8周龄WT与转基因普通菊叶片,液氮速冻后研磨成细粉。每份样品称取1 g粉末置入20 mL顶空瓶,加入40 μL 2-辛醇(500 mg/L)作为内标。密封后使用自动顶空固相微萃取(HS-SPME)系统于80°C萃取40分钟(Gao et al., 2026)。随后用气相色谱-质谱联用(GC-MS)(Agilent 7890A-5975C, Santa Clara, CA, USA)分析。色谱分离在HP-5MS毛细管柱(30 m × 0.25 mm × 0.25 μm)上进行,升温程序为:50°C保持30 min,以15 °C/min升至160°C,再以10 °C/min升至270°C,最后保持15 min。进样口不分流模式,解吸时间5 min。MS检测采用电子电离(70 eV),离子源230°C,四极杆150°C,传输线280°C。质量扫描范围m/z 40–500。化合物通过与NIST08库比对质谱、并与Pherobase数据库比对保留指数进行鉴定。相对丰度用峰面积归一化法、以TurboMass 5.4.2软件计算(Gao et al., 2026)。
【数据】样品量:1 g;内标:40 μL 2-辛醇(500 mg/L);萃取温度:80°C;萃取时间:40 min;起始柱温:50°C、30 min;升温1:15 °C/min至160°C;升温2:10 °C/min至270°C;终温保持:15 min;电离能:70 eV;离子源:230°C;四极杆:150°C;传输线:280°C;扫描范围:m/z 40–500
2.6 基于转录组筛选参与萜类生物合成的CiMYC2靶基因
于发育阶段一致的WT与转基因普通菊植株采集叶片样品,每种基因型设三个独立生物学重复(WT、OE-1、OE-2、OE-3)。总RNA用RNA提取试剂盒(Ambion; Thermo Fisher Scientific Inc., Waltham, MA, USA)提取。RNA纯度与浓度用NanoDrop 2000分光光度计(Thermo Fisher Scientific Inc., Waltham, MA, USA)评估,完整性用Agilent 2100 Bioanalyzer(Agilent Technologies, Santa Clara, CA, USA)评价。RNA完整性数值(RIN)≥ 7的样品(Pawar et al., 2024)用TruSeq Stranded mRNA LT Sample Prep Kit(Illumina Inc., San Diego, CA, USA)构建测序文库,随后在Illumina NovaSeq 6000平台测序。差异表达基因(DEGs)用DESeq2软件包鉴定,该法考虑了重复间的生物学变异。从所得转录组数据中鉴定DEGs,并从中挑选与萜类生物合成功能相关的基因及转录因子做进一步验证。其表达水平随后用qRT-PCR确认,以支持对CiMYC2在萜类生物合成途径中所调控潜在下游靶基因的鉴定。本研究使用的全部引物序列见补充数据表S1。
【数据】生物学重复:每基因型3个;RIN阈值:≥7;测序平台:Illumina NovaSeq 6000;差异分析软件:DESeq2;验证方法:qRT-PCR
2.7 酵母单杂交(Y1H)实验
从神农香菊基因组数据库(未发表)中检索CiHMGR与CiTPS4上游2000 bp启动子序列。基于这些启动子区域中的增强子盒(E-box)基序(CACATG),合成核心基序两侧各延伸15–25 bp的DNA片段。这些片段以三串联重复形式组装并克隆入pHIS2报告载体。CiMYC2的开放阅读框(ORF)插入pGADT7载体。Y1H实验中,将pHIS2-proCiHMGR E-box或pHIS2-proCiTPS4 E-box报告质粒与pGADT7-CiMYC2共转化酵母菌株Y187作为实验组。空pGADT7载体与报告质粒组合为阴性对照,pGADT7-Rec2-p53与pHIS2-p53共转化为阳性对照。转化酵母细胞在添加3-氨基-1,2,4-三唑(3-AT)的SD/-Trp-Leu-His平板上筛选,29°C培养3天。本研究使用的全部引物序列见补充数据表S1。
【数据】启动子长度:2000 bp;核心基序:CACATG;片段延伸:15–25 bp;串联重复数:3;菌株:Y187;3-AT浓度:见结果部分(80 mM);培养温度:29°C;培养时间:3天
2.8 双荧光素酶(Dual-LUC)实验
将CiHMGR与CiTPS4上游2000 bp启动子序列克隆入pGreenII 0800-LUC报告载体,同时将CiMYC2的编码序列……(原文节选至此结束)
【数据】启动子长度:2000 bp;报告载体:pGreenII 0800-LUC;原文节选未详述后续步骤
研究结果
3.1 转基因普通菊的鉴定与转录分析
成功获得5个独立的CiMYC2过表达普通菊株系(OE-1至OE-5),分子分析确认所有抗性株系均发生转基因基因组整合,而WT植株未检测到信号(补充数据图S1)。如图1A所示,qRT-PCR分析显示所有转基因株系中CiMYC2转录水平较WT显著升高(p < 0.01)。具体而言,OE-1表达水平最高,达WT的6.70倍;OE-5增幅最低(1.91倍);OE-2、OE-3、OE-4的相对表达量分别为WT的3.25、6.02与2.69倍,证实建立了CiMYC2过表达程度不同的系列转基因株系。
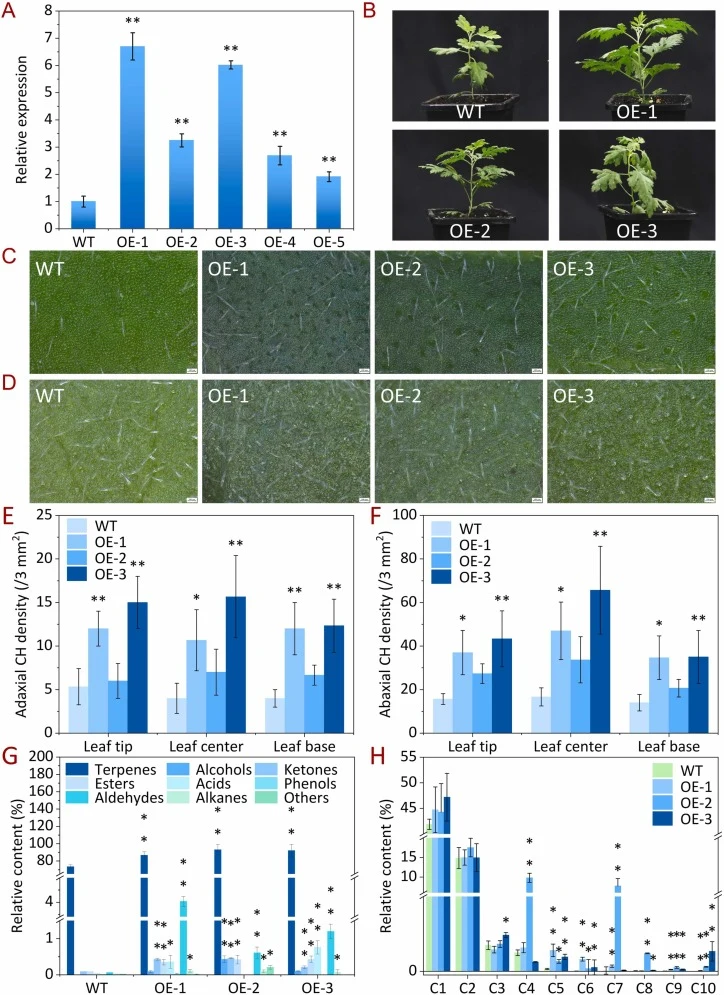
【数据】株系数:5个(OE-1至OE-5);OE-1:6.70倍;OE-2:3.25倍;OE-3:6.02倍;OE-4:2.69倍;OE-5:1.91倍;显著性:p < 0.01
3.2 CiMYC2过表达提高普通菊腺毛密度与萜类积累
选取CiMYC2表达水平最高的三个转基因株系(OE-1、OE-2、OE-3)(图1B)用于后续分析。对叶片两面腺毛密度进行定量。所有株系中,远轴面腺毛密度均高于近轴面,且以叶片中上部区域密度最高(图1C与1D)。与WT相比,所有转基因株系叶片两面腺毛密度均显著增加。增幅最明显的是OE-3株系(p < 0.01),其远轴面腺毛密度从叶尖至叶基分别为WT的2.76、3.94与2.50倍(图1E与1F)。鉴于腺毛的分泌功能,这些结果提示CiMYC2过表达可能增强普通菊叶片的分泌能力,表明CiMYC2在叶片挥发物产生中具有调控作用。气相色谱-质谱(GC-MS)分析显示,普通菊叶片挥发物主要由萜类、醇类、酮类、酸类、烷烃类与酯类组成(补充数据表S2)。与WT相比,所有转基因株系中萜类相对含量显著升高。具体而言,OE-1、OE-2与OE-3分别增加17.84%、26.57%与25.20%(图1G)。萜类中,germacrene D在三个转基因株系中均呈小幅增加,而caryophyllene仅在OE-2中大幅升高。Humulene在OE-2与OE-3中略升,但在OE-1中小幅下降。变化最剧烈的是isogermacrene D与cis-β-copaene,在OE-3中分别由WT的1.24%与0.05%升至9.82%与7.74%。其他化合物包括γ-muurolene、caryophyllene oxide、camphene、phytol与eucalyptol在各转基因株系中也有不同程度积累(图1H)。此外,若干在WT叶片中未检出的萜类,如eucalyptol、(E)-γ-bisabolene、nerolidol、1-hexadecanol、T-muurolol、caryophylladienol II与cedrane-8,13-diol,在转基因株系中被检出。这些结果表明CiMYC2过表达增强了普通菊叶片萜类生物合成并改变了萜类谱(Guan et al., 2024)。
【数据】远轴面腺毛密度(OE-3,叶尖/叶中/叶基):WT的2.76/3.94/2.50倍;萜类相对含量增幅:OE-1 17.84%、OE-2 26.57%、OE-3 25.20%;isogermacrene D:WT 1.24%→OE-3 9.82%;cis-β-copaene:WT 0.05%→OE-3 7.74%;显著性:p < 0.01
3.3 基于转录组筛选萜类生物合成中的CiMYC2靶基因
为阐明CiMYC2在萜类生物合成途径中的调控作用,对CiMYC2过表达与WT普通菊植株进行转录组测序,每基因型三个生物学重复,共获得83,444个unigene。差异表达分析相对WT鉴定出:OE-1中2677个上调、2635个下调基因;OE-2中4068个上调、3247个下调基因;OE-3中4964个上调、6174个下调基因。三个比较共有的DEGs为2367个(图2A与2B)。对这些DEGs的基因本体(GO)与代谢途径富集分析显示,显著富集于单萜生物合成以及倍半萜与三萜生物合成相关条目(图2C)。在筛选到的萜类途径相关基因中,HMGR(3-羟基-3-甲基戊二酰辅酶A还原酶)、DXS(1-脱氧-D-木酮糖5-磷酸合酶)与一个萜类合酶基因在CiMYC2-OE株系中明显上调(图2D),因此被视为受CiMYC2调控的候选基因。依据序列相似性,该萜类合酶基因命名为CiTPS4(与黄花蒿TPS4同源性最高(Khan et al., 2024)),另两个分别命名为CiHMGR与CiDXS。为进一步阐明CiMYC2在萜类生物合成中的调控作用,我们检测了转基因株系中关键途径基因的表达。qRT-PCR分析显示,与WT相比,所有CiMYC2-OE植株中CiHMGR与CiDXS均显著上调(p < 0.01)。具体而言,CiHMGR在OE-1中表达增加14.55倍(图2E),CiDXS在OE-3中增加16.77倍(图2F)。萜类合酶基因CiTPS4亦被强烈诱导,在OE-3中增加22.58倍(图2G)。这些结果表明CiMYC2激活包括CiHMGR、CiDXS与CiTPS4在内的关键生物合成基因以增强萜类产生。
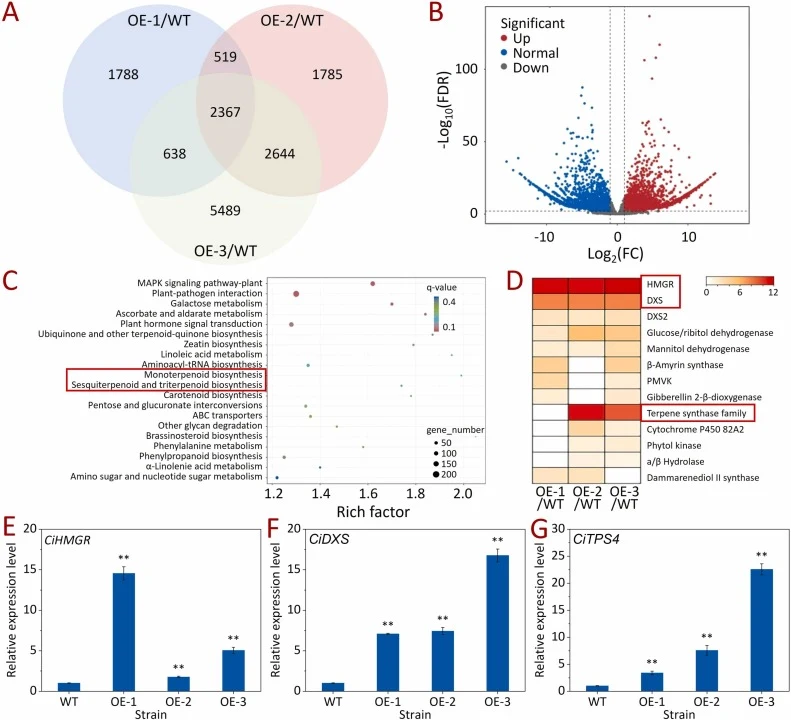
【数据】unigene数:83,444;DEGs:OE-1上调2677/下调2635,OE-2上调4068/下调3247,OE-3上调4964/下调6174;共有DEGs:2367;CiHMGR:OE-1增加14.55倍;CiDXS:OE-3增加16.77倍;CiTPS4:OE-3增加22.58倍;显著性:p < 0.01
3.4 CiMYC2通过结合启动子直接激活CiHMGR/CiTPS4转录
E-box基序(5′-CANNTG-3′)是已知的MYC2转录因子结合位点(Ding et al., 2022)。为确定CiMYC2是否直接调控萜类生物合成途径关键基因,我们分析了在转基因植株中上调的三个候选萜类相关基因(CiHMGR、CiDXS与CiTPS4)(第3.5节)启动子的顺式调控元件(补充数据图S2)。启动子活性实验显示CiDXS启动子无可检测活性;因此选择启动子含推定E-box序列的CiHMGR与CiTPS4(图3A)进行后续与CiMYC2的互作研究。为检测CiMYC2与E-box基序的直接结合,构建了CiHMGR与CiTPS4启动子E-box序列的三串联重复用于Y1H实验。共转化AD-CiMYC2与E-box构建体的酵母细胞在含80 mM 3-AT的SD/-His/-Leu/-Trp培养基上正常生长,与阳性对照相似。相反,共转化空pADT7载体与E-box序列的对照酵母生长受抑制(图3C)。CiMYC2与CiHMGR/CiTPS4启动子的互作进一步用双荧光素酶报告系统在植物体内验证。与WT相比,CiMYC2与proCiHMGR-LUC或proCiTPS4-LUC报告基因共表达时观察到显著更强的LUC荧光(图3E与3F)。定量分析显示,CiMYC2存在时proCiHMGR驱动的相对LUC活性增加约1.97倍(图3G与3H)。这些结果表明CiMYC2直接结合CiHMGR与CiTPS4启动子中的E-box元件并激活其转录,支持其在直接调控萜类生物合成中的作用。
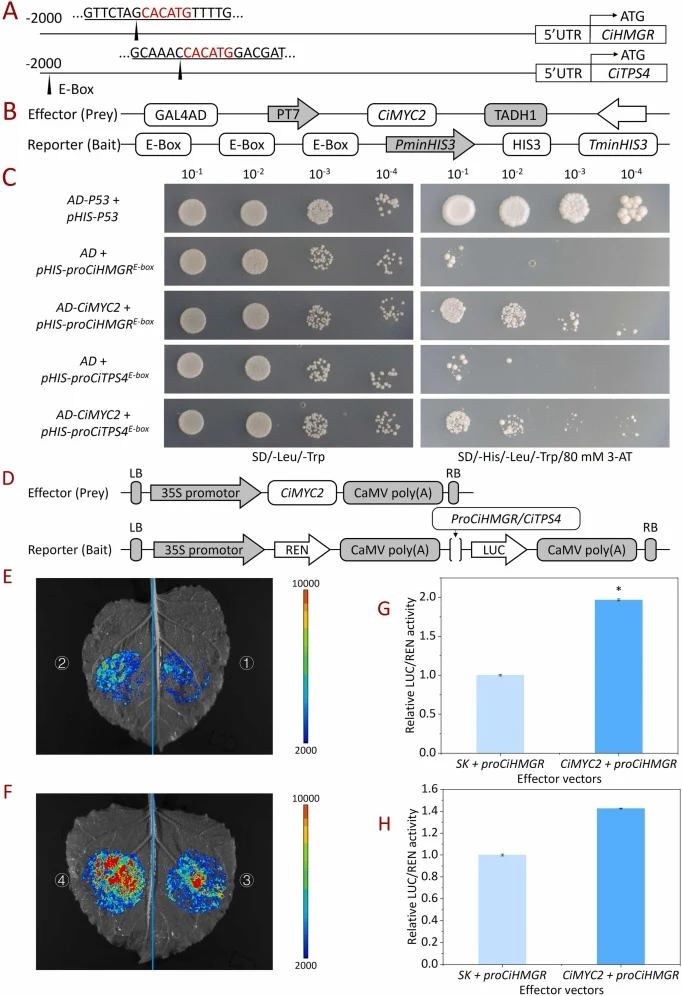
【数据】E-box基序:5′-CANNTG-3′;3-AT浓度:80 mM;LUC活性增幅:proCiHMGR约1.97倍;培养基:SD/-His/-Leu/-Trp
3.5 CiMYC2与CiJAZ蛋白互作
JAZ蛋白作为茉莉酸(JA)信号途径的关键负调控因子,通过与MYC2转录因子形成复合物,阻碍MYC2结合靶启动子并抑制下游基因表达(Sheard et al., 2010)。从MeJA处理的神农香菊转录组中,我们鉴定出7条JA响应性JAZ序列(补充数据图S3)。依据与黄花蒿JAZ蛋白的同源性,分别命名为CiJAZ1、CiJAZ2、CiJAZ4、CiJAZ5、CiJAZ7、CiJAZ8与CiJAZ9。酵母双杂交(Y2H)实验显示,共表达pGADT7-CiMYC2与p……(原文节选至此结束)
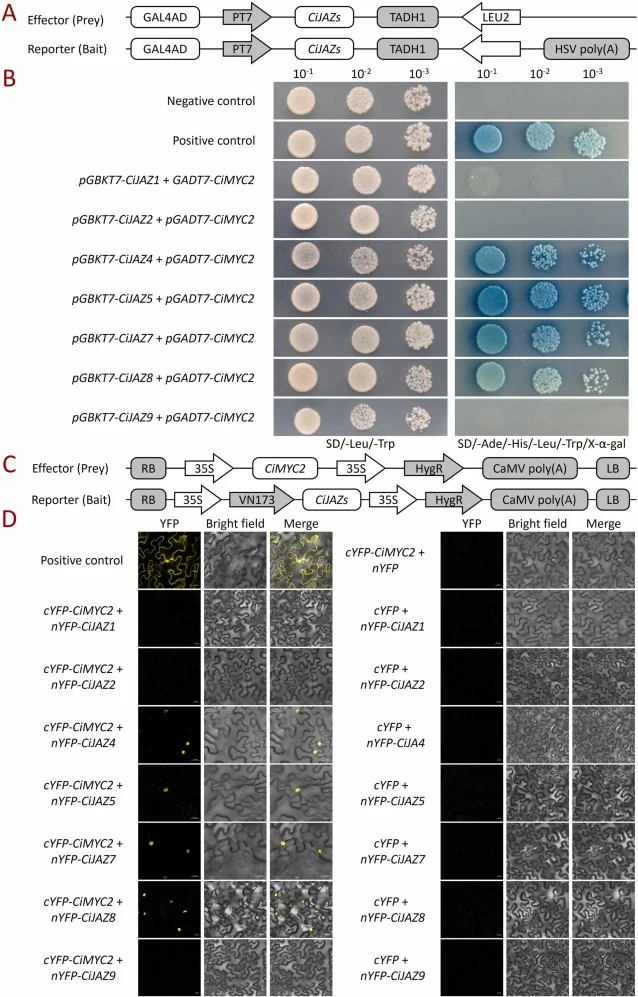
【数据】JAZ序列数:7条;命名:CiJAZ1/2/4/5/7/8/9;原文节选未详述Y2H具体结果数值
讨论与解读
JA信号途径是植物萜类生物合成的关键诱导因素,可提升黄花蒿、丹参、人参、甘西鼠尾草与铁皮石斛等物种的萜类含量。作为JA响应的核心转录因子,MYC2通过激活下游基因调控萜类产生,已在拟南芥、红豆杉与白木香中得到验证。与此一致,作者此前工作显示,对神农香菊叶面喷施0.25% MeJA可显著提高总萜类水平与MYC2表达,提示该物种中JA介导的萜类诱导很可能经由MYC2实现。本研究中,CiMYC2过表达普通菊株系较WT积累了更多倍半萜,但各独立转基因株系增幅不一:germacrene D在三个株系中均小幅升高,caryophyllene与humulene在OE-2与OE-3中升高更明显,isogermacrene D与cis-β-copaene在OE-3中变化最为剧烈。
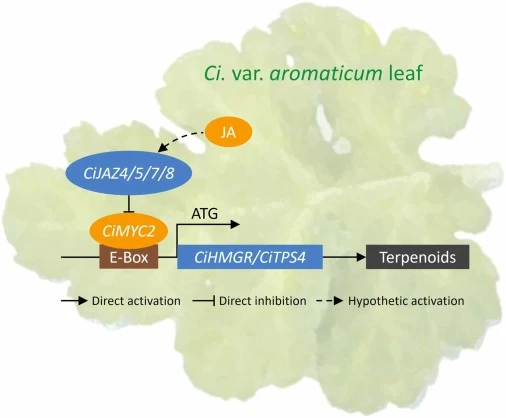
编译者解读:该研究把"转录因子过表达—腺毛密度—萜类产量"串成一条可验证的因果链,方法上以Y1H/双LUC锁定直接靶标、以Y2H/BIFC锚定JA信号互作,逻辑闭环较完整。对合成生物学而言,CiMYC2可作为菊科萜类代谢工程的上游调控节点;但过表达导致的株系间差异(如OE-1与OE-3表型不一致)提示单基因调控的下游效应受遗传背景与拷贝数影响,后续需启动子工程或模块化多基因组装以实现稳定增产。
参考来源
期刊:Plant Science, 2026
DOI: 10.1016/j.plantsci.2026.113463
DOI: 10.1016/j.plantsci.2026.113463