来源:Transcriptomic and proteomic profiling reveals carbon nanoparticles regulation of glucosinolate biosynthesis in radish microgreens (Raphanus sativus L.)(Scientia Horticulturae)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
碳纳米颗粒(CNPs)能提升萝卜芽苗菜中硫苷(GSLs)的含量,但背后的调控网络一直不清楚。本研究用转录组加蛋白质组的多组学手段,追踪了0–200 mg/L CNPs处理下萝卜芽苗菜的生长表型、元素含量、氨基酸谱、硫苷谱及基因/蛋白表达变化。结果锁定了一批以浓度特异方式响应的硫苷合成结构基因,并通过WGCNA找出与硫苷显著相关的MYB44、C2H2、MYC2、ERF105等转录因子,勾勒出CNPs调控硫苷合成的新网络。
研究背景
硫苷是一类富含硫的次生代谢物,在十字花科蔬菜(西兰花、萝卜、芥菜等)中广泛分布。其降解产物具有生物活性,在心血管疾病、抑郁、肥胖等慢性病防护方面显示出效果,在癌症预防与抑制方面尤为突出。硫苷的生物合成途径已较为清晰:以甲硫氨酸、色氨酸或苯丙氨酸为起点,经支链氨基转移酶脱氨生成相应氧代酸,再经过链延伸、核心结构形成和侧链修饰等保守步骤。其中,MAM介导的缩合、IPMI催化的异构化、IPMDH参与的氧化脱羧依次进行;BCAT4、MAMs、IPMs和IPMDHs是链延伸阶段的关键限速酶。核心结构的形成则由细胞色素P450酶等催化完成。
碳纳米材料已被报道可影响植物次生代谢物的合成,例如荧光碳点可诱导Tetrastigma Hemsley中次生代谢物、黄酮、卟啉与叶绿素代谢相关基因的表达,单壁碳纳米管(SWCNTs)能以浓度依赖方式促进酚酸和黄酮的积累,镁掺杂碳量子点可激活水稻次生代谢物合成。然而,CNPs如何调控萝卜芽苗菜硫苷合成,其分子机制尚缺乏系统解析。本研究即以此为切入点,采用多组学策略展开分析。
研究方法
2.1 植物材料
红色萝卜种子(每组30 g,购自山东潍坊寿和种业)进行水培。配制不同浓度的碳纳米颗粒分散液(0、25、50、100、200 mg/L)。六组种子(编号1–6)分别浸入100 mL碳纳米颗粒分散液中浸泡15 h。浸泡结束后,将种子转移至铺有一层湿润滤纸(用蒸馏水饱和)的发芽盘中。发芽盘用带孔保鲜膜覆盖,在27°C、相对湿度70%的光照条件下培养。种子保持湿润状态24 h直至发芽。培养结束后移除滤纸,使用自配的、不含硝酸盐和硫酸盐组分的改良Hoagland营养液开始水培。生长时长从发芽开始记录。第1天,向第2–6组的水培系统中加入不同浓度的碳纳米颗粒分散液(0、25、50、100、200 mg/L)以及5 mmol/L的K2SO4和KNO3溶液。第1组为空白组,仅加入改良Hoagland溶液;第2组加入盐但不加CNPs,作为对照组。萝卜芽苗菜在第8天收获,冻干、粉碎,4°C冷藏备用。每个处理浓度重复三次。
【数据】种子用量:30 g/组;CNPs浓度:0、25、50、100、200 mg/L;浸泡体积:100 mL;浸泡时间:15 h;培养温度:27°C;相对湿度:70%;发芽维持时间:24 h;K2SO4/KNO3浓度:5 mmol/L;收获时间:第8天;重复数:3次
2.2 萝卜芽苗菜表型性状分析
生长特性分析。生长第8天,从每组收获萝卜芽苗菜。每组随机选取20株进行表型测量。用游标卡尺测量株高,计算并记录平均值。
元素含量分析。硫和钾含量采用电感耦合等离子体发射光谱仪(ICP-OES,Agilent 5110)测定。取约0.1 g冻干粉碎样品,在微波消解系统中用3 mL浓HNO3消解。消解液转移至25 mL容量瓶,定容后分析。硫和钾含量分别用硫和钾标准溶液计算。总氮含量用凯氏定氮仪(SKD-2000)测定。
氨基酸含量分析。氨基酸谱用Biochrom 30+氨基酸分析仪分析。色氨酸含量用高效液相色谱(Shimadzu,LC-20A)测定。
谷胱甘肽(GSH)含量。GSH含量按GSH检测试剂盒说明书测定。
硫苷谱分析。硫苷组分与浓度参照Demir等(2023)的方法,用超高效液相色谱联用Triple TOF 7600高分辨质谱仪分析。
【数据】株高测量:20株/组;样品量:约0.1 g;消解酸:3 mL浓HNO3;定容体积:25 mL;仪器:ICP-OES Agilent 5110、凯氏定氮仪SKD-2000、Biochrom 30+氨基酸分析仪、HPLC Shimadzu LC-20A、Triple TOF 7600
2.3 组学测序分析
#### 2.3.1 样品制备
萝卜芽苗菜于生长第8天收获,立即液氮速冻,送至基迪奥生物公司测序。每个处理组设三个生物学重复。转录组测序(RNA-seq)在cDNA文库构建后进行。提取样品总RNA,检查其纯度与完整性。用mRNA捕获磁珠富集mRNA,再经高温处理片段化。以片段化mRNA为模板,用逆转录酶混合物合成第一链cDNA。在第二链cDNA合成过程中,完成末端修复、poly-A加尾和接头连接。目标片段用Hieff NGS® DNA Selection Beads纯化,PCR扩增后的文库在Illumina Novaseq X Plus平台上测序。
差异表达基因(DEG)分析如下:原始read counts用edgeR包归一化。通过假设检验计算P值,随后进行多重检验校正获得错误发现率(FDR)。显著差异表达基因定义为FDR < 0.05且|log2FC| > 1。DEG的功能注释使用Gene Ontology(GO)和Kyoto Encyclopedia of Genes and Genomes(KEGG)数据库。
蛋白质提取使用iST样品制备试剂盒(PreOmics,德国)进行烷基化、酶解和肽段脱盐。样品用Bruker timsTOF Pro2质谱仪分析,进行数据依赖采集文库构建和数据非依赖采集分析,实现蛋白质定性定量图谱。鉴定组间丰度显著变化的蛋白质。用Benjamini-Hochberg方法校正p值(FDR < 0.05)。|FC| > 1.5且P < 0.05的蛋白质定义为差异表达蛋白(DEP)。DEP通过GO和KEGG通路注释。
转录组-蛋白质组整合分析包括基因与蛋白表达相关性、GO/KEGG富集和通路映射。显著性关键标准设定为转录组|FC| > 2、蛋白质组|FC| > 1.5、P < 0.05。重点关注在转录和翻译两个水平同时差异表达的基因/蛋白,尤其是富集于GSL生物合成通路的那些。
【数据】收获时间:第8天;生物学重复:3次;DEG标准:FDR < 0.05、|log2FC| > 1;DEP标准:|FC| > 1.5、P < 0.05;整合分析标准:转录组|FC| > 2、蛋白质组|FC| > 1.5、P < 0.05;测序平台:Illumina Novaseq X Plus;质谱仪:Bruker timsTOF Pro2
2.4 实时定量PCR(qRT-PCR)分析
qRT-PCR用于验证RNA-seq结果的可靠性。用植物RNA试剂盒(Sangon Biotech,中国)从CNP处理的萝卜芽苗菜中提取总RNA。qRT-PCR参照Wu等(2025)报道的方法进行。基因转录本丰度通过qRT-PCR定量,引物用PrimerQuest软件(www.idtdna.com)设计。qRT-PCR设三个生物学重复;平均相对基因表达水平用2-ΔΔCT法计算。以ACTIN基因作为内参基因。qRT-PCR引物序列见表S1。
【数据】生物学重复:3次;定量方法:2-ΔΔCT;内参基因:ACTIN;引物设计软件:PrimerQuest
2.5 统计分析
统计分析使用IBM SPSS Statistics(版本23)进行。所有实验重复三次。组间差异用Student's t检验评估,显著性设定为P < 0.05。
【数据】软件:IBM SPSS Statistics 23;重复数:3次;显著性阈值:P < 0.05;检验方法:Student's t检验
研究结果
3.1 CNP处理萝卜芽苗菜的生长特性分析
研究了CNPs对萝卜(Raphanus sativus L.)幼苗生长阶段的影响。如图1a和1b所示,与对照组相比,25–100 mg/L CNPs处理对萝卜芽苗菜株高呈正向效应,分别增加10.6%、5.9%和4.7%,而200 mg/L CNPs未影响植株生长。与对照组相比,100 μg/mL CNP处理后植株干重中的氮(N)和钾(K)含量分别显著增加23.09%和9.6%(p < 0.05)。
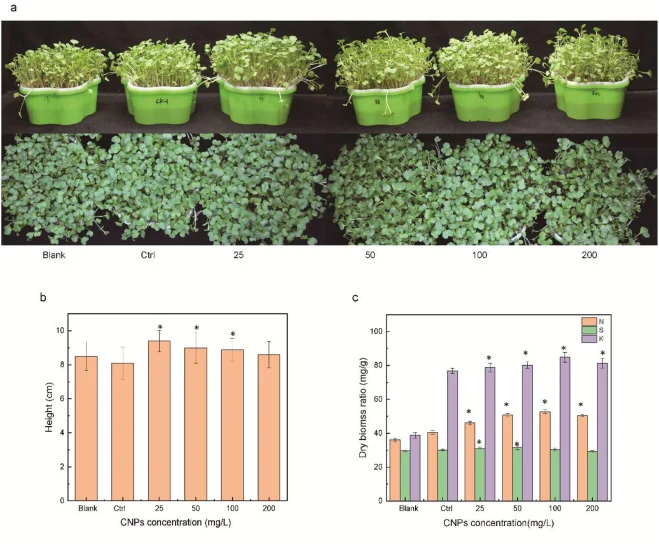
本研究在萝卜芽苗菜中共鉴定出18种不同的游离氨基酸(表1)。在主要游离氨基酸中,甲硫氨酸和色氨酸是GSL生物合成的前体物质。25–50 mg/L CNP处理后甲硫氨酸和色氨酸浓度下降,100–200 mg/L时则上升。在25–100 mg/L CNP浓度下,萝卜芽苗菜中谷氨酸浓度下降,并在25 mg/L时达到最低值,但当CNP浓度超过25 mg/L后显著上升(p < 0.001)。在25和50 mg/L CNP浓度下,甲硫氨酸和天冬氨酸浓度下降,与空白组和对照组均呈显著差异(p < 0.05),但更高浓度下未见显著变化。缬氨酸和丝氨酸浓度在CNP处理过程中逐渐下降。GSH含量随CNPs浓度升高而增加,100–200 CNPs处理组与其他组相比差异显著(p < 0.05,图S1)。
【数据】株高增幅:25 mg/L +10.6%、50 mg/L +5.9%、100 mg/L +4.7%;氮含量增幅:+23.09%(100 μg/mL,p < 0.05);钾含量增幅:+9.6%(100 μg/mL,p < 0.05);游离氨基酸种类:18种;谷氨酸最低值浓度:25 mg/L(p < 0.001);甲硫氨酸/天冬氨酸显著差异浓度:25、50 mg/L(p < 0.05);GSH显著差异组:100–200 mg/L(p < 0.05);200 mg/L对株高:无影响
3.2 萝卜芽苗菜硫苷谱与含量
不同浓度CNPs处理萝卜芽苗菜的GSL谱与含量见表2。共鉴定出5种主要GSLs,包括3种脂肪族和2种吲哚型,其中glucoraphenin(GRH)丰度最高,其次是4-甲基硫代-3-丁烯基硫苷(4-MGBS)。与对照组相比,200 mg/L CNP处理组总GSL含量增加19.59%。GRH是萝卜特有GSL,占总GSLs比例最大,其次为4-MGBS。在50 mg/L和200 mg/L CNP浓度下,GRH含量相对对照组分别增加16.32%和23.53%。glucoerucin(GRE)含量在100 μg/mL CNP处理下最高(1.32 μM/g)。同样,4-MGBS含量在100 μg/mL CNP处理下达到峰值,较对照组增加25.7%。
【数据】鉴定GSL种类:5种(3种脂肪族+2种吲哚型);总GSL增幅:+19.59%(200 mg/L);GRH增幅:+16.32%(50 mg/L)、+23.53%(200 mg/L);GRE最高含量:1.32 μM/g(100 μg/mL);4-MGBS增幅:+25.7%(100 μg/mL)
3.3 CNP处理萝卜芽苗菜的转录组分析
用RNA-seq研究了CNPs对萝卜芽苗菜转录组的影响。主成分分析(PCA)显示CNP处理组与对照组明显分离,PC1和PC2分别占总变异的89%和5.4%(图2a)。不同浓度CNPs处理组由PC1区分,表明转录水平发生显著变化。相关性热图分析显示组内重复性高,所有三个生物学重复的决定系数(r2)均超过0.8(图S2)。从18个不同浓度CNPs处理的萝卜芽苗菜样品中共获得61.17 GB clean data。DEG以P < 0.05和|log2FC| > 1.0为阈值鉴定。比较分析共鉴定出6022个显著DEGs。其中,Ctrl vs Blank、Ctrl vs 25、Ctrl vs 50、Ctrl vs 100和Ctrl vs 200比较分别有671、2788、1821、656和1522个上调DEGs,以及232、1531、783、337和373个下调DEGs,表明它们可能参与萝卜芽苗菜对CNP处理的生理响应(图2b)。
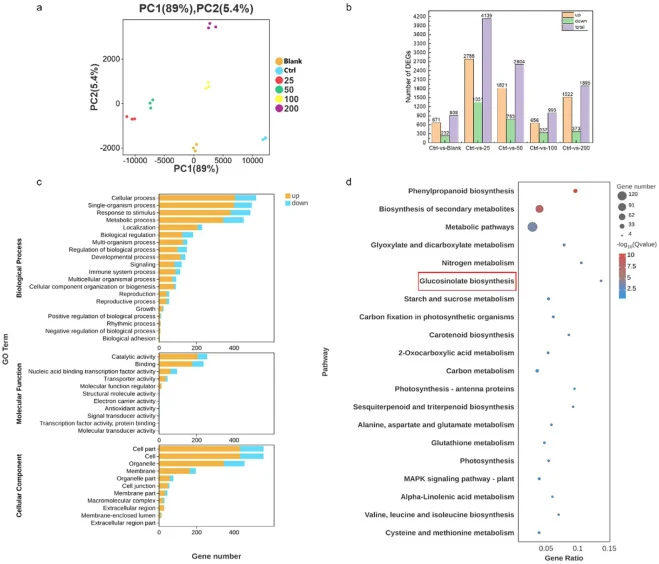
DEG的GO功能注释分析鉴定了参与CNPs响应的调控通路(图2c)。DEG的GO富集分析揭示CNPs影响多个细胞过程,包括生物学过程、分子功能和细胞组分。与生物学过程相关的DEGs主要涉及细胞过程、代谢过程、生物调控、定位和应激响应。与细胞组分相关的DEGs主要与细胞解剖实体和含蛋白复合物相关。与分子功能相关的DEGs主要是结合、催化活性、运输活性、ATP依赖性和结构分子活性。Ctrl vs 200的GO富集分析显示在生物学过程类别中显著过代表,尤其是细胞过程、代谢过程、生物调控、生长、催化活性。这一观察表明CNPs作为外部刺激可能引起萝卜芽苗菜的变化。次生代谢物、阳离子吸收和转运受到调控以抵抗外部刺激。
KEGG通路分析进一步揭示CNP处理影响的关键代谢通路(图2d)。显著富集的通路包括苯丙烷生物合成(ko00940)、次生代谢物生物合成(ko01110)、GSL生物合成(ko00966)、植物MAPK信号(ko04016)以及氮/硫代谢(ko00910/ko00920)。在GSL生物合成通路内,编码BCAT4(ncbi_108857098)、MAM1(ncbi_108828349)、CYP79F1(ncbi_108812420)、IPMDH1(ncbi_108822324)、SUR1(ncbi_108813271)和UGT74B1(ncbi_108814109)的关键DEG表现出明显的差异表达。
【数据】PC1/PC2方差贡献:89%/5.4%;r2:>0.8;clean data总量:61.17 GB;样品数:18;显著DEGs总数:6022;上调DEGs:671(Ctrl vs Blank)、2788(Ctrl vs 25)、1821(Ctrl vs 50)、656(Ctrl vs 100)、1522(Ctrl vs 200);下调DEGs:232、1531、783、337、373;DEG阈值:P < 0.05、|log2FC| > 1.0;富集通路:ko00940、ko01110、ko00966、ko04016、ko00910/ko00920
3.4 CNP处理萝卜芽苗菜的蛋白质组分析
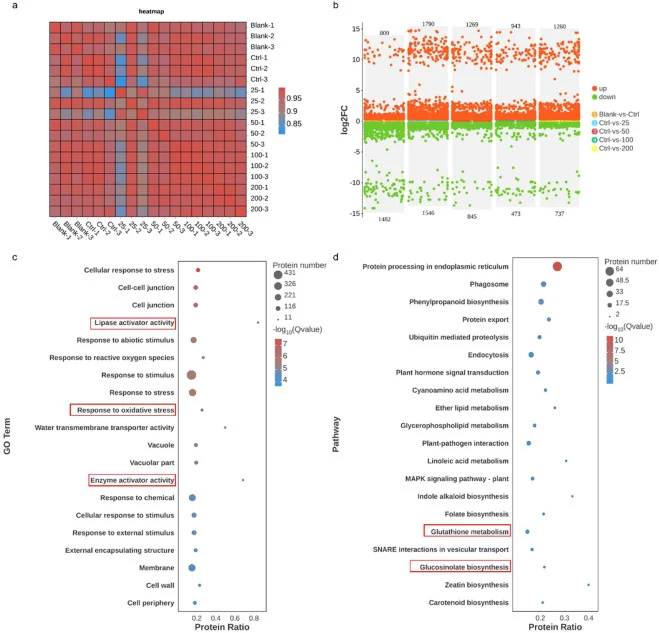
对照组与CNP处理组三个重复间呈显著相关,R2 > 0.8。相关性分析显示不同CNP浓度处理样品间存在强组间相关性(图3a)。散点图展示对照组与CNP处理组之间DEPs的分布(图3b)。DEPs被归类到多种GO条目,涉及应激响应、膜和酶激活剂活性(图3c)。KEGG通路富集分析显示DEPs参与内质网蛋白加工、GSL代谢、GSH代谢、氨基酸生物合成和氮代谢通路(图3d)。
【数据】重复间相关:R2 > 0.8;GO条目:应激响应、膜、酶激活剂活性;KEGG通路:内质网蛋白加工、GSL代谢、GSH代谢、氨基酸生物合成、氮代谢
3.5 转录组-蛋白质组整合分析
由于基因表达和蛋白质合成调控网络的复杂性,采用转录组与蛋白质组联合策略。该方法能够鉴定可能参与CNP调控GSL生物合成的关键基因。为验证整合分析,对6个选定基因进行qRT-PCR,比较转录组与蛋白质组数据。qRT-PCR测定的基因表达与RNA-seq结果一致(图S3),证实了转录组和蛋白质组结果的可靠性。
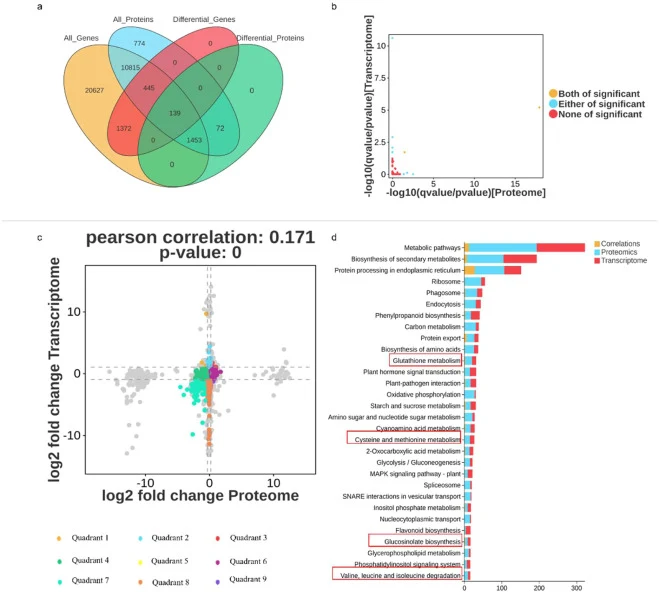
对Ctrl与200 mg/L CNP组中鉴定到的基因和蛋白的差异倍数进行整合转录组-蛋白质组分析。基因与蛋白的共表达直接展示在维恩图中(图4a),有139个基因在翻译水平和转录后水平均重叠。在基因-蛋白共表达分析中,点被分类为两者均显著、任一显著或均不显著(图4b)。由于萝卜中复杂的调控过程,转录组与蛋白质组之间观察到弱相关。CNPs的调控主要影响翻译水平和蛋白翻译水平,表明基因转录与翻译之间存在时间差异。
【数据】qRT-PCR验证基因数:6个;重叠基因数:139个;整合分析组别:Ctrl vs 200 mg/L;转录组-蛋白质组相关性:弱相关
讨论与解读
碳基纳米材料对植物活性化合物的影响已通过多组学方法得到考察。多组学分析整合不同层次的生物信息,为生物过程及潜在机制提供更广阔的视角和更深入的解释。已有研究表明,荧光碳点可诱导Tetrastigma Hemsley中次生代谢物生物合成、黄酮生物合成、卟啉与叶绿素代谢相关DEGs,并建立基因-代谢物关联网络,多组学分析揭示44个枢纽基因与荧光碳点诱导的品质成分积累高度相关;SWCNTs以浓度依赖方式促进酚酸和黄酮等活性化合物的积累;镁掺杂碳量子点纳米材料可激活水稻次生代谢物生物合成。这些研究均表明碳纳米材料影响植物次生代谢物合成。在植物中,矿质元素的吸收利用、初生与次生代谢物合成与代谢共同构成复杂且高度协调的网络。硫苷及其水解产物在生理过程中发挥多种作用——本研究正是在这一框架下,通过转录组与蛋白质组整合,揭示了CNPs以浓度特异方式调控BCAT4、MAM1、IMDH1、SUR1、CYP79F1、UGT74B1等结构基因,并经WGCNA锁定MEpink、MEdarkgreen、MEdarkmagenta模块中MYB44、C2H2、MYC2、ERF105等转录因子与硫苷显著相关,构建了CNPs调控萝卜芽苗菜硫苷生物合成的新调控网络。
编译者解读:该研究的方法学价值在于把表型—元素—代谢物—转录本—蛋白五个层次串成一条证据链,尤其用九象限矩阵和WGCNA把浓度效应落到具体转录因子上,为纳米材料诱导植物品质改良提供了可复用的分析范式。局限也明显:转录组与蛋白质组仅呈弱相关,说明翻译后调控未被覆盖;且实验止于关联分析,MYB44、MYC2等枢纽因子尚未经遗传验证。对合成生物学而言,这批浓度响应型启动子元件与TF候选清单,可作为在微生物或植物底盘重构硫苷通路的调控部件来源。
参考来源
期刊:Scientia Horticulturae, 2026
DOI: 10.1016/j.scienta.2026.115162
DOI: 10.1016/j.scienta.2026.115162