来源:Integrated physiology, transcriptomics and targeted metabolomics reveal a potential quorum sensing network involved in the initial spore density-dependent regulation of morphogenesis and polyketide biosynthesis in Monascus(International Journal of Food Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
红曲霉(Monascus purpureus)是东亚传统的药食两用丝状真菌,其聚酮类次级代谢产物(红曲色素、莫纳可林K、桔霉素)的产量调控长期依赖诱变、培养基优化与基因编辑等手段。本研究首次从群体感应(quorum sensing, QS)视角切入,系统考察初始孢子密度对红曲霉形态发育与聚酮代谢的调控作用。作者整合形态学观察、RT-qPCR、转录组测序与靶向脂肪酸代谢组,发现高初始孢子密度在发酵早期激活核糖体生物合成与次级代谢,低密度则在后期上调过氧化物酶体、抗氧化系统与脂肪酸代谢相关基因,并提出亚油酸及其衍生物可能作为潜在QS信号分子,最终构建了“初始孢子密度—发育—次级代谢”调控网络假说。
研究背景
红曲霉在中国已有两千余年应用历史,可产红曲色素、莫纳可林K(monacolin K, MK)、γ-氨基丁酸和麦角甾醇等多种有益次级代谢产物。随着红曲在红曲米、红曲酒、腐乳、奶酪等传统发酵食品及现代功能食品中的广泛应用,解析其代谢调控机制对优化目标产物合成至关重要。当前调控红曲霉次级代谢的策略主要包括物理/化学诱变、生长条件改良、培养基优化、基因编辑和外源添加物等。
群体感应是微生物种群内及种群间依赖密度的通讯机制,微生物通过分泌和感知群体感应信号分子(quorum sensing molecules, QSMs)启动相关基因表达,从而调控细胞形态改变、生物膜形成、毒力因子产生等形态与生理行为。密度依赖性是真菌QS的核心特征,然而红曲霉中尚未见相关报道。基于此,本研究以红曲霉M1为对象,考察初始孢子密度对其形态发育与聚酮次级代谢的影响,以阐明QS的调控作用。
研究方法
2.1 菌株
红曲霉M1菌株(CGMCC 3.0568)购自中国普通微生物菌种保藏管理中心(CGMCC),以甘油形式保藏于−80 °C。将M1菌株在马铃薯葡萄糖琼脂(PDA)培养基上、30 °C黑暗条件下活化4天,并连续传代2代。
【数据】菌株:M. purpureus M1(CGMCC 3.0568);培养基:PDA;温度:30 °C;时间:4天;保藏温度:−80 °C;传代次数:2代
2.2 培养条件
采用液体深层发酵考察不同初始孢子密度下红曲霉的生长与代谢差异。首先,向PDA培养基中加入5 mL无菌水,用无菌接种环轻刮表面收集孢子悬液。用无菌水和血细胞计数板将孢子悬液浓度调整为10⁴、10⁵和10⁶ spores/mL。随后,将5 mL不同浓度的孢子悬液分别接种至装有45 mL种子培养基(葡萄糖30 g/L、豆粉15 g/L、MgSO₄·7H₂O 1 g/L、KH₂PO₄ 2 g/L、甘油70 g/L、蛋白胨10 g/L、NaNO₃ 2 g/L)的250 mL三角瓶中,使终浓度分别达到10³、10⁴和10⁵ spores/mL。种子培养基于30 °C黑暗、200 rpm培养2天。然后,将10 mL种子液转接至装有90 mL发酵培养基(米粉20 g/L、MgSO₄·7H₂O 1 g/L、ZnSO₄·7H₂O 2 g/L、KH₂PO₄ 2.5 g/L、甘油90 g/L、NaNO₃ 5 g/L、蛋白胨10 g/L)的250 mL三角瓶中。发酵培养基先于30 °C黑暗、200 rpm培养2天,随后转为25 °C、150 rpm培养13天。分别于第2、5、8、12和15天取样。
【数据】孢子悬液浓度:10⁴、10⁵、10⁶ spores/mL;接种后终浓度:10³、10⁴、10⁵ spores/mL;种子培养基装液量:45 mL/250 mL;种子培养:30 °C、200 rpm、2天;发酵培养基装液量:90 mL/250 mL;发酵条件:30 °C/200 rpm 2天 + 25 °C/150 rpm 13天;取样时间:第2、5、8、12、15天;种子培养基组分:葡萄糖30 g/L、豆粉15 g/L、MgSO₄·7H₂O 1 g/L、KH₂PO₄ 2 g/L、甘油70 g/L、蛋白胨10 g/L、NaNO₃ 2 g/L;发酵培养基组分:米粉20 g/L、MgSO₄·7H₂O 1 g/L、ZnSO₄·7H₂O 2 g/L、KH₂PO₄ 2.5 g/L、甘油90 g/L、NaNO₃ 5 g/L、蛋白胨10 g/L
2.3 生物量测定
为测定菌丝生物量,取5 mL发酵液过滤,菌丝用蒸馏水洗涤三次。60 °C脱水至恒重后,按干重与发酵液体积之比计算生物量。
【数据】取样体积:5 mL;洗涤次数:3次;脱水温度:60 °C;计算方式:干重/发酵液体积
2.4 聚酮类代谢产物测定
#### 2.4.1 红曲色素
参照Shi等的方案,向1 mL发酵液中加入3 mL 70%乙醇提取红曲色素。所得溶液于60 °C保持1 h,随后离心(5000 rpm,10 min)澄清。用紫外—可见—近红外分光光度计(Shimadzu UV-3600 Plus)在505 nm、448 nm和410 nm三个特定波长处测定上清液吸光度。最后,根据单位干细胞质量(DCM)吸光度值乘以稀释倍数,得到红曲红、橙、黄三种色素的色价。
【数据】发酵液:1 mL;提取剂:3 mL 70%乙醇;温度:60 °C;时间:1 h;离心:5000 rpm、10 min;检测波长:505、448、410 nm;仪器:Shimadzu UV-3600 Plus
#### 2.4.2 莫纳可林K
莫纳可林K含量参照Zhang等(2025a)方法,采用配备SPD-20A紫外检测器的Shimadzu HPLC系统(LC-20AT,京都,日本)测定。提取过程:将1 mL发酵液与3 mL 70%甲醇混合,超声处理30 min(250 W,40 kHz)。5000 rpm离心10 min后,上清液经0.22 μm膜过滤。HPLC分离在Inertsil ODS-3 C18柱(150 mm × 4.6 mm × 5 μm)上进行。流动相为0.1%磷酸与甲醇(1:3,v/v),等度洗脱,流速1 mL/min。柱温30 °C,紫外检测波长237 nm,进样量10 μL。
【数据】发酵液:1 mL;提取剂:3 mL 70%甲醇;超声:30 min、250 W、40 kHz;离心:5000 rpm、10 min;滤膜:0.22 μm;色谱柱:Inertsil ODS-3 C18(150 mm × 4.6 mm × 5 μm);流动相:0.1%磷酸:甲醇=1:3(v/v);流速:1 mL/min;柱温:30 °C;检测波长:237 nm;进样量:10 μL;仪器:Shimadzu LC-20AT + SPD-20A
#### 2.4.3 桔霉素
采用上海优旋生物科技有限公司(中国上海)的酶联免疫吸附(ELISA)试剂盒测定桔霉素含量。样品制备:取1 mL发酵液加入2 mL甲醇,超声30 min并于60 °C水浴1 h。所得溶液3000 rpm离心15 min,收集上清液用于测定桔霉素含量。
【数据】发酵液:1 mL;甲醇:2 mL;超声:30 min;水浴:60 °C、1 h;离心:3000 rpm、15 min;方法:ELISA试剂盒(上海优旋生物)
2.5 光学显微镜观察
为评估接种密度对产孢的影响,参照前人研究并稍作修改,采用湿室载玻片培养法。将一小块PDA培养基(5 × 5 × 1 mm)转移至无菌载玻片上。分别取3 μL不同浓度(10³、10⁴、10⁵ spores/mL)的孢子悬液接种于PDA培养基中央,立即盖上无菌盖玻片。随后将制备好的载玻片置于含30%甘油的培养皿中,30 °C黑暗培养。用光学显微镜(Olympus CX43,东京,日本)观察产孢情况。
【数据】PDA小块:5 × 5 × 1 mm;接种量:3 μL;孢子浓度:10³、10⁴、10⁵ spores/mL;保湿剂:30%甘油;温度:30 °C;培养:黑暗;仪器:Olympus CX43
2.6 扫描电镜(SEM)与透射电镜(TEM)观察
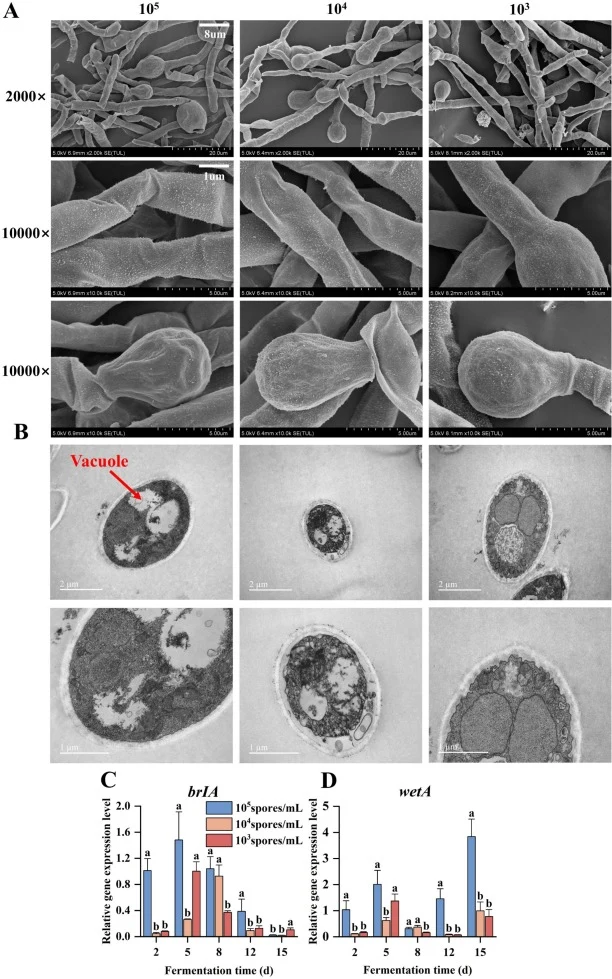
第5天的孢子与菌丝微观形态分别用Hitachi Su8020 SEM(东京,日本)和FEI Tecnai G2 120KV TEM(FEL,美国)观察。从0.5 mL发酵液中收集菌丝(12,000 rpm,5 min),用0.2 mol/L磷酸缓冲液(pH 7.2)洗涤两次。随后样品分别在2.5%戊二醛和混合固定液(4%多聚甲醛:2.5%戊二醛=1:1)中于4 °C固定过夜。最后,样品送至北京中科百测有限公司(中国北京)进行观察。
【数据】取样时间:第5天;发酵液:0.5 mL;离心:12,000 rpm、5 min;缓冲液:0.2 mol/L磷酸缓冲液、pH 7.2;洗涤:2次;固定液:2.5%戊二醛、4%多聚甲醛:2.5%戊二醛=1:1;固定温度:4 °C;固定时间:过夜;仪器:Hitachi Su8020 SEM、FEI Tecnai G2 120KV TEM
2.7 实时荧光定量PCR(RT-qPCR)测定
基因表达水平定量采用RT-qPCR。RT-qPCR详细方案见本课题组前期研究。以甘油醛-3-磷酸脱氢酶(GAPDH)基因作为内参基因,引物列于表S1。基因相对表达水平采用2^−ΔΔCt法计算。
【数据】内参基因:GAPDH;引物:见表S1;计算方法:2^−ΔΔCt法;方法来源:Shi et al., 2022a
2.8 转录组测序与分析
分别于第5天和第12天收集高初始孢子密度(10⁵ spores/mL)和低初始孢子密度(10³ spores/mL)的菌丝样品,命名为HD5、HD12、LD5和LD12。每个样品的RNA提取、RNA纯化、反转录、文库构建与测序均由上海美吉生物医药科技有限公司(中国上海)完成。具体方法同前期实验。各转录本表达水平按每百万reads转录本(TPM)法计算,采用RSEM(版本1.3.3)定量基因丰度。所有数据在Majorbio Cloud Platform(https://cloud.majorbio.com/)在线平台分析。转录组数据通过RT-qPCR验证,引物详见表S1。
【数据】取样时间:第5天、第12天;高密度:10⁵ spores/mL(HD5、HD12);低密度:10³ spores/mL(LD5、LD12);定量方法:TPM;软件:RSEM 1.3.3;测序服务:上海美吉生物;验证方法:RT-qPCR(引物见表S1)
2.9 脂肪酸含量测定与分析
样品(55 mg)在1 mL二氯甲烷/甲醇混合液(1:1,v/v)中用Wonbio-96c组织研磨仪(上海万博生物科技有限公司,中国上海)以50 Hz匀浆3 min。匀浆后超声处理15 min,并于−20 °C孵育15 min。4 °C、13,000 ×g离心10 min后,取800 μL上清液用氮气吹干。脂肪酸甲酯化:加入0.3 mL 0.2 mol/L KOH-甲醇,涡旋30 s,60 °C水浴30 min。冷却后加入0.3 mL正己烷,涡旋30 s。4 °C、13,000 ×g离心10 min后,取100 μL上层正己烷相转移至进样瓶,供后续GC–MS分析。GC–MS分析在Agilent 8890-7000D GC/MSD系统(圣克拉拉,CA,美国)上进行,使用Agilent DB-FAST FAME毛细管柱(30 m × 250 μm × 0.25 μm,Agilent J&W Scientific,福尔松,CA,美国)。高纯氦气(≥99.999%)作为载气,流速1.0 mL/min。样品进样量1 μL,进样口温度260 °C,分流比10:1,溶剂延迟9.9 min。柱温初始保持80 °C,经三步梯度升至230 °C:以70 °C/min升至175 °C,以8 °C/min升至200 °C,最后以5 °C/min升至230 °C(保持1 min)。
【数据】样品量:55 mg;提取剂:1 mL二氯甲烷/甲醇(1:1,v/v);匀浆:50 Hz、3 min;超声:15 min;孵育:−20 °C、15 min;离心:13,000 ×g、10 min、4 °C;上清:800 μL;甲酯化:0.3 mL 0.2 mol/L KOH-甲醇、涡旋30 s、60 °C水浴30 min;萃取剂:0.3 mL正己烷;进样:100 μL;色谱柱:Agilent DB-FAST FAME(30 m × 250 μm × 0.25 μm);载气:氦气≥99.999%、1.0 mL/min;进样量:1 μL;进样口温度:260 °C;分流比:10:1;溶剂延迟:9.9 min;柱温程序:80 °C → 175 °C(70 °C/min)→ 200 °C(8 °C/min)→ 230 °C(5 °C/min,保持1 min);仪器:Agilent 8890-7000D GC/MSD
研究结果
3.1 初始孢子密度对红曲霉形态与聚酮代谢产物含量的影响
形态发生与次级代谢产物生物合成是经典的密度依赖行为,可受真菌群体感应调控。因此,本研究考察了初始孢子密度对红曲霉形态与次级代谢产物产量的影响。图1A展示了湿室载玻片培养过程中红曲霉的形态。第2天时,初始孢子密度为10⁵ spores/mL的条件下可观察到菌丝顶端产生大量分生孢子,而初始孢子密度为10³ spores/mL时未观察到分生孢子形成。第4天和第6天,不同初始孢子密度下均观察到菌丝顶端产生丰富的分生孢子。这些结果表明,与低初始孢子密度相比,高初始孢子密度加速了红曲霉培养早期的分生孢子与菌丝发育。与本研究发现类似,本课题组前期研究也发现亚油酸及其衍生物(氧化脂质)可促进分生孢子与菌丝生长。
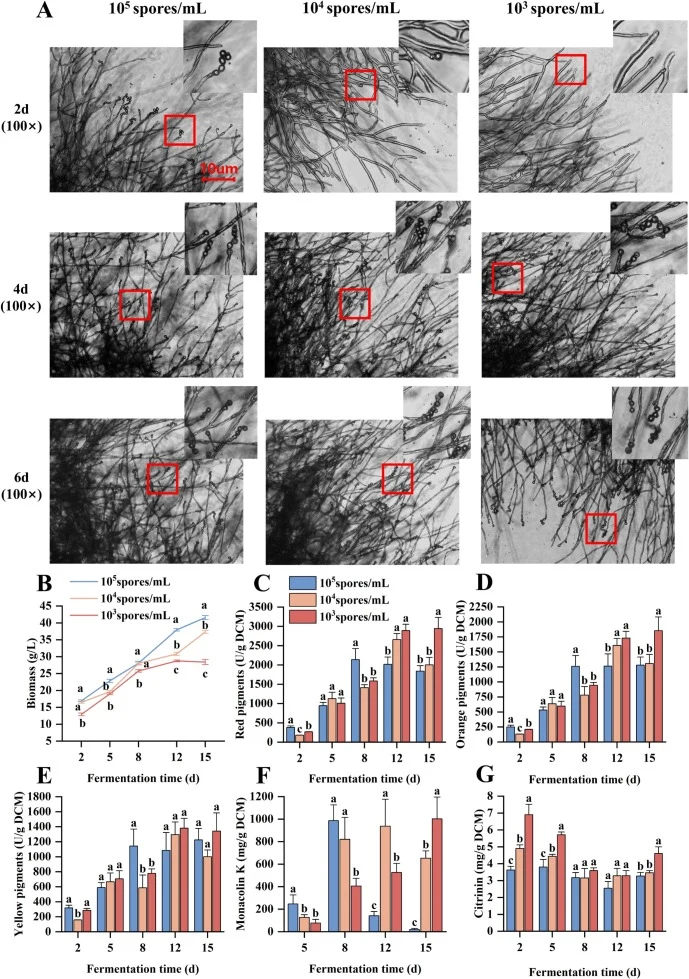
聚酮类化合物是红曲霉产生的一类重要次级代谢产物,主要包括红曲色素、莫纳可林K和桔霉素。因此,测定了不同初始孢子密度下生物量与聚酮代谢产物含量的变化。如图1B所示,不同初始孢子密度下生物量均随发酵时间逐渐增加,且高初始孢子密度下的生物量显著高于低初始孢子密度。图1C、D、E分别展示了三种红曲色素(红曲红、红曲橙、红曲黄)含量的变化。可以观察到,第2天和第8天时高初始孢子密度(10⁵ spores/mL)下红曲色素含量显著高于低初始孢子密度(10³ spores/mL)。特别是在第8天,高初始孢子密度(10⁵ spores/mL)下红曲红、红曲橙和红曲黄色素含量分别为低初始孢子密度(10³ spores/mL)的1.35、1.33和1.47倍。然而,在发酵第12天和第15天,低初始孢子密度(10³ spores/mL)下红曲色素(红、橙)含量显著高于高初始孢子密度(10⁵ spores/mL)。这些结果提示,低初始孢子密度下红曲色素生物合成可能在发酵后期被激活,导致红曲色素含量升高。
【数据】高密度:10⁵ spores/mL;低密度:10³ spores/mL;第8天色素倍数:红曲红1.35倍、红曲橙1.33倍、红曲黄1.47倍;生物量:高密度显著高于低密度;色素后期(第12、15天):低密度红、橙色素显著高于高密度
图1F展示了不同初始孢子密度下发酵过程中MK含量的变化。初始孢子密度为10⁵和10⁴ spores/mL时,MK含量呈先升后降趋势,分别在第8天和第12天达到最高水平986.42 mg/g DCM和937.34 mg/g DCM。相反,初始孢子密度为10³ spores/mL时,MK含量随发酵时间增加,第15天达到最大值(1002.05 mg/g DCM)。在液体深层发酵中,Zhang等也观察到莫纳可林K含量随发酵时间延长在达到峰值后呈下降趋势。类似地,在固态发酵中也有报道莫纳可林K含量达到最大值后随发酵时间延长而下降。发酵后期,发酵底物的消耗可能导致包括莫纳可林K在内的发酵产物被消耗,从而引起莫纳可林K含量下降。与低初始孢子密度相比,高初始孢子密度可加速底物消耗,使莫纳可林K含量的下降发生在更早的时间点。此外,莫纳可林K含量下降也可能与底物反馈抑制有关。这些结果表明不同初始孢子密度可影响MK含量。
【数据】MK峰值:10⁵ spores/mL第8天986.42 mg/g DCM;10⁴ spores/mL第12天937.34 mg/g DCM;10³ spores/mL第15天1002.05 mg/g DCM;趋势:高密度先升后降、低密度持续上升
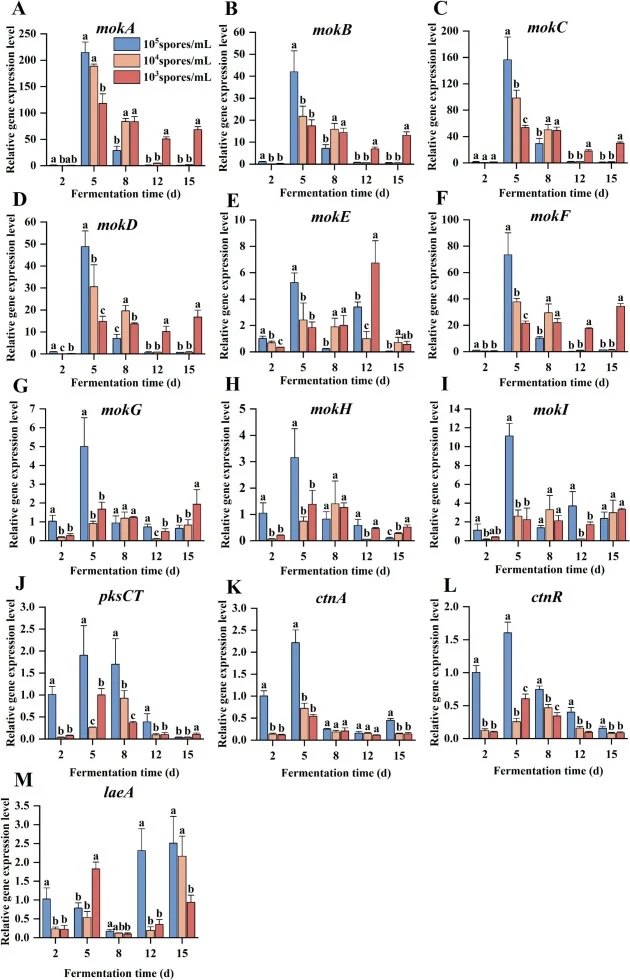
如图1G所示,不同初始孢子密度下桔霉素含量在发酵过程中呈上升趋势。发酵早期(第2天和第5天),低初始孢子密度的桔霉素含量显著高于高初始孢子密度。发酵第2天,低初始孢子密度(10³ spores/mL)下桔霉素含量为高初始孢子密度(10⁵ spores/mL)的1.90倍。该结果与黄曲霉在低孢子密度下黄曲霉毒素含量最高的发现一致。然而,发酵第2天高初始孢子密度下红曲色素产量高于低初始孢子密度。既往研究已证明桔霉素与红曲色素产量呈负相关。Liu等和Chai等的研究表明,敲除桔霉素合成基因后红曲色素产量分别提高2–5%和13.8%。类似地,红曲色素合成基因的敲除或过表达导致桔霉素相应升高或降低。有趣的是,Farawahida等报道与红曲色素混合后桔霉素含量降低16–68%,提示桔霉素与红曲色素之间可能存在直接相互作用。除桔霉素与红曲色素部分共享生物合成途径及潜在直接相互作用外,QSMs也参与调控桔霉素与红曲色素的产生。现有研究表明,QSMs(γ-丁内酯和酪醇)可促进红曲色素合成同时抑制桔霉素形成。因此,初始孢子密度可通过多种机制协同调控红曲色素与桔霉素的形成。
【数据】桔霉素趋势:随发酵上升;第2天低密度(10³)为高密度(10⁵)的1.90倍;早期(第2、5天):低密度显著高于高密度;敲除桔霉素基因后色素提升:2–5%(Liu等)、13.8%(Chai等);色素混合后桔霉素降低:16–68%
3.2 初始孢子密度对红曲霉色素合成基因表达的影响
为探究初始孢子密度对红曲色素生物合成的影响,测定了红曲色素合成相关基因的转录水平,包括MpPKS5、MpFasA2、MpFasB2、mppA、mppB、mppC、mppD、mppE、mppG、mpp7、mppR1和mppR2。如图2所示,发酵第2天,高初始孢子密度(10⁵ spores/mL)下MpFasA2、MpFasB2、mppA、mppC和mppG基因的相对表达量分别为低初始孢子密度(10³ spores/mL)的1.63、1.82、18.51、5.68和19.93倍。这与发酵第2天高初始孢子密度下红曲色素含量高于低初始孢子密度的结果一致。MpFasA2和MpFasB2基因编码脂肪酸合酶,负责生成红曲色素的侧链脂肪酰基部分(C8和C10)。MpPKS5基因编码聚酮合酶,与mppA和mppD基因共同作用形成红曲色素的基本聚酮骨架。mppC基因编码NAD(P)H依赖的氧化还原酶,可还原底物双键以促进分子内区域选择性Knoevenagel反应,从而为红曲黄色素提供特征性线性三环碳骨架。
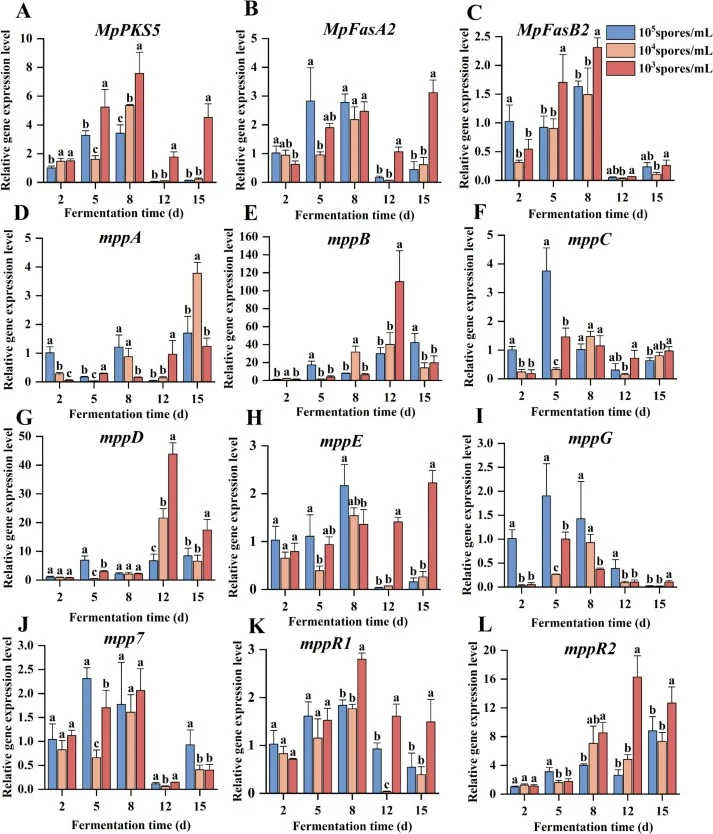
【数据】检测基因:MpPKS5、MpFasA2、MpFasB2、mppA、mppB、mppC、mppD、mppE、mppG、mpp7、mppR1、mppR2;第2天高/低密度表达倍数:MpFasA2 1.63倍、MpFasB2 1.82倍、mppA 18.51倍、mppC 5.68倍、mppG 19.93倍;比较组:10⁵ vs 10³ spores/mL
3.3 初始孢子密度对MK与桔霉素合成基因表达的影响
3.4 初始孢子密度对红曲霉生长发育的影响
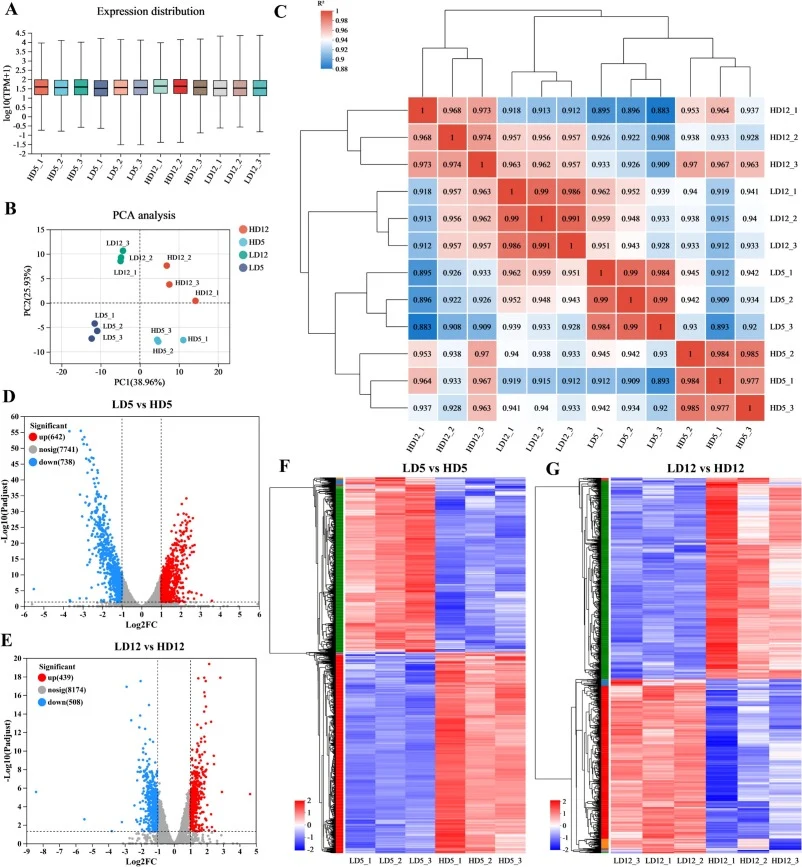
3.5 转录组测序与差异表达基因分析
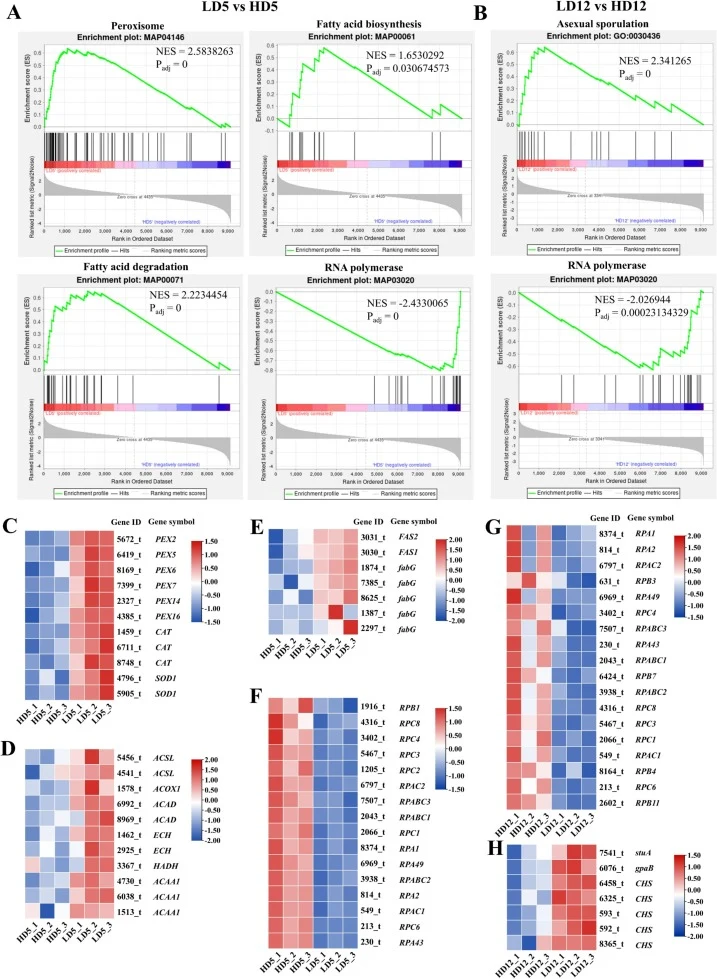
3.6 基因集富集分析(GSEA)
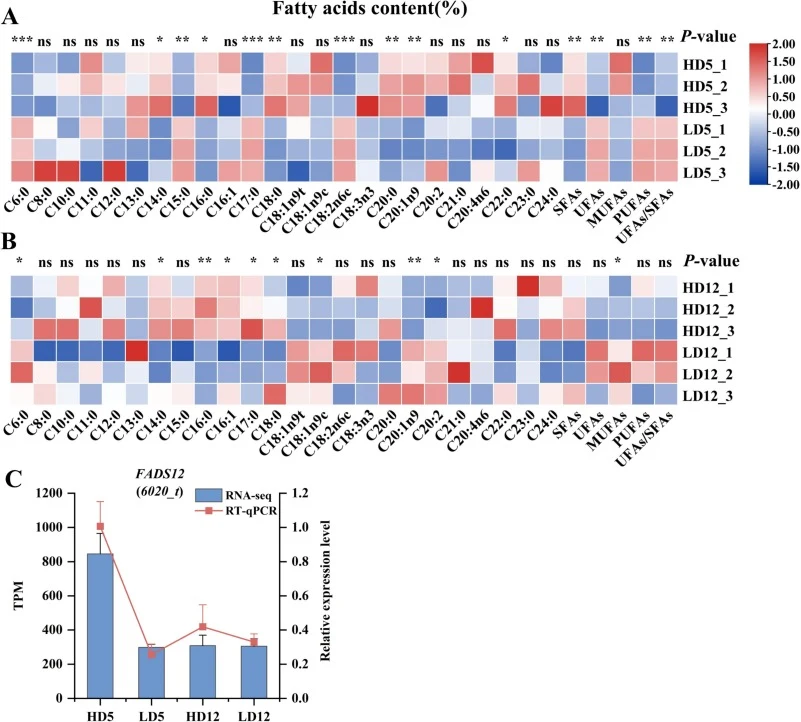
3.7 脂肪酸组成与FADS12表达分析
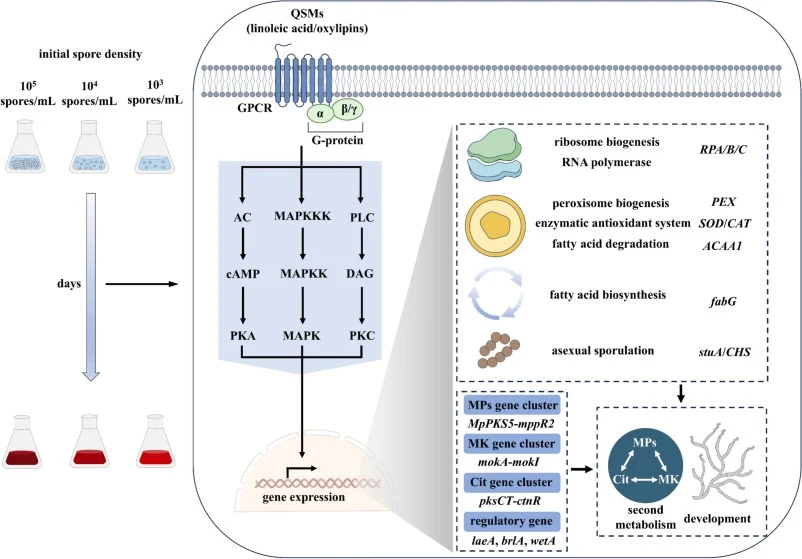
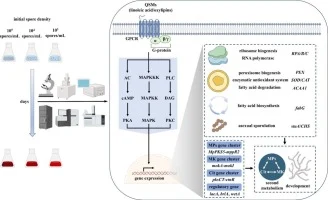
3.8 初始孢子密度调控红曲霉发育与次级代谢的潜在网络
讨论与解读
本研究证实初始孢子密度是调控红曲霉形态发生与聚酮次级代谢的关键因子,且该过程由群体感应介导。高初始孢子密度促进发酵早期更活跃的分生孢子发育与次级代谢,而低初始孢子密度下这些过程在发酵后期才活跃。转录组分析进一步揭示不同初始孢子密度下的差异化调控策略:高密度主要激活核糖体生物合成,低密度则显著上调过氧化物酶体生物合成、酶促抗氧化系统、脂肪酸降解、脂肪酸生物合成及无性产孢相关基因。高初始孢子密度下亚油酸的消耗间接提示亚油酸及其衍生物可能作为QSMs发挥作用。最终构建了整合初始孢子密度与次级代谢及发育的潜在调控网络,为理解红曲霉细胞间通讯提供了新的理论框架。这些发现不仅加深了对红曲霉QS网络的认识,也为通过优化接种策略高效控制红曲发酵提供了有价值的见解。但本研究仍存在一定局限性。
编译者解读:该研究将真菌群体感应概念引入红曲霉发酵调控,方法上以初始孢子密度这一易控工艺参数为自变量,串联形态、基因表达、转录组与脂肪酸代谢组多层证据,思路务实。其价值在于为红曲发酵“接种量”这一传统经验参数提供了QS机制解释,并提示亚油酸类分子可作潜在信号靶点。局限在于网络仍属假说层面,QSMs未经外源添加/受体阻断实验直接验证,桔霉素与色素的协同调控机制亦有待遗传学证据支撑。
参考来源
期刊:International Journal of Food Microbiology, 2026
DOI: 10.1016/j.ijfoodmicro.2026.112001
DOI: 10.1016/j.ijfoodmicro.2026.112001