来源:Stimulation response of Bacillus safensis and Chlorella marina planktonic cells to vanadium (V), iron (III) and copper (II) in artificial seawater environment(Journal of Ocean Engineering and Science)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
钛合金在海洋工程中长期服役会释放微量金属离子,这些离子如何影响早期微生物定殖尚不清楚。本研究以人工海水为基质,对比了芽孢杆菌 Bacillus safensis 与海洋微藻 Chlorella marina 对 V(V)、Fe(III)、Cu(II) 三种离子的响应。结果显示两种微生物均呈"低促高抑"的毒物兴奋效应,毒性排序为 Cu(II) > V(V) > Fe(III),且 B. safensis 对 Fe(III) 表现出显著的优先富集,72 h、50 μM 条件下表观生物富集因子达 6567.89 ± 732.04 L kg⁻¹。
研究背景
钛合金因强度高、耐蚀、质轻而被广泛用于海洋工程装备与结构材料。以 Ti-6Al-4V 为例,其主要合金元素为约 6 wt.% Al 与 4 wt.% V,并含少量 Fe 及 Cu 等间隙元素。在人工或天然海水中,钛合金表面易形成致密 TiO₂ 钝化膜;但长期服役或局部损伤时,组成元素可能以离子或腐蚀产物形式逐步释放,在合金表面附近形成局部富集的金属离子微环境,改变界面化学性质,并可能影响微生物的早期黏附与定殖。海洋生物污损始于有机与无机分子在浸没表面的吸附,随后是微生物附着、胞外聚合物分泌以及日趋复杂的生物膜发育。这些生物膜为后续微型与大型污损生物提供生物学基础,并可通过增大水动力阻力、干扰传感器与换热设备、促进微生物影响腐蚀(MIC)等方式危害海洋结构。生物膜基质同时也会富集金属离子,使界面微环境进一步复杂化。在此背景下,合金腐蚀释放离子究竟充当污损信号还是毒性因子,取决于离子种类、浓度与微生物类群,这正是本研究要回答的问题。
研究方法
2.1 微生物培养
人工海水配制:将 NaCl(7647-14-5,阿拉丁,AT,≥99.5%)溶于去离子水,配制成盐度 33‰ 的人工海水溶液,过滤去除颗粒物后备用。
Bacillus safensis 培养:本研究所用 B. safensis 购自 BeNa Culture(BNCC370613)。用于 B. safensis 扩培的培养基组分为:CaCl₂·2H₂O 0.25 g/L、MgSO₄·7H₂O 0.50 g/L、(NH₄)₂SO₄ 0.20 g/L、KH₂PO₄ 0.20 g/L、酵母提取物 2.00 g/L、葡萄糖 5.00 g/L。培养基经 121°C 高压蒸汽灭菌 15 min 后冷却备用。
Chlorella marina 培养:本研究所用 C. marina 购自光宇生物(上海光宇生物科技有限公司,GY-H4)。培养 C. marina 的培养基组分为:NaNO₃ 0.25 g/L、K₂HPO₄ 0.07 g/L、Na₂HPO₄·12H₂O 0.15 g/L、MgSO₄·7H₂O 0.15 g/L、CaCl₂·2H₂O 0.05 g/L、Na₂CO₃ 0.02 g/L。培养基经 121°C 高压蒸汽灭菌 15 min 后冷却备用。
标准化培养条件:所有未添加金属的 B. safensis 与 C. marina 培养物均在 25°C、pH 7.2 ± 0.1、溶解氧维持 6.5–7.0 mg/L 条件下培养,光暗周期为 12 h 光照/12 h 黑暗(光照强度 1000 lux,黑暗期培养物置于避光培养箱)。除外源添加不同浓度金属离子外,其余培养条件完全一致。以指数生长期的微生物作为接种物。生长至指数期后,将细胞制备成 1 × 10⁶ cells/mL 的悬液,作为所有实验组的统一初始接种物。0 h 定义为接种并加入目标金属离子之后的即刻时刻,此时悬液已含预设初始细胞密度。
【数据】菌株:B. safensis BNCC370613、C. marina GY-H4;盐度:33‰;温度:25°C;pH:7.2 ± 0.1;溶解氧:6.5–7.0 mg/L;光暗周期:12 h/12 h;光照强度:1000 lux;初始接种密度:1 × 10⁶ cells/mL;灭菌条件:121°C、15 min;培养基组分(B. safensis):CaCl₂·2H₂O 0.25 g/L、MgSO₄·7H₂O 0.50 g/L、(NH₄)₂SO₄ 0.20 g/L、KH₂PO₄ 0.20 g/L、酵母提取物 2.00 g/L、葡萄糖 5.00 g/L;培养基组分(C. marina):NaNO₃ 0.25 g/L、K₂HPO₄ 0.07 g/L、Na₂HPO₄·12H₂O 0.15 g/L、MgSO₄·7H₂O 0.15 g/L、CaCl₂·2H₂O 0.05 g/L、Na₂CO₃ 0.02 g/L
2.2 金属离子溶液的配制
营养丰富的培养基仅用于将 B. safensis 与 C. marina 预培养至对数生长期。预培养与金属暴露实验分开进行。暴露前收获细胞,弃去含营养的上清液,用无菌 NaCl 溶液反复洗涤细胞,以尽量减少残留营养物及其他培养基组分的携带。洗涤后的细胞随后重悬于无菌 NaCl 基人工海水基质中。V(V)、Fe(III)、Cu(II) 储备液在同一 NaCl 基质中配制,并加入洗涤后的细胞悬液,使最终金属浓度达到 5 与 50 μM。原始营养丰富培养基未加入或稀释进暴露体系。金属暴露期间不供给外源碳源、氮源、维生素或其他营养培养基组分;因此,目标金属离子是唯一有意变化的实验组分。
配制 V(V)、Fe(III)、Cu(II) 金属离子溶液所用试剂为 Na₃VO₄(CAS 13721-39-6,阿拉丁,AR,99%)、FeCl₃·6H₂O(CAS 10025-77-1,阿拉丁,AR,99%)与 CuCl₂(CAS 7447-39-4,阿拉丁,AR,99%)。摩尔质量分别为:Na₃VO₄ = 183.91 g/mol,FeCl₃·6H₂O ≈ 270.32 g/mol,CuCl₂ ≈ 134.45 g/mol。按质量浓度 = 摩尔浓度 × 摩尔质量的公式,计算配制目标摩尔浓度溶液所需试剂质量。所述浓度代表加入人工海水体系的 V(V)、Fe(III)、Cu(II) 名义总浓度。这些氧化态标注并不表示金属在溶液中仅以游离 V⁵⁺、Fe³⁺ 或 Cu²⁺ 离子形式存在。由于本研究未直接测定金属形态,故未具体指定各水溶液物种。配制 0.5 μM、5 μM、50 μM 与 500 μM V(V)、Fe(III)、Cu(II) 溶液所需质量见表 1。先配制较高浓度储备液,再逐级稀释获得各目标浓度溶液。金属离子以单次初始剂量加入,以建立明确且可重复的名义暴露,便于处理间比较。此脉冲暴露设计为有意选择,并不旨在复现钛合金服役中的连续释放动力学。
对每种微生物,对照组由相同人工海水培养基、相同培养条件下培养但不添加金属离子的细胞组成。选择 0.5、5 与 50 μM 浓度以代表与海水中钛合金表面金属离子释放及可能局部富集相关的低至中等暴露条件。500 μM 浓度作为极端挑战条件而非典型环境浓度纳入,用以评估微生物的耐受上限及与严重金属胁迫相关的细胞响应。浓度选择的实验依据进一步由无菌人工海水中代表性钛合金离子释放的 ICP-MS 测定支持,详见补充信息。设置无金属人工海水组作为对照条件。对照组含相同人工海水培养基,并接受与金属处理组相同的培养与取样程序,但不添加 V(V)、Fe(III) 或 Cu(II)。对每种微生物,对照与金属暴露组具有相同初始细胞密度,并在相同盐度、营养、温度、培养及光照或振荡条件下维持。因此,无金属人工海水组对应 0 μM 添加金属。
【数据】金属试剂:Na₃VO₄(CAS 13721-39-6,AR,99%)、FeCl₃·6H₂O(CAS 10025-77-1,AR,99%)、CuCl₂(CAS 7447-39-4,AR,99%);摩尔质量:Na₃VO₄ 183.91 g/mol、FeCl₃·6H₂O 270.32 g/mol、CuCl₂ 134.45 g/mol;暴露浓度:0.5、5、50、500 μM;暴露方式:单次初始剂量脉冲暴露;对照:0 μM 无金属人工海水
2.3 生长监测与细胞密度测定
在指定取样时间监测微生物生长,并以悬液细胞密度表示。分别针对 B. safensis 与 C. marina 建立将细胞悬液测得光信号与细胞密度关联的种属特异性校准曲线,见图 S1。各培养样品测得信号通过相应校准关系转换为细胞密度。所有对照与金属处理样品在相同条件下测定,以便不同暴露组间比较。0 h 初始细胞密度值非零,因为实验开始时已加入确定细胞接种物。
【数据】检测指标:悬液细胞密度;B. safensis 测定波长:OD600;C. marina 测定波长:OD680;校准曲线:图 S1;初始时间点:0 h(非零);原文未详述取样时间点具体间隔
2.4 微生物细胞形态的 SEM 观察
使用高速台式离心机(TG16-WS,湖南湘仪实验室仪器开发有限公司,中国)于 4°C、4025 × g 离心细胞悬液 5 min,样品置于 2 mL 聚丙烯锥形离心管中。去除上清后,将细胞沉淀重悬于 0.1 M 磷酸盐缓冲液(PBS)中,并在相同条件下再次离心。此洗涤程序重复三次,以去除胞外海盐与残留金属离子。洗涤后的细胞于 4°C 用 0.1 M PBS 配制的 2.5% 戊二醛固定 2 h。固定后,样品用 PBS 洗涤三次,每次 10 min。固定细胞随后依次在 30%、50%、70%、80%、90% 与 100% 乙醇中脱水,每个浓度 5 min。100% 乙醇脱水重复两次。脱水样品适当稀释后,取 5 μL 滴加于清洁硅片。使用前,硅片依次在丙酮、无水乙醇与去离子水中各超声清洗 10 min。标本随后经临界点干燥后检测。细胞形态使用场发射……(原文此处节选结束)
【数据】离心条件:4025 × g、5 min、4°C;离心管:2 mL 聚丙烯锥形离心管;洗涤液:0.1 M PBS;洗涤次数:3 次;固定液:2.5% 戊二醛(0.1 M PBS 配制);固定条件:4°C、2 h;PBS 洗涤:3 次、每次 10 min;乙醇梯度:30%、50%、70%、80%、90%、100%;每级脱水时间:5 min;100% 乙醇重复:2 次;滴加体积:5 μL;硅片超声清洗:丙酮、无水乙醇、去离子水各 10 min;干燥方式:临界点干燥
研究结果
3.1 金属离子暴露下的生长响应
图 1 呈现了 B. safensis 与 C. marina 暴露于不同浓度 V(V)、Fe(III)、Cu(II) 的生长响应。所绘数值为绝对悬液细胞密度,由 B. safensis 的 OD600 与 C. marina 的 OD680 测量值,经图 S1a1 与 S1a2 所示基于直接计数的校准曲线换算得到。光学密度测定前,细胞经离心与含金属培养液分离并重悬于人工海水,从而尽量减少培养基颜色与背景吸光度的可能干扰。因此 0 h 初始值非零,因为接种后悬液已含预设初始细胞密度。结果表明,两种海洋微生物对三种金属离子表现出显著不同的耐受与适应特征。尽管钛合金在实际环境中可能逐步、连续释放金属离子,本研究采用简化的脉冲暴露体系,以便在相同条件下直接比较种属特异性微生物响应。因此,结果应解释为受控暴露下的基线生长耦合响应,而非对合金动态金属释放的完整模拟。
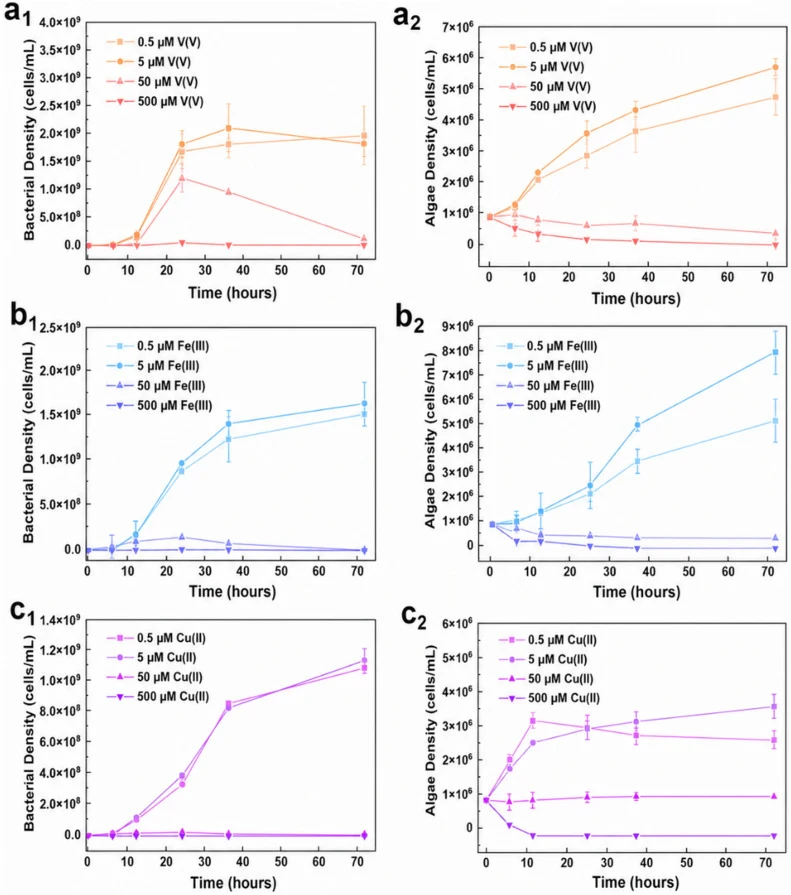
在本实验条件下,对三种金属的响应总体呈浓度依赖的从刺激或适应向抑制的转变。对 V(V),刺激或适应响应主要在 0.5–5 μM 观察到,而抑制在 50 μM 变得明显,并在 500 μM 显著。Fe(III) 表现出最宽的有益或可耐受范围,尤其在 B. safensis 中,其铁相关分配保持显著;然而在 50 μM 时生长与细胞扰动增加,500 μM 时出现明显抑制。对 Cu(II),低浓度刺激主要限于 0.5–5 μM,而 50 μM 时已观察到明显抑制响应,500 μM 时发生严重细胞毒性。因此,在所试条件下,V(V) 与 Cu(II) 的显著抑制起始约在 50 μM 或以上,而 Fe(III) 表现出相对更宽的耐受窗口。由于未进行种属分辨的钒形态分析,所观察到的生物学响应不能单独归因于 H₂VO₄⁻、HVO₄²⁻ 或任何多聚钒酸物种。因此,所报告的响应代表在既定 pH 与人工海水条件下总 Na₃VO₄ 衍生钒池的综合效应。
在 V(V) 处理下(图 1a1、a2),B. safensis 在低浓度(0.5–5 μM)时悬液细胞密度较无添加金属离子对照(0 μM)略有增加,提示轻度刺激效应。然而当 V(V) 浓度增至 50 与 500 μM 时,B. safensis 生长被显著抑制,最终悬液细胞密度大幅低于无金属添加对照组。相反,C. marina 对 V(V) 表现出更高敏感性,即使在 0.5 μM 也已明显抑制,更高浓度下生长近乎完全停滞。综上,这些结果表明在钒离子胁迫下 B. safensis 表现出部分耐受,而 C. marina 高度敏感。
在 Fe(III) 处理下(图 1b1、b2),B. safensis 与 C. marina 在低浓度均表现出生长刺激。在 0.5 μM 与 5 μM Fe(III) 下,B. safensis 的指数生长期明显提前,72 h 时 B. safensis 细胞密度较对照高出约 20%。类似地,C. marina 培养物呈现相似趋势。与空白对照结果一致,这些观察提示铁作为必需元素在低浓度可促进代谢与生长。然而当 Fe(III) 浓度增至 50 μM 与 500 μM 时,两物种生长曲线趋于平台,并在后期时间点出现轻微下降,表明铁的双重作用:低浓度为营养物,高浓度则成为氧化胁迫或离子失衡来源。
在 Cu(II) 处理下(图 1c1、c2),本研究同样观察到初始低剂量刺激效应。在 0.5 μM Cu(II) 下,B. safensis 在前 24 h 细胞密度略高于对照。当 Cu(II) 浓度增至 50 μM 与 500 μM 时,B. safensis 种群迅速受阻,72 h 细胞密度仅为对照的 20%–30%。C. marina 对铜表现出更高敏感性,0.5 μM 时增殖受限,高浓度下生长完全丧失。铜可通过细菌中铜依赖蛋白发挥微量营养功能,也可通过质体蓝素介导的光合电子传递、呼吸与抗氧化过程在绿微藻中起作用。或者,低的亚致死铜暴露可能激活适应性代谢或抗氧化响应。所观察到的促进可能源于上述任一过程或其组合。然而在更高铜浓度下,生长值相对 0 μM 对照下降,并伴随显著的拉曼扰动与细胞变形,支持以抑制与毒性为主的响应。此结果与先前报道一致,即铜对藻类的急性毒性强于对细菌。此外,同一体系内的平行比较揭示了二者耐受差异的定量模式。
Cu(II) 的显著抑制效应可归因于若干相互关联的机制。Cu(II) 首先与微生物细胞表面带负电基团(包括羧基、磷酸基与氨基)相互作用,可能扰乱细胞包膜的组织与通透性。膜损伤促进铜进一步进入,并可能引起膜去极化、胞内组分泄漏及跨膜运输受损。对含铜钛合金的研究同样表明,释放的 Cu(II) 抑制海洋铜绿假单胞菌的呼吸、附着与生物膜活性,从而减少微生物影响腐蚀。进入周质或胞内空间后,铜可强结合含硫醇蛋白,并从金属蛋白中置换天然金属辅因子。尤其 Cu(I) 可损伤暴露的铁硫簇,干扰参与呼吸、中心代谢、氧化还原调控与核苷酸生物合成的酶类。这些效应降低 ATP 产生,削弱细胞维持膜稳态与修复受损生物分子的能力。铜毒性还可能涉及氧化胁迫。细胞还原剂可将 Cu(II) 转化为 Cu(I),而 Cu(I) 随后可被再氧化,建立 Cu(II)/Cu(I) 氧化还原循环。在有氧细胞中,此循环可能促进 O₂•⁻ 与 H₂O₂ 的形成。由此产生的活性物种可能引发膜脂过氧化并氧化蛋白、色素与核酸。当铜与核碱基或磷酸骨架结合并在 DNA 分子附近产生活性中间体时,可发生铜介导的 DNA 损伤。此类局部反应可能产生氧化碱基、脱氧核糖修饰、无碱基位点及单链或双链断裂,最终干扰 DNA 复制与转录。铜诱导的代谢抑制及抗氧化与 DNA 修复系统受损可能进一步促进这些损伤的积累。然而,ROS 依赖与非依赖途径的相对贡献可能随微生物……(原文此处节选结束)
【数据】B. safensis 测定:OD600;C. marina 测定:OD680;V(V) 刺激/适应范围:0.5–5 μM;V(V) 抑制起始:50 μM;V(V) 显著抑制:500 μM;Fe(III) 有益/耐受范围:最宽;Fe(III) 生长扰动:50 μM;Fe(III) 明显抑制:500 μM;Fe(III) 0.5–5 μM 下 B. safensis 72 h 细胞密度较对照提高约 20%;Cu(II) 低浓度刺激范围:0.5–5 μM;Cu(II) 明显抑制:50 μM;Cu(II) 严重细胞毒性:500 μM;Cu(II) 50–500 μM 下 B. safensis 72 h 细胞密度为对照的 20%–30%;毒性排序:Cu(II) > V(V) > Fe(III);对照:0 μM
3.2 细胞形态与元素组成(SEM-EDS)
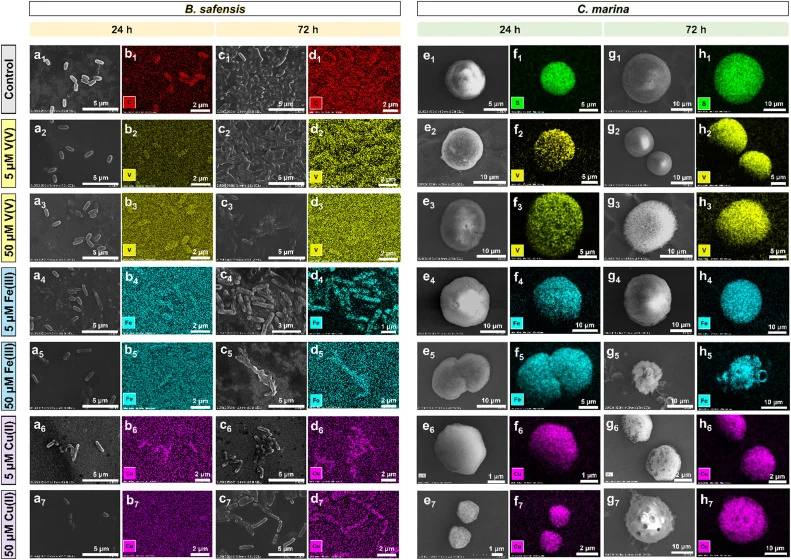
图 2 展示了不同浓度金属离子处理下 B. safensis 与 C. marina 细胞的 SEM 图像与对应 EDS 元素映射。培养 24 h 后(图 2a1–7、b1–7),无金属对照细胞形态完整、表面光滑;随金属浓度升高,细胞表面出现明显变形、皱缩与表面附着物增多。培养 72 h 后(图 2c1–7、d1–7),高浓度处理组细胞形态损伤进一步加剧。C. marina 细胞在 24 h 后的 SEM 与 EDS 映射(图 2e1–7、f1–7)同样显示金属处理引起的形态改变与元素信号变化。(原文该节选内容有限,具体元素映射数据未在节选中详述。)
【数据】观察时间点:24 h、72 h;检测手段:SEM + EDS 元素映射;金属浓度梯度:0.5、5、50、500 μM(对应图注 a1–7、b1–7 等系列);对照:无金属;具体元素含量数值:原文未详述
3.3 溶解态金属残余浓度(ICP-OES)
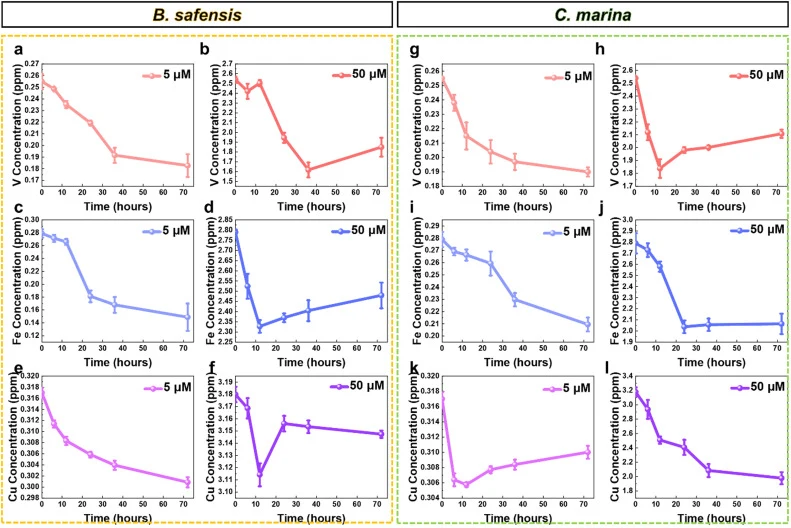
图 3 给出含 B. safensis 或 C. marina 培养体系中 V(V)、Fe(III)、Cu(II) 随时间变化的残余浓度,由 ICP-OES 直接测定。图 3a、c、e 与 3b、d、f 分别显示 B. safensis 培养物初始暴露于 5 μM 与 50 μM 金属离子时的残余浓度;图 3g、i 等显示 C. marina 体系对应结果。(原文该节选未给出具体残余浓度数值。)
【数据】检测方法:ICP-OES;初始暴露浓度:5 μM、50 μM;时间进程:原文未详述具体取样点;残余浓度具体数值:原文未详述
3.4 去除效率与生物富集因子
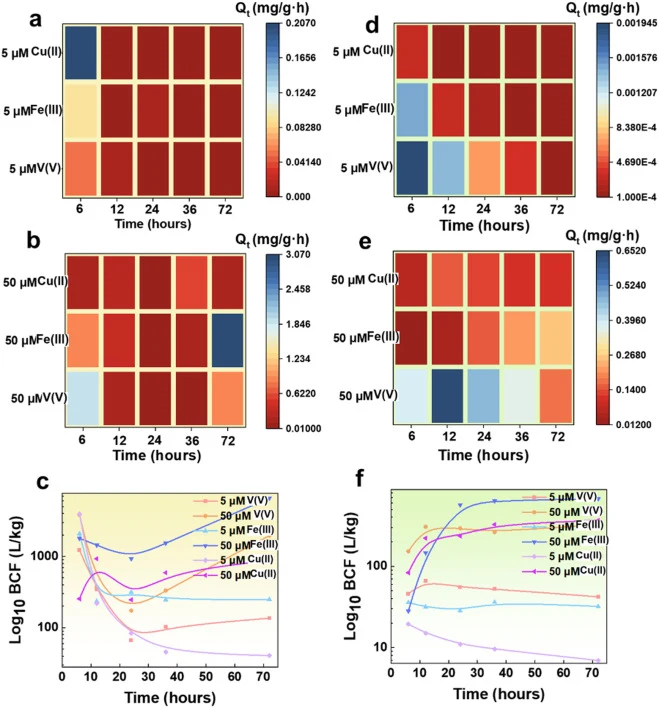
图 4 为热图,显示 B. safensis 在对数生长期不同时间点、含 5 μM(图 4a)与 50 μM(图 4b)V(V)、Fe(III)、Cu(II) 溶液中的金属离子去除效率 Q_t。图 4c 为三种金属离子在不同浓度下富集趋势的生物富集因子(BCF)对数图。结果显示 B. safensis 对 Fe(III) 的富集最为突出:在 50 μM、72 h 条件下,其表观 Fe(III) BCF 达到 6567.89 ± 732.04 L kg⁻¹,约为相应 V(V) 值 1955.42 ± 550.00 L kg⁻¹ 的 3.36 倍。同一终点下,溶解态 Fe 浓度由 2.79225 mg L⁻¹ 降至 2.47981 mg L⁻¹,对应表观去除效率 11.19%。这些结果表明单位生物量上强的铁相关分配,而非极高的总体去除。BCF、吸附等温线、拉曼与 SEM-EDS 结果的一致性支持 B. safensis 优先结合铁,尽管现有数据无法区分细胞表面结合与代谢依赖的摄取或胞内储存。相反,C. marina 在培养期间表现出更持续的钒相关分配响应,其表观 V BCF 在 5 与 50 μM 下均持续增至 72 h。(原文该节选在此处截断。)
【数据】B. safensis Fe(III) BCF(50 μM、72 h):6567.89 ± 732.04 L kg⁻¹;B. safensis V(V) BCF(50 μM、72 h):1955.42 ± 550.00 L kg⁻¹;Fe/V BCF 比值:约 3.36 倍;溶解态 Fe 浓度变化:2.79225 → 2.47981 mg L⁻¹;表观 Fe 去除效率:11.19%;C. marina V BCF:5 与 50 μM 下持续增至 72 h(具体数值原文未详述);去除效率热图浓度:5 μM、50 μM
3.5 拉曼光谱分析
图 5 为 B. safensis 在无金属(图 5a1、b1、c1)及含 5 μM 与 50 μM V(V)、Fe(III)、Cu(II) 溶液中生长 24 h 与 72 h 后,经离心清洗的微生物细胞悬液、以银纳米胶体增强所获得的拉曼光谱。金属处理组相较对照出现明显光谱扰动,且扰动程度随浓度与时间增加,与生长抑制及形态损伤结果相呼应。C. marina 的拉曼光谱结果同样显示金属处理引起的谱峰变化。(原文该节选未给出具体峰位与归属。)
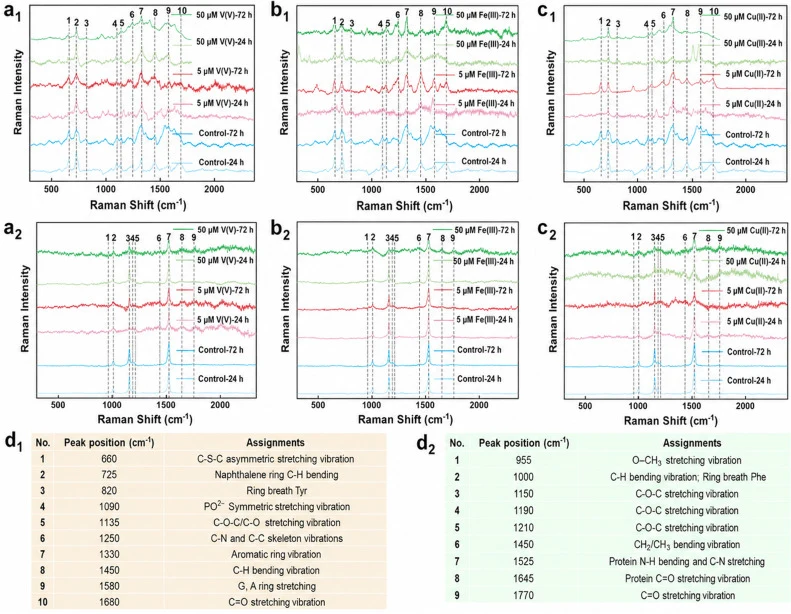
【数据】增强剂:银纳米胶体;时间点:24 h、72 h;浓度:5 μM、50 μM;对照:无金属;具体峰位与强度数值:原文未详述
3.6 吸附等温线
图 6 为 B. safensis 与 C. marina 在 0.5 μM、5 μM、25 μM、50 μM 与 500 μM V(V)、Fe(III)、Cu(II) 溶液中,由平衡吸附浓度 C_e 与平衡吸附量 Q_e 测得的 Langmuir 等温线;图 7 为相应 C_e 与 Q_e 自然对数得到的 Freundlich 等温线。两种模型用于刻画金属离子在微生物表面的分配行为,并支撑 BCF 分析中关于优先富集的判断。(原文该节选未给出拟合参数具体数值。)
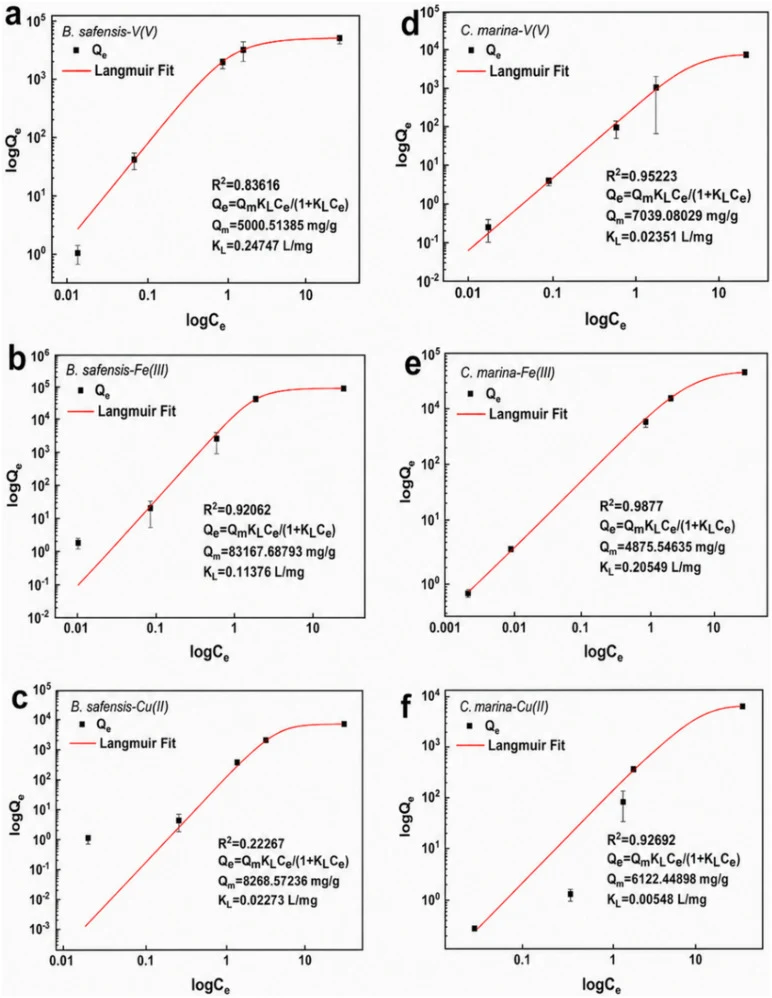
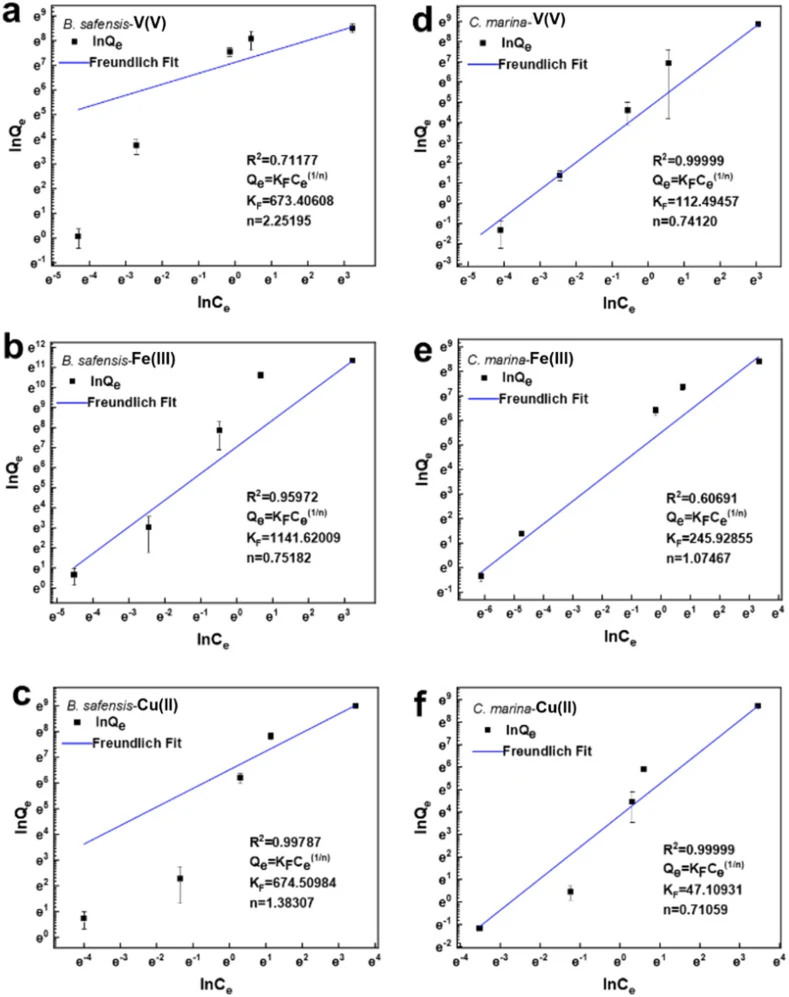
【数据】浓度梯度:0.5、5、25、50、500 μM;模型:Langmuir、Freundlich;拟合参数(Q_max、K_L、K_F、n 等):原文未详述
3.7 相互作用过程示意与 BCF 显著性分析
图 8 为 B. safensis 与 C. marina 细胞与 V(V)、Fe(III)、Cu(II) 相互作用过程的示意图。图 9 显示不同金属离子对 B. safensis 与 C. marina BCF 的影响及两两显著性分析;由于 BCF 数据不满足 Shapiro-Wilk 检验,ANOVA 分析前对 ln BCF 进行了 Box-Cox 变换。
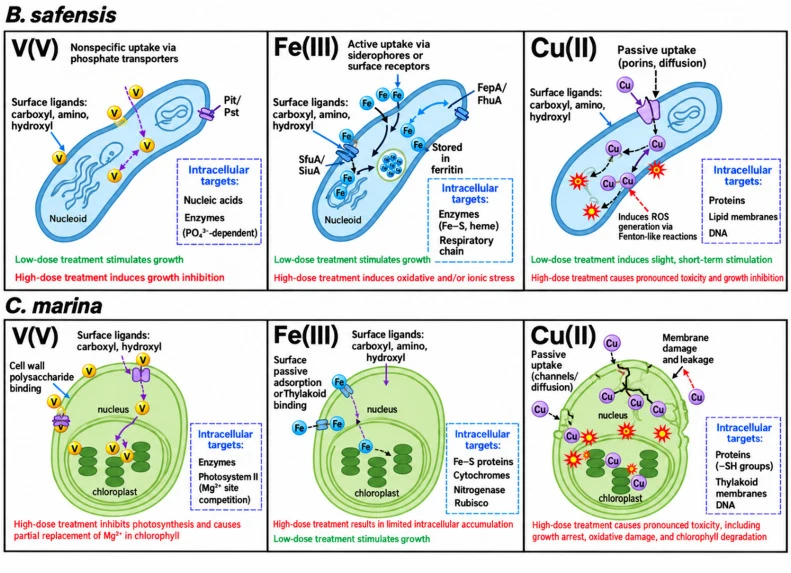
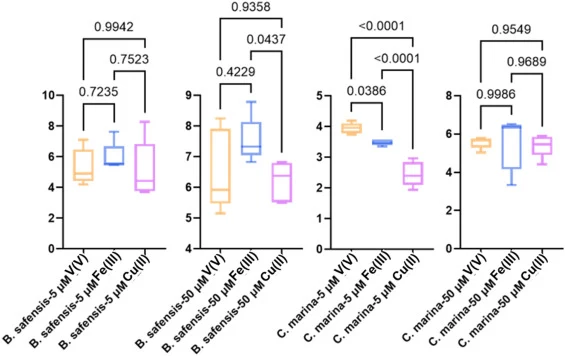
【数据】统计检验:Shapiro-Wilk 检验;数据变换:Box-Cox 变换至 ln BCF;后续分析:ANOVA;显著性水平:原文未详述
讨论与解读
原文结论可归纳为三点。其一,两种微生物对三种金属的响应由微生物类型、金属种类、暴露浓度与培养时间共同决定;相较 5 μM,50 μM 暴露总体引起更强的生长抑制、拉曼光谱扰动与形态损伤,高浓度下毒性排序为 Cu(II) > V(V) > Fe(III),且 B. safensis 耐受性高于 C. marina。其二,B. safensis 表现出最强的单位生物量铁结合:50 μM、72 h 下表观 Fe(III) BCF 达 6567.89 ± 732.04 L kg⁻¹,约为 V(V) 值 1955.42 ± 550.00 L kg⁻¹ 的 3.36 倍,同期溶解态 Fe 由 2.79225 降至 2.47981 mg L⁻¹,表观去除效率 11.19%,说明这是单位生物量上的强分配而非极高总体去除;BCF、吸附等温线、拉曼与 SEM-EDS 结果相互印证,但无法区分表面结合与代谢依赖摄取或胞内储存。其三,C. marina 呈更持久的钒相关分配模式,5 与 50 μM 下表观 V BCF 持续增至 72 h。
编译者解读:该研究把钛合金腐蚀释放离子视为浓度依赖的界面信号,用 BCF 把"污损信号"与"毒性因子"定量分开,思路对防污涂层设计有直接参考——Fe 优先富集提示铁可能是 B. safensis 早期定殖的关键开关,而 Cu 的强细胞毒性则支持含铜钛合金的防污策略。局限在于脉冲暴露不等于真实连续释放,且金属形态未实测,BCF 只能作表观比较。
DOI: 10.1016/j.joes.2026.100776