来源:Electron donor-dependent quorum sensing and interspecies electron transfer drive carbon partitioning pattern and medium-chain carboxylic acids production(Journal of Environmental Sciences)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
中链羧酸(MCCAs)是链延伸(CE)发酵的高值产物,但不同电子供体下微生物互作模式如何决定碳流向,此前并不清楚。该研究用乙醇和乳酸两种电子供体、分别搭配窖泥、河底沉积物与剩余活性污泥三种接种物,运行批式反应器。乙醇组走向多物种正互作、己酸碳转化率最高达49%;乳酸组由巨球菌属(Megasphaera)主导(相对丰度45%–76%),互作呈非合作态,丁酸多于己酸。群体感应信号与种间电子传递通路在乙醇组更完整。研究提示:菌群能否建立协作网络,可能比CE菌丰度本身更关键。
研究背景
全球有机废弃物产生量持续增长,推动可持续资源回收生物技术快速发展。微生物链延伸(CE)是一类有前景的厌氧生物过程,可将短链羧酸(SCCAs,C2–C5)转化为中链羧酸(MCCAs,C6–C12)。MCCAs经济价值更高,工业用途更广——可作抗菌剂、生物燃料前体和工业化学品。其疏水性更强、水溶性更低,便于从发酵液中分离,从而提升经济可行性。由此,CE成为废弃物管理向高值资源生产转型的关键策略。
富集CE菌一直是运行目标,但MCCAs产量不仅取决于单个CE菌的代谢能力,也取决于群落中共存微生物及菌间互作。接种物来源、电子供体(ED)类型及其他反应器运行条件,都可能影响菌群结构与种间互作的形成。已有研究显示,用不同生态环境来源的种子污泥接种的厌氧反应器,会发展出分化的群落结构和产物谱。乙醇与乳酸作为两种常见ED,其驱动下的互作模式差异及其对碳分配的调控机制,尚待厘清。本研究即围绕这一问题,交叉设置三种接种物与两种ED,比较CE性能、EPS组成、QS信号、群落网络与功能基因。
研究方法
2.1 接种物来源与制备
从不同生态环境采集三类接种物:窖泥(P)取自某酒厂发酵窖池;河底沉积物(S)采自重庆长江岸边;剩余活性污泥(W)取自重庆某市政污水处理厂。所有污泥样品先过无菌不锈钢筛(2 mm),再离心(5000 r/min,4 °C,10 min),浓缩后的沉淀重悬后用于接种。选择这三类接种物,旨在考察接种物群落组成对CE性能及微生物互作模式的影响。
【数据】接种物:窖泥P、河底沉积物S、剩余活性污泥W;筛网孔径:2 mm;离心转速:5000 r/min;离心温度:4 °C;离心时间:10 min
2.2 实验设计与运行
批式实验在250 mL血清瓶中进行,工作体积200 mL。三种接种物与两种ED交叉,设六组:乙醇喂养组EP、ES、EW,乳酸喂养组LP、LS、LW。每瓶接种5 g挥发性固体(VS)/L种子,并加入乙酸钠(50 mmol/L)作为电子受体(EA),同时加入对应ED——乙醇组为乙醇(150 mmol/L),乳酸组为乳酸(100 mmol/L)。所供底物使ED:EA摩尔比分别为3:1(乙醇)和2:1(乳酸),两者均对应总ED:EA摩尔碳比3:1(表S1)。营养物与微量元素按Dessì等(2021)补充。每瓶顶空用N₂吹扫后密封,于35 °C、150 r/min避光培养。每组设三个平行。连续运行三个批式周期,每周期依底物消耗情况持续7–14天,总运行时长20–31天。相邻两周期之间,通过离心保留生物量,随后将液相替换为含相应ED和EA的新鲜培养基(初始剂量),营养物与微量元素按初始剂量重新补充;顶空再次用N₂吹扫后重新密封。每个采样点取2 mL混合液。每日监测pH,每24 h用3 mol/L NaOH/HCl调节至乙醇组6.5、乳酸组5.5。pH设定点依据已有报道(Cheng et al., 2022; Dessì et al., 2021; Duber et al., 2018)及预实验确定,预实验对两类ED分别测试了pH 5.5、6.0和6.5条件(图S1)。最终碳分配(η)按式(1)计算:
(1) η = ( C_end / C_total input ) × 100 %
式中,C_end(mmol C/L)为反应周期结束时测得的各羧酸(C2–C8)浓度,C_total input(mmol C/L)为反应周期开始时液相中ED(乙醇或乳酸)与EA(乙酸)的总输入量。η表示最终羧酸碳物质占输入碳底物的比例。图1g和h中的数值由第III周期计算。更多细节见补充材料(表S2)。
【数据】反应器:250 mL血清瓶;工作体积:200 mL;接种量:5 g VS/L;乙酸钠:50 mmol/L;乙醇:150 mmol/L;乳酸:100 mmol/L;ED:EA摩尔比:乙醇3:1、乳酸2:1;总ED:EA摩尔碳比:3:1;温度:35 °C;转速:150 r/min;周期时长:7–14天;总运行:20–31天;采样量:2 mL;pH:乙醇组6.5、乳酸组5.5;pH调节剂:3 mol/L NaOH/HCl;调节频率:每24 h;平行数:3
2.3 QS信号分子与EPS表征
QS信号分子从第III周期末采集的污泥中提取,经固相萃取(SPE)浓缩,按既定方案(Deng et al., 2011)用高效液相色谱-串联质谱(HPLC-MS/MS)定量酰基高丝氨酸内酯(AHL)与扩散信号因子(DSF)。EPS采用热提取法(Li and Yang, 2007)提取;蛋白质(PN)与多糖(PS)含量分别用二喹啉甲酸法和苯酚-硫酸法定量。详细流程见补充材料(Text S1和S2)。
【数据】采样时间:第III周期末;信号提取:固相萃取SPE;检测:HPLC-MS/MS;EPS提取:热提取法;PN定量:二喹啉甲酸法;PS定量:苯酚-硫酸法;原文未详述洗脱溶剂与色谱参数
2.4 分析方法
总固体(TS)与VS按标准方法测定,pH用便携式pH计(PHB-5,雷磁,中国)测定。MCCAs、SCCAs和乙醇用气相色谱(Agilent 7820A,美国)定量,配火焰离子化检测器和FFAP毛细管柱;乳酸用HPLC(Agilent 1260 Infinity,美国)配C18-WP柱定量(Wu et al., 2018)。仪器细节见Text S3。
【数据】仪器:pH计PHB-5(雷磁);气相色谱Agilent 7820A配FID与FFAP柱;HPLC Agilent 1260 Infinity配C18-WP柱;检测对象:TS、VS、pH、MCCAs、SCCAs、乙醇、乳酸
2.5 微生物群落与宏基因组分析
第III周期末,用FastDNA SPIN Kit for Soil(MP Biomedicals,美国)提取污泥沉淀DNA。扩增16S rRNA基因V3–V4区,在Illumina MiSeq PE300上测序;宏基因组测序在Illumina HiSeq(美吉生物,上海,中国)上完成。Reads用FASTP质控,MEGAHIT组装,Prodigal预测基因。扩增子与宏基因组文库的测序数据统计见表S8。功能注释使用KEGG数据库,基因丰度以每百万转录本(TPM)归一化。在属水平计算α多样性指数,并计算各样品Good's coverage以验证测序深度(表S4)。相关网络分析基于相对丰度表在属水平做Spearman相关,保留|r| > 0.6且P < 0.05的显著关联用于建网,经Chiplot可视化。原始序列已提交NCBI,BioProject登录号PRJNA1429580。
【数据】DNA提取试剂盒:FastDNA SPIN Kit for Soil;16S区域:V3–V4;测序平台:Illumina MiSeq PE300、Illumina HiSeq;质控:FASTP;组装:MEGAHIT;基因预测:Prodigal;注释:KEGG;归一化:TPM;网络阈值:|r| > 0.6、P < 0.05;登录号:PRJNA1429580
2.6 统计分析
数据以三个平行反应器的平均值±标准差表示。EP与LP之间宏基因组基因的差异丰度用双尾Fisher精确检验(FDR校正P < 0.05)。β多样性差异用基于Bray–Curtis相异度的双因素PERMANOVA评估,使用R(版本3.3.1)中vegan包(版本2.4.3)的adonis2函数。详细统计流程见补充材料(Text S4)。
【数据】平行数:3;差异检验:双尾Fisher精确检验,FDR校正P < 0.05;β多样性:Bray–Curtis + 双因素PERMANOVA;软件:R 3.3.1、vegan 2.4.3
研究结果
3.1 CE性能
图1a–f给出三个运行周期内底物与产物的浓度曲线,图1g和h为最终有机碳物质分配格局。基于质量浓度的产物指标及达到己酸平台所需时间汇总于表S2。三个乙醇驱动组(图1a–c)中,乙醇在每个周期内4–6天消耗完毕,乙酸消耗与乙醇利用同步。从第I周期到第III周期,乙醇消耗时间在EP(由6天缩短至3–4天)和ES(由7天缩短至3–5天)中逐步缩短,达到最大己酸产量所需时间相应减少,表明群落逐步适应CE环境。丁酸和己酸在三个周期中均为主要产物,第I–III周期之间C4与C6浓度存在差异。与ES(最高112.29 ± 9.14 mmol C/L)相比,EP和EW表现更优,第II周期己酸浓度最高分别达234.89 ± 6.27 mmol C/L和235.68 ± 19.87 mmol C/L。EP在三个周期内均保持较高己酸产量,最终己酸浓度范围为187.99 ± 16.94至234.89 ± 6.27 mmol C/L。ES与EW组第II、III周期己酸产量明显高于第I周期。
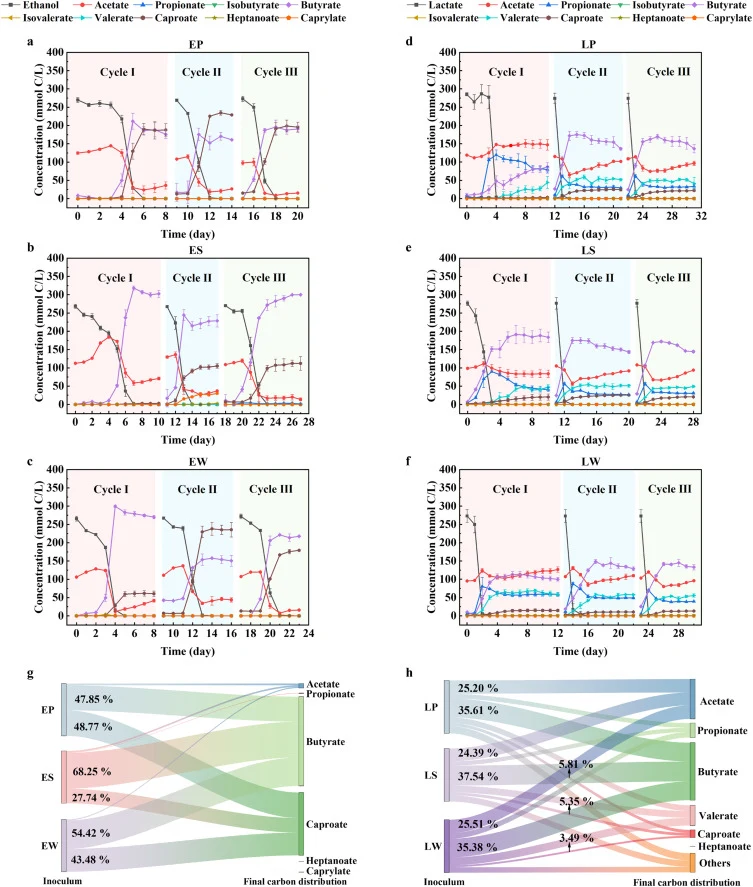
三个乳酸驱动组(图1d–f)产物谱更多样。乳酸在每个周期内2–5天消耗完毕,消耗时间由第I周期5天缩短至第III周期2天,表明群落驯化。乳酸组产物谱周期间变化不大,丁酸始终为主要产物,LP、LS、LW各组己酸浓度均较低。除丁酸(LP最高174.99 ± 8.17 mmol C/L)外,还生成大量丙酸和戊酸,己酸产量有限(LP最高25.32 ± 3.31 mmol C/L)。奇数链羧酸的生成说明相当一部分碳保留在丙烯酸途径,而未进入以己酸为目标的偶数链延伸通道。
碳产物分配百分比(图1g和h)进一步揭示碳流格局的根本差异。乙醇组碳主要流向丁酸和己酸(EP中47.85%流向丁酸、48.77%流向己酸),ES与EW趋势相似,C4与C6合计约占总产物90%。乳酸组碳分散于C3–C6产物,C4占35.38%–37.54%,己酸仅占总碳3.49%–5.81%。需要指出,在pH 5.5、6.0和6.5的预实验条件下,同一ED类型均呈现相似的碳分配格局(图S1),而格局差异存在于ED类型之间。结果支持:两类ED驱动反应器之间碳分配的差异,更可能归因于ED类型而非不同pH值。同一ED类型内,最终产物比例随接种物类型变化。乙醇组中,己酸占丁酸与己酸总和的 proportion(C6/(C4+C6))在窖泥组和剩余活性污泥组分别达0.47和0.41,河底沉积物组较低,为0.26。三个乳酸组中,己酸占丁酸、戊酸与己酸总和的比例(C6/(C4+C5+C6))差异很小,在0.06–0.10之间,其中剩余活性污泥接种组LW的己酸比例最低。总体而言,ED塑造碳分配格局,接种物影响特定ED下的己酸绝对比例。
【数据】乙醇消耗时间:4–6天(EP由6天降至3–4天,ES由7天降至3–5天);乳酸消耗时间:2–5天(由5天降至2天);ES己酸最高:112.29 ± 9.14 mmol C/L;EP己酸最高:234.89 ± 6.27 mmol C/L;EW己酸最高:235.68 ± 19.87 mmol C/L;EP己酸范围:187.99 ± 16.94至234.89 ± 6.27 mmol C/L;LP丁酸最高:174.99 ± 8.17 mmol C/L;LP己酸最高:25.32 ± 3.31 mmol C/L;EP碳分配:丁酸47.85%、己酸48.77%;乙醇组C4+C6占比:约90%;乳酸组C4占比:35.38%–37.54%;乳酸组己酸占比:3.49%–5.81%;C6/(C4+C6):窖泥0.47、污泥0.41、沉积物0.26;C6/(C4+C5+C6):0.06–0.10;预实验pH:5.5、6.0、6.5
3.2 胞外聚合物特征
微生物EPS中PN、PS含量及PN/PS比可反映生态策略与代谢状态(Sheng et al., 2010)。如图2a所示,多数测试组中PS含量超过PN,但PN/PS比差异明显。总体而言,乙醇组与乳酸组中PN/PS比均呈P > S > W的规律。乙醇组中EP的PN/PS比最高(0.92),ES次之(0.78),EW为0.32;乳酸组中LP为1.26,LS与LW较低,分别为0.49和0.16。乙醇组PN含量普遍高于对应乳酸组,提示其更倾向于分泌蛋白型EPS。已有研究报道EPS-PN有助于稳定微生物聚集体形成(Sheng et al., 2010),并可能促进直接互养的代谢互作;EPS中的氧化还原活性蛋白还可增强生物膜电化学活性与细胞间电子传递(Yang et al., 2019)。本研究中EP较高的PN含量与其最高的己酸碳转化率同时出现,可能提示PN的正向作用,后续研究可通过电化学实验等进一步验证。某些组中PS比例较高,可能反映对快速酸化的应激响应——微生物优先分泌多糖以保护细胞膜(Nguyen et al., 2020)。各组EPS-PN一致呈P > S > W排序、PS呈相反趋势P < S < W,进一步说明接种物来源也影响群落生态策略。
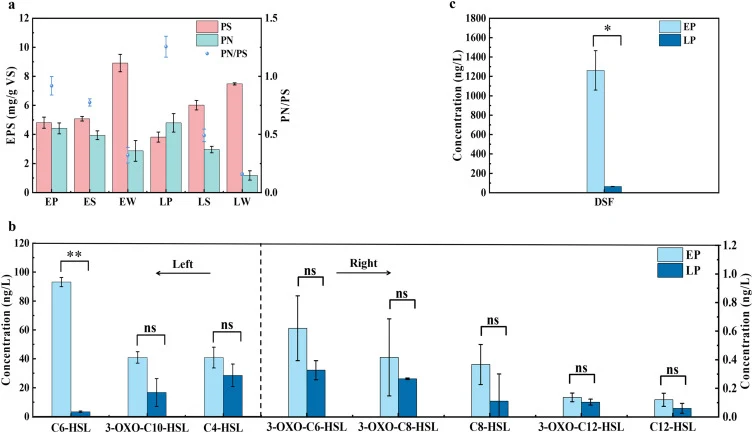
【数据】PN/PS比:EP 0.92、ES 0.78、EW 0.32、LP 1.26、LS 0.49、LW 0.16;排序:PN/PS为P > S > W,PS为P < S < W;误差线:SD(n = 3);显著性:*P < 0.05、**P < 0.01(FDR校正)
3.3 群体感应信号分子
在代表性乙醇组与乳酸组(即EP与LP)中定量DSF与AHL信号(图2b和c)。选择这两个窖泥接种组进行信号定量,是因其在各类接种物组中己酸生成性能相对较高,且可在相同接种物类型下评估ED对信号的影响。DSF(图2c)在EP中浓度显著更高(1261.64 ± 203.26 ng/L),为LP(65.01 ± 1.20 ng/L)的19.4倍。两组中均检出多种AHL,包括C4-HSL、C6-HSL、C8-HSL、C12-HSL及其3-OXO变体。所有检出AHL类型在EP中浓度均相对高于LP。其中C6-HSL在EP中浓度最高(93.12 ± 3.20 ng/L),显著高于LP(3.37 ± 0.51 ng/L)。EP中3-OXO-C10-HSL(40.93 ± 3.93 ng/L)为LP(16.70 ± 9.64 ng/L)的2.5倍。3-OXO-C6-HSL、3-OXO-C8-HSL和C8-HSL在EP中亦相对高于LP(表S3)。已有报道DSF主要调控生物膜成熟与细胞运动性,指向细菌互作(Ryan and Dow, 2011);AHL调控生物膜形成、胞外酶分泌与群体行为(Liu et al., 2022)。相同窖泥接种下,EP中DSF与AHL浓度高于LP,说明乙醇喂养菌群具有更活跃的通讯网络,可能促进菌间代谢协作与微生物聚集体稳定,并有助于EP优越的CE性能。
【数据】DSF:EP 1261.64 ± 203.26 ng/L、LP 65.01 ± 1.20 ng/L,倍数19.4;C6-HSL:EP 93.12 ± 3.20 ng/L、LP 3.37 ± 0.51 ng/L;3-OXO-C10-HSL:EP 40.93 ± 3.93 ng/L、LP 16.70 ± 9.64 ng/L,倍数2.5;检出AHL:C4-HSL、C6-HSL、C8-HSL、C12-HSL及3-OXO变体
3.4 微生物群落组成与微生物相关网络
对原始接种污泥及三周期后的富集群落进行16S rRNA基因扩增子测序(图3)。α多样性(图3a)显示,与原始接种物相比,所有实验组数值均下降……
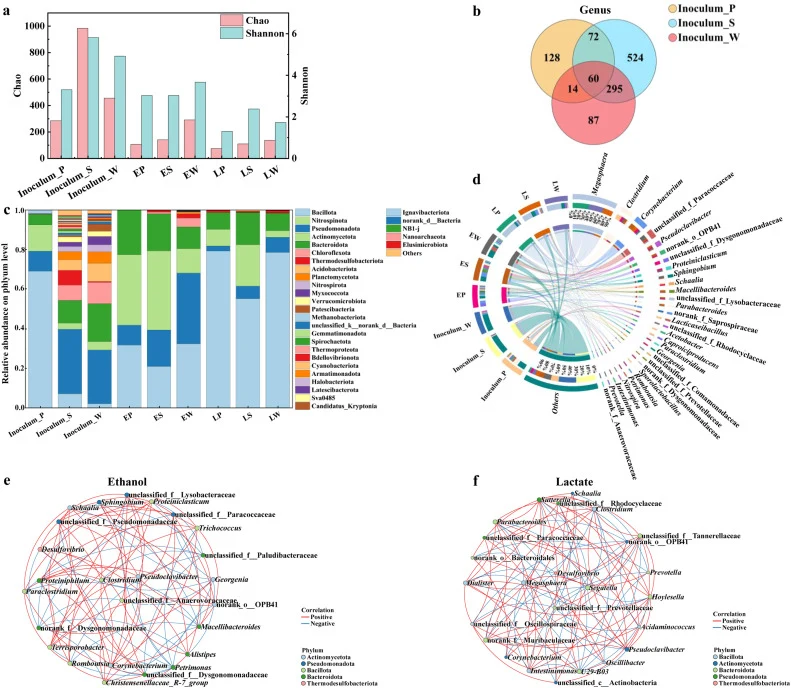
【数据】测序对象:原始接种污泥与第III周期富集群落;α多样性:所有实验组较原始接种物下降(原文此处节选至此,后续数值原文未详述)
讨论与解读
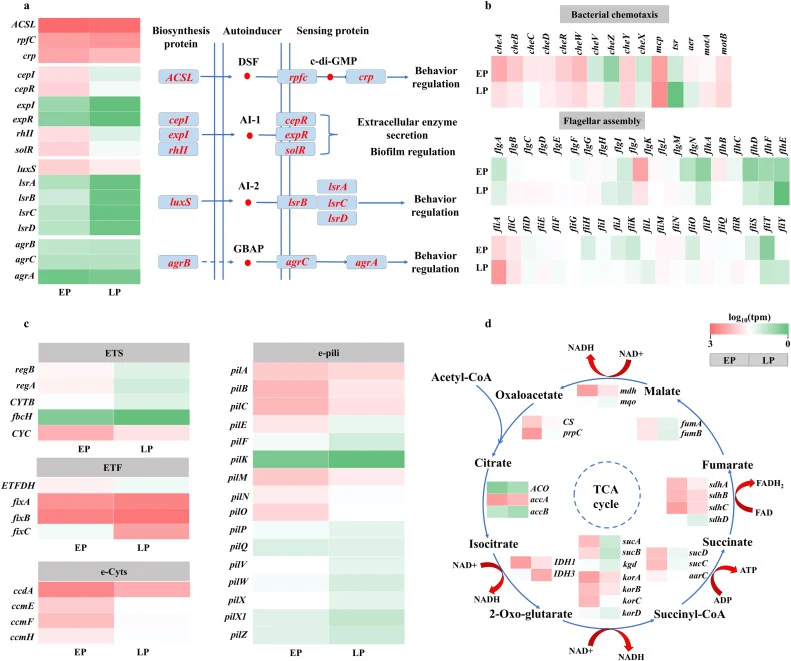
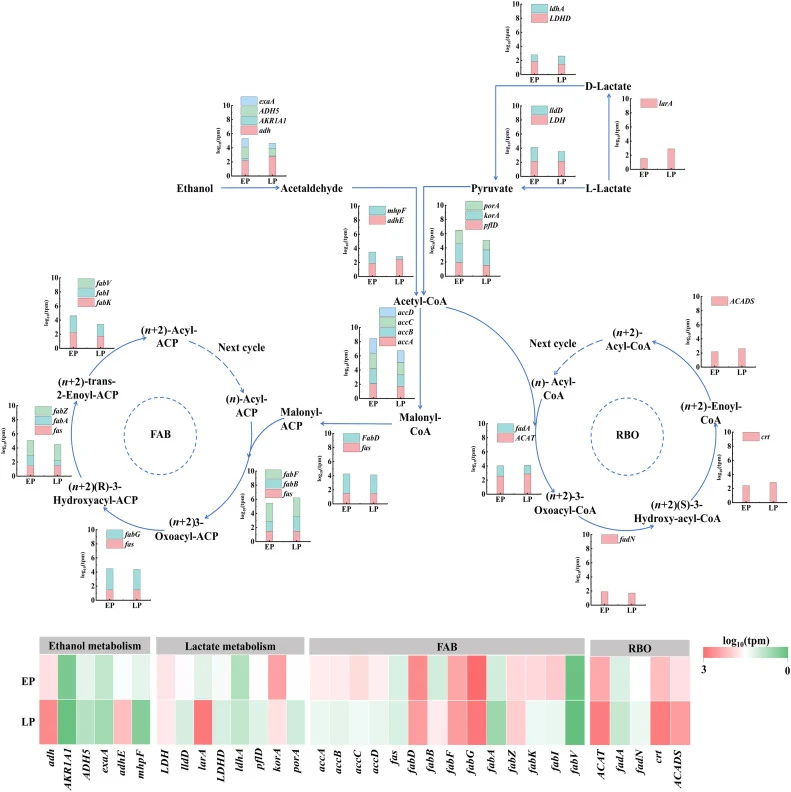
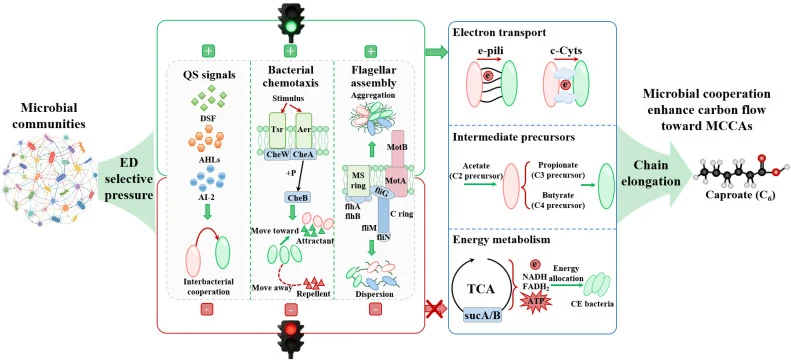
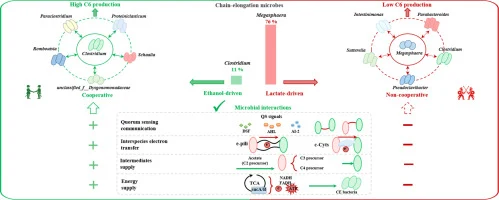
本研究揭示了不同ED驱动的CE过程中微生物互作策略的差异,及其对碳流向与MCCAs产量的影响。乙醇驱动体系通过DSF、AI-1与AI-2/Lsr等多种QS介导的通讯途径,以及细菌运动性与趋化性,建立了多物种协同网络;同时具备由导电菌毛和c型细胞色素介导的电子传递结构,并呈现相对有利的能量代谢。乳酸驱动体系虽拥有较丰富的CE菌和富集的RBO通路基因,但菌间相关性偏负,限制了碳向MCCAs流动。这提示混合培养CE效率的关键瓶颈或许不只在CE菌丰度,更在于群落是否建立了支持代谢协同的网络。未来整合宏转录组或宏蛋白组将有助于进一步阐明机制。CE工艺优化因此不应只筛选高效功能微生物,还可通过群体感应与种间电子传递强化群落互作关系,以促进互养网络形成来引导碳流定向转化。
编译者解读:该研究的价值在于把"菌群互作"从黑箱描述推进到可测量的调控层——QS信号浓度与IET通路基因丰度成为解释碳分配的中间变量,为合成生物学提供了可操作的工程靶点。方法上以三种接种物×两种ED的交叉设计分离了ED与接种物的贡献,逻辑干净。局限也明显:信号定量仅取EP与LP两组,网络分析基于相关性而非因果验证,QS与IET对碳流的调控仍是关联性证据。若要真正用于菌群工程,需通过外源信号添加或产电菌/导电材料干预做因果检验。
参考来源
期刊:Journal of Environmental Sciences, 2026
DOI: 10.1016/j.jes.2026.105836
DOI: 10.1016/j.jes.2026.105836