来源:Molecular cloning and heterologous expression of TeGA3ox, a gibberellin biosynthesis gene from Tagetes erecta L.(Scientia Horticulturae)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
株高是万寿菊重要的农艺性状,而赤霉素3-氧化酶(GA3ox)是赤霉素生物合成途径中的限速酶。本研究从万寿菊中克隆了TeGA3ox基因,全长cDNA为1343 bp,编码371个氨基酸。亚细胞定位显示该蛋白分布于细胞核与细胞质。表达分析表明叶片中表达量最高,且生育后期转录水平上升。将TeGA3ox过表达于烟草后,转基因植株株高增加、叶面积增大、茎木质化提前、出现明显耳状托叶,并伴随活性赤霉素含量升高。解剖学观察证实细胞尺寸变化与表型改变一致。
研究背景
万寿菊(Tagetes erecta L.)是菊科万寿菊属一年生草本植物,原产墨西哥,全球广泛栽培。其花朵色彩鲜艳、花期长,是城市绿化的常用观赏植物;同时万寿菊是叶黄素的主要来源,叶黄素具有视力保护、抗癌、抗心血管疾病及免疫增强等功效。此外,万寿菊在重金属污染土壤修复方面效果显著,是一种兼具观赏、药用与生态价值的多用途园艺作物。
株高是观赏植物的关键性状。万寿菊品种通常按株高分为矮生、中型和高型三类:矮生品种适合景观布置与容器栽培,高型品种主要用于切花生产但易倒伏。目前园艺家和景观设计师更青睐矮生品种。赤霉素(GAs)是株高的核心调控因子,而GA3ox作为赤霉素生物合成的限速酶,其功能在万寿菊中尚不清楚。本研究克隆了TeGA3ox基因,分析了其生物信息学特征、亚细胞定位与表达模式,并通过烟草异源过表达验证其调控株高的功能,为万寿菊株高的赤霉素介导调控提供机制基础。
研究方法
2.1 植物材料
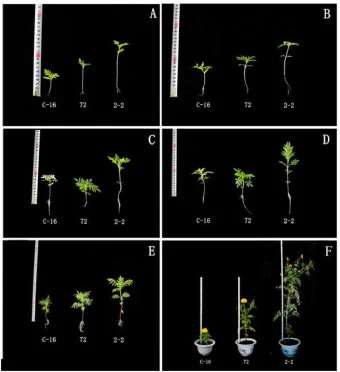
本研究使用三个万寿菊品系('2–2'、'c-16'和'72')。品系'2–2'用于基因克隆,品系'c-16'和'72'用于表达分析。三个品系均已纯化多代。品系'c-16'为紧凑矮生型,平均株高18 cm,花浅黄色。品系'72'为中型株高,平均35 cm,花浅黄色。品系'2–2'为高型,平均株高60 cm,花浅黄色。野生型烟草(Nicotiana tabacum,品种95)用于过表达验证。所有植物材料由青海大学高原花卉研究中心提供(图1)。所有种子于2022年8月18日播种。在二叶一芽期,幼苗按每盆三株的密度移栽至盆中,随后置于光照培养箱(RTOP-268Y,杭州,中国)中,控制条件为:25 °C、相对湿度60%、光照强度160 μmol m⁻² s⁻¹、光周期14 h。在各生长阶段采集根、茎、成熟叶、幼叶和茎尖作为实验样品。所有样品立即在液氮中冷冻,随后于−80 °C保存备用。
【数据】品系:'2–2'(株高60 cm)、'c-16'(株高18 cm)、'72'(株高35 cm);播种日期:2022年8月18日;温度:25 °C;相对湿度:60%;光照强度:160 μmol m⁻² s⁻¹;光周期:14 h;保存温度:−80 °C
2.2 总RNA提取与TeGA3ox基因克隆
使用TaKaRa RNA提取试剂盒(Code No. 9769)从万寿菊品系'2–2'中提取总RNA。RNA质量与浓度通过1%(w/v)琼脂糖凝胶电泳和超微量分光光度计(OSE-260,天根,中国)评估。使用PrimeScript 1st Strand cDNA Synthesis Kit(TaKaRa,中国)经逆转录合成第一链cDNA。根据NCBI数据库中豚草(Ambrosia artemisiifolia)GA3ox基因序列(GenBank登录号MK098054.1)设计同源引物(GA3ox-F/GA3ox-R)。以万寿菊品系'2–2'的cDNA为PCR模板,扩增中间片段,纯化回收。根据获得的中间序列信息,设计3′RACE(GA3ox-3RACE-GSP)和5′RACE(GA3ox-5RACE-GSP)基因特异性引物(表1)。使用SMARTer® RACE 5′/3′Kit(TaKaRa,中国)合成5′和3′末端序列。使用DNAMAN软件进行全长序列组装,随后设计全长引物(GA3ox-QF/QR)以验证GA3ox编码序列的完整性。
【数据】RNA提取试剂盒:TaKaRa Code No. 9769;琼脂糖凝胶浓度:1%(w/v);分光光度计型号:OSE-260;同源序列来源:豚草GenBank MK098054.1;RACE试剂盒:SMARTer® RACE 5′/3′Kit
2.3 生物信息学分析与亚细胞定位
使用NCBI网站BLAST工具(https://blast.ncbi.nlm.nih.gov/Blast.)进行同源序列比对和BLAST检索。使用ORF Finder(https://www.ncbi.nlm.nih.gov/orffinder/)预测开放阅读框(ORF)。使用ProtParam在线工具(http://web.expasy.org/protparam/)分析相对分子质量和理论等电点等理化性质。使用ProtScale(http://web.expasy.org/protscale/)预测蛋白疏水性,使用TMHMM Server V. 2.0(https://services.healthtech.dtu.dk/service.)鉴定跨膜结构域。使用SOPMA(https://npsa-prabi.ibcp.fr/cgi-bin/secpred_sopma.pl)预测二级结构,使用SWISS-MODEL(https://swissmodel.expasy.org/)建模三级结构。使用MEGA7.0软件构建系统发育树,使用DNAMAN进行多序列比对。使用Primer Premier 5设计TeGA3ox亚细胞定位引物(表1)。通过同源重组构建pBWA(V) HS-GA3ox-GLosgfp载体。载体经限制性内切酶Bsa I和Eco31 I酶切,所得构建体通过冻融法(Weigel and Glazebrook, 2006)转化至根癌农杆菌GV3101菌株。转化后的农杆菌在固体培养基上30 °C培养2天。随后从平板上刮取菌落,接种至10 mL YEB液体培养基中,170 rpm孵育1 h。培养液4000 rpm离心4 min,菌体沉淀重悬于含120 μM乙酰丁香酮(AS)的10 mM MgCl₂溶液中,调整OD600至约0.6。所得菌悬液用无针1 mL注射器渗入烟草叶片下表皮。渗入后的植株在弱光条件下维持2天,随后在激光扫描共聚焦显微镜下观察叶片。
【数据】农杆菌菌株:GV3101;培养温度:30 °C;培养时间:2天;液体培养基:YEB;转速:170 rpm;孵育时间:1 h;离心转速:4000 rpm;离心时间:4 min;MgCl₂浓度:10 mM;乙酰丁香酮浓度:120 μM;OD600:约0.6;弱光维持时间:2天
2.4 TeGA3ox表达分析
在二叶一芽、四叶一芽、六叶一芽、八叶一芽、十叶一芽期采集根、茎、幼叶和成熟叶等植物组织用于RNA提取(图1)。每种组织取三个生物学重复。RNA浓度用微量分光光度计测定,逆转录前稀释至统一浓度。根据TeGA3ox序列设计基因特异性荧光引物(Y1)(表1),选择18S rRNA作为内参基因。使用实时荧光定量(qRT-PCR)定量TeGA3ox在不同生长阶段和组织中的表达水平。反应体系含10 μL 2 × SuperReal Color PreMix、Y1-F和Y1-R引物各0.6 μL、1 μL cDNA模板、7.8 μL RNase-Free ddH₂O。qRT-PCR程序为:95 °C预变性5 min,随后40个循环(95 °C变性10 s、60 °C退火20 s、72 °C延伸30 s)。最后循环后,温度从65 °C逐步升至95 °C生成熔解曲线。目标基因相对表达量采用2⁻ΔΔCt法计算(Tang et al., 2021)。统计分析使用SPSS 27.0软件,图表使用Origin 2018生成。
【数据】生物学重复:3个;反应体系:10 μL 2 × SuperReal Color PreMix + 0.6 μL Y1-F + 0.6 μL Y1-R + 1 μL cDNA + 7.8 μL RNase-Free ddH₂O;预变性:95 °C 5 min;循环数:40;变性:95 °C 10 s;退火:60 °C 20 s;延伸:72 °C 30 s;熔解曲线:65–95 °C;内参基因:18S rRNA;分析方法:2⁻ΔΔCt
2.5 过表达载体构建
根据克隆的万寿菊TeGA3ox编码序列(CDS),设计特异性引物M-G3-F2/R2(表1),引物末端引入线性载体重叠序列。从品系'2–2'茎尖提取总RNA并逆转录为cDNA。使用高保真Pfu DNA聚合酶扩增TeGA3ox开放阅读框,PCR产物纯化回收(命名为DNA M1)。sGFP-1300载体经限制性内切酶Kpn I酶切,获得线性化载体(命名为sGFP-1300kpn)。纯化的目标片段DNA M1通过pEASY®-Basic Seamless Cloning and Assembly Kit经同源重组连接至酶切载体(sGFP-1300kpn)。连接反应体系含1.5 μl DNA M1、1.5 μl sGFP-1300-TeGA3ox、3 μl 2 × Basic Assembly Mix。反应于50 °C孵育15 min,随后置于冰上数秒终止反应。重组质粒sGFP-1300-TeGA3ox转化至Trans1-T1感受态细胞,转化体于37 °C过夜培养。使用基因特异性引物(M-G3-F2/R2)(表1)通过PCR鉴定阳性克隆。阳性克隆身份经测序进一步确认,随后提取重组质粒用于下游应用。
【数据】限制性内切酶:Kpn I;连接试剂盒:pEASY®-Basic Seamless Cloning and Assembly Kit;连接体系:1.5 μl DNA M1 + 1.5 μl sGFP-1300-TeGA3ox + 3 μl 2 × Basic Assembly Mix;连接温度:50 °C;连接时间:15 min;感受态细胞:Trans1-T1;培养温度:37 °C;培养时间:过夜
2.6 叶盘法转化烟草
从无菌苗上切取叶盘(0.5 cm × 0.5 cm),在预培养基(MS + 2 mg/L 6-BA + 0.2 mg/L NAA,pH 5.8)上预培养3天。预培养后的叶外植体浸入农杆菌悬浮液(OD600 = 0.6)中轻轻振荡15 min。用无菌滤纸吸去多余菌液后,外植体置于共培养基上,黑暗条件下培养。
【数据】叶盘尺寸:0.5 cm × 0.5 cm;预培养时间:3天;预培养基:MS + 2 mg/L 6-BA + 0.2 mg/L NAA,pH 5.8;农杆菌OD600:0.6;浸染时间:15 min;共培养条件:黑暗
研究结果
3.1 TeGA3ox基因的全长克隆
首先使用同源引物扩增获得477 bp的中间片段。随后进行3′-RACE和5′-RACE,分别获得约500 bp和250 bp的产物。扩增片段经纯化后转化至大肠杆菌。阳性克隆测序显示,3′-RACE产物含长poly(A)尾及试剂盒接头序列,总长493 bp。5′-RACE产物长293 bp,与中间片段序列完全一致(图S1)。
【数据】中间片段长度:477 bp;3′-RACE产物:约500 bp(总长493 bp);5′-RACE产物:约250 bp(实际293 bp)
3.2 TeGA3ox基因的全长验证
使用DNAMAN软件对中间片段、3′-RACE产物和5′-RACE产物序列进行组装。根据组装序列设计一对引物(GA3ox-QF/QR)扩增全长cDNA。PCR产物长度约1400 bp。阳性克隆测序显示TeGA3ox cDNA全长为1343 bp,包含完整CDS。NCBI数据库BLAST检索显示,TeGA3ox序列与向日葵(XM_022133380.2)、豚草(MK098054.1)和菊花(AB371602.1)的GA3ox基因高度相似,一致性分别为86.22%、85.27%和84.39%。这些结果确认扩增产物对应万寿菊TeGA3ox基因。序列已提交GenBank,登录号OQ971365.1(图S2)。
【数据】全长cDNA:1343 bp;PCR产物:约1400 bp;与向日葵一致性:86.22%;与豚草一致性:85.27%;与菊花一致性:84.39%;GenBank登录号:OQ971365.1
3.3 TeGA3ox编码蛋白的生物信息学分析
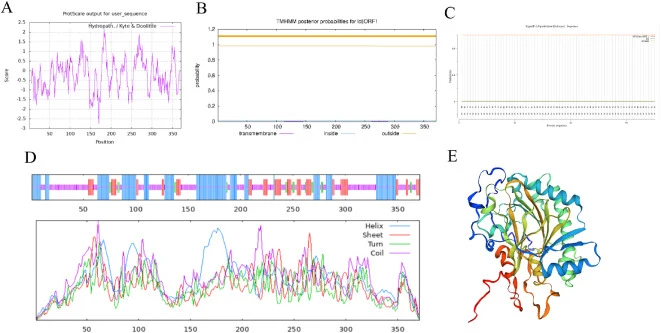
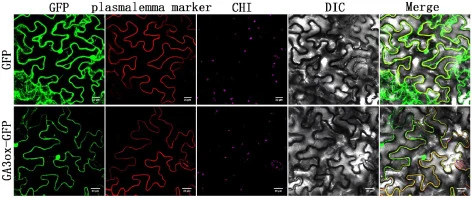
TeGA3ox cDNA全长为1343 bp,含1116 bp开放阅读框(CDS),编码371个氨基酸。推导蛋白预测分子量为40.74 kDa,分子式为C1817H2847N507O527S16。理论等电点为8.49,不稳定指数为43.34,提示该蛋白不稳定。总平均亲水性为−0.231,表明具有疏水性(图2A)。TeGA3ox蛋白中未检测到信号肽或跨膜结构域(图2B、C)。二级结构预测显示,该蛋白由33.69% α-螺旋、4.85% β-转角、45.28%无规卷曲和16.17%延伸链组成(图2D),与预测的三级结构一致(图2E)。使用WOLF PSORT在线工具进行亚细胞定位预测,表明TeGA3ox蛋白分布于叶绿体、细胞核和细胞质中。为实验验证该预测,构建pBWA(V) HS-TeGA3ox-GFP载体并在本氏烟草表皮细胞中瞬时表达。共定位分析显示TeGA3ox-GFP信号与质膜标记未完全重叠,主要检测于细胞核和细胞质中(图3)。
【数据】cDNA全长:1343 bp;CDS:1116 bp;氨基酸数:371;分子量:40.74 kDa;分子式:C1817H2847N507O527S16;理论等电点:8.49;不稳定指数:43.34;总平均亲水性:−0.231;α-螺旋:33.69%;β-转角:4.85%;无规卷曲:45.28%;延伸链:16.17%
3.4 TeGA3ox蛋白的同源性分析
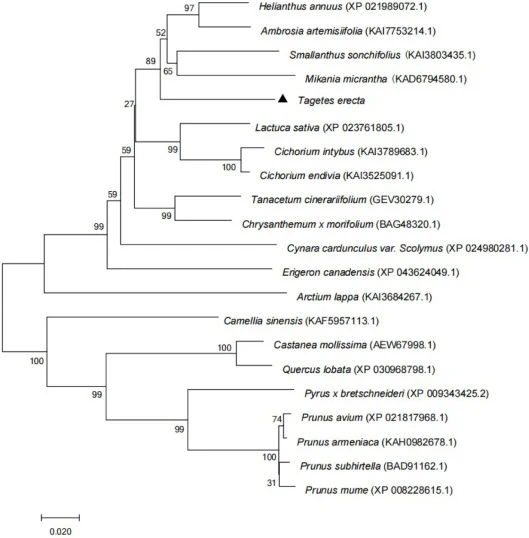
多序列比对显示,TeGA3ox推导氨基酸序列与豚草(KAI7753217.1,一致性89.85%)、向日葵(XP_021989072.1,一致性88.95%)和雪莲果(KAI3775045.1,一致性86.58%)高度相似(图S3)。TeGA3ox蛋白含保守组氨酸(H)和天冬氨酸(D)残基作为Fe²⁺结合域配体,以及参与α-酮戊二酸部分结合的丝氨酸(S)和精氨酸(R)残基。保守结构域分析鉴定出两个典型结构域——2OG-FeII_Oxy和DIOX_N,为GA3ox家族的特征结构域(图S4)。基于氨基酸序列的系统发育分析显示,万寿菊TeGA3ox蛋白与同科向日葵、豚草和微甘菊的GA3ox聚为一支,表明GA3ox在菊科物种间高度保守(图4)。相比之下,其与茶树(KAF5957113.1)、板栗(AEW67998.1)和梅(XP_008228615.1)的GA3ox蛋白关系较远,这与草本与木本植物间的进化分歧一致。
【数据】与豚草一致性:89.85%;与向日葵一致性:88.95%;与雪莲果一致性:86.58%;保守结构域:2OG-FeII_Oxy、DIOX_N
3.5 TeGA3ox基因的表达分析
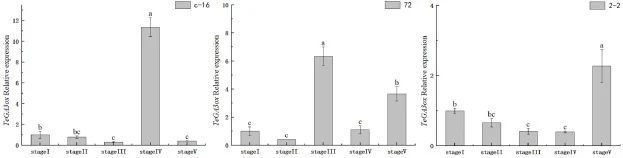
对不同生长阶段万寿菊茎尖中TeGA3ox转录水平进行qRT-PCR分析(图5),揭示三个品系间存在明显的时间表达模式差异。在矮生品系'c-16'中,TeGA3ox在IV期的表达水平显著高于其他时期。在品系'72'中,最高表达水平出现在III期。相比之下,在品系'2–2'中,表达水平从I期至IV期逐渐下降,随后从IV期至V期快速上升,在V期达到最大值。为考察组织特异性表达,在各品系茎尖表达最高时期测定不同组织中TeGA3ox转录水平(图6)。在品系'c-16'中,TeGA3ox在幼叶中表达最高,高于成熟叶和茎,根中最低。在品系'72'中,成熟叶中表达显著高于其他组织。在品系'2–2'中,成熟叶和茎中表达水平显著高于幼叶和根。总体而言,这些结果表明TeGA3ox在三个品系的叶组织中均高表达,提示存在组织特异性表达模式。
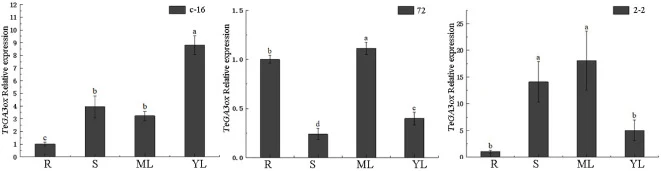
【数据】品系'c-16'最高表达时期:IV期;品系'72'最高表达时期:III期;品系'2–2'最高表达时期:V期;品系'c-16'组织表达:幼叶>成熟叶/茎>根;品系'72'组织表达:成熟叶最高;品系'2–2'组织表达:成熟叶和茎>幼叶和根
3.6 叶盘法烟草遗传转化
共136片烟草无菌叶感染携带重组载体的根癌农杆菌(图7)。感染叶盘成功实现愈伤组织诱导和芽分化。共切取52个不定芽转移至生根培养基。驯化后,49株再生植株移栽至土壤,其中13株确认为转基因阳性。转化效率计算为26.53%(图S7)。
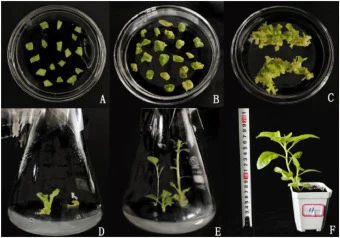
【数据】感染叶片数:136片;不定芽数:52个;移栽再生植株:49株;转基因阳性:13株;转化效率:26.53%
3.7 转基因烟草植株的表型分析
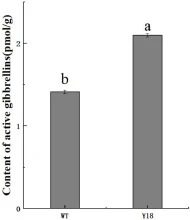
随机选取三株转基因烟草(Y18)与野生型(WT)植株考察表型差异(图8)。Y18株高(54.97 cm)显著高于WT(36.27 cm)。同样,Y18最大叶长(15.77 cm)显著大于WT(11.07 cm)。尽管Y18的茎粗、节间长度和最大叶宽也大于WT,但差异未达统计学显著水平。Y18茎木质化发生显著早于WT,且转基因植株耳状托叶更为明显。此外,qRT-PCR分析显示Y18中TeGA3ox转录水平高于WT(图9)。
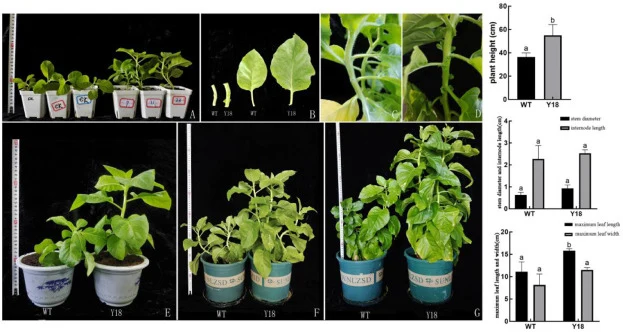
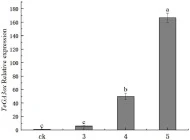
【数据】Y18株高:54.97 cm;WT株高:36.27 cm;Y18最大叶长:15.77 cm;WT最大叶长:11.07 cm;茎粗、节间长度、最大叶宽差异不显著
3.8 转基因烟草植株的解剖结构
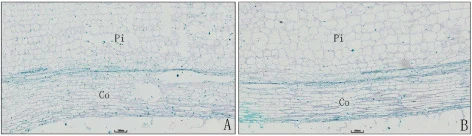
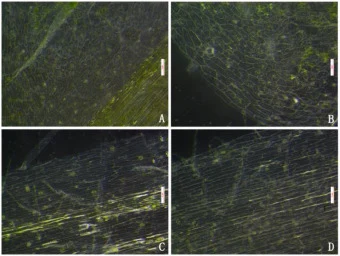
Y18与WT的解剖比较揭示细胞尺寸存在显著差异。Y18皮层细胞长度(157.55±25.05 μm)显著大于WT(111.40±14.37 μm),而皮层细胞宽度无显著差异。同样,Y18髓细胞长度(153.46±18.13 μm)和髓细胞宽度(130.33±10.35 μm)均显著大于WT(图10;表2)。皮层细胞长度和髓细胞尺寸的变化可能与观察到的株高和茎粗增加有关。此外,考察了烟草叶片表皮细胞形态(图11;表3)。WT叶片表皮细胞短圆,而Y18叶片表皮细胞细长。相同放大倍数下,Y18叶片细胞尺寸明显大于WT。具体而言,Y18叶片表皮细胞长度和宽度分别为1.29±0.32 μm和0.40±0.05 μm。叶柄表皮细胞长度或宽度未检测到显著差异。
【数据】Y18皮层细胞长度:157.55±25.05 μm;WT皮层细胞长度:111.40±14.37 μm;Y18髓细胞长度:153.46±18.13 μm;Y18髓细胞宽度:130.33±10.35 μm;Y18叶片表皮细胞长度:1.29±0.32 μm;Y18叶片表皮细胞宽度:0.40±0.05 μm
讨论与解读
本研究采用同源克隆结合RACE技术从万寿菊中克隆了TeGA3ox基因。GA3ox由多基因家族编码,不同成员在物种或组织间可能发生功能分化——水稻中有OsGA3ox1和OsGA3ox2两个基因,拟南芥中有四个基因(AtGA3ox1–AtGA3ox4),茶树、杂交杨等物种中也有同源基因被克隆。亚细胞定位结果显示TeGA3ox分布于细胞核和细胞质,与西瓜GA3ox同源蛋白的定位一致,也符合不同细胞器定位蛋白可能执行不同功能的普遍观察。基因表达模式分析是解析植物生长发育调控机制的基础。本研究考察了不同发育阶段茎尖中TeGA3ox转录水平,三个万寿菊品系的表达峰值时间不一致,但最高表达主要出现在生长后期。据推测,TeGA3ox表达随株高增加而上调,导致茎尖中赤霉素合成增多。
编译者解读:该研究以同源克隆+RACE获取全长基因,经烟草异源过表达完成了从序列到表型的完整验证链,方法选择稳妥、证据链清晰。TeGA3ox过表达同时改变株高、叶面积与茎木质化时间,提示GA3ox在万寿菊中可能兼具产量性状与抗倒伏改良的双重潜力。局限在于异源系统(烟草)与菊科背景差异较大,且未做万寿菊自身稳定转化或基因编辑验证;表达峰值与株高的因果关系仍属推测。后续若在万寿菊中开展CRISPR敲除或组织特异启动子调控,将更直接地检验其育种价值。
参考来源
期刊:Scientia Horticulturae, 2026
DOI: 10.1016/j.scienta.2026.115215
DOI: 10.1016/j.scienta.2026.115215