来源:Heterologous production of structurally distinct levans in an optimized Paenibacillus polymyxa chassis(Carbohydrate Polymers)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
果聚糖(levan)是一种细菌β-果聚糖胞外多糖,在益生元、天然甜味剂和黏合剂领域应用广泛。本研究以非致病性土壤细菌多黏类芽孢杆菌(Paenibacillus polymyxa)为底盘,通过依次敲除paenan合成、胞外蛋白酶、果聚糖降解和泡沫形成相关基因,构建了果聚糖产量提升的底盘菌株。分批发酵中优化菌株产超纯果聚糖30.2 g·L⁻¹(得率0.30 g·g⁻¹),补料分批策略再提升82%。将8种异源果聚糖蔗糖酶整合至基因组后,7种成功产出高纯度果聚糖,滴度1.8–26.3 g·L⁻¹,分子量5.5–30.9 MDa、分支度9–16%,展现出结构多样性。
研究背景
果聚糖是一种由多种细菌产生的同源多糖,最早在甜菜制糖工业的糖蜜胶中被发现,其名称源于对偏振光的左旋特性,与右旋的葡聚糖相对。自然环境中,果聚糖常作为生物被膜的组分,充当保护剂、毒力因子、氧扩散屏障或营养储库。其结构为线性β-(2→6)连接的呋喃果糖骨架,带有β-(2→1)分支,每条链起始端带有一个葡萄糖基残基。果聚糖水溶性强,可形成纳米颗粒,因而特性黏度低。这些性质使其在制药和化妆品领域用途广泛——药物包封、水凝胶、组织工程等。凭借高生物相容性和强黏附性,果聚糖还可作为食品质构剂、甜味剂或益生元。果聚糖的合成由果聚糖蔗糖酶(EC 2.4.1.10)催化,这是一类胞外酶,属于糖苷水解酶家族。该酶利用蔗糖水解释放的能量将果糖聚合,无需昂贵的活化糖供体,这使其在微生物合成体系中颇具吸引力。然而,天然生产者往往同时合成多种胞外多糖、分泌蛋白酶并产生泡沫,给下游纯化和产量提升带来障碍。本研究即以天然产paenan和果聚糖的多黏类芽孢杆菌为对象,通过基因组精简构建专用底盘,并进一步整合异源果聚糖蔗糖酶以拓展产物结构多样性。
研究方法
2.1 菌株
多黏类芽孢杆菌DSM 365购自德国微生物与细胞培养物保藏中心(DSMZ,德国布伦瑞克)。质粒克隆使用大肠杆菌Turbo™(New England Biolabs),与多黏类芽孢杆菌接合转移使用大肠杆菌S17–1(ATCC 47055)。除另有说明外,菌株在LB培养基(10 g·L⁻¹蛋白胨、5 g·L⁻¹酵母提取物、5 g·L⁻¹ NaCl)中培养。必要时培养基补充50 μg·mL⁻¹新霉素和40 μg·mL⁻¹多黏菌素。除另有说明外,大肠杆菌于37 °C培养,多黏类芽孢杆菌于30 °C培养。长期保存时,菌株置于30%(w/v)甘油中于−70 °C保存。本研究使用的全部菌株列于SI表5。果聚糖生产时,多黏类芽孢杆菌菌株在Goldmanns等(2023)的改良MOPPA培养基中培养,含100 g·L⁻¹蔗糖、3.3 g·L⁻¹柠檬酸、3.0 g·L⁻¹磷酸氢二钾、3.21 g·L⁻¹硫酸铵、1.62 g·L⁻¹七水硫酸镁、0.342 g·L⁻¹四水硝酸钙、0.066 g·L⁻¹二水氯化钙、10 mL氨基酸溶液(12.5 g·L⁻¹ L-精氨酸、50.0 g·L⁻¹ L-谷氨酸、15.0 g·L⁻¹ L-组氨酸、20.0 g·L⁻¹ L-甲硫氨酸、67.5 g·L⁻¹ L-脯氨酸)、1 mL维生素溶液(0.06 g·L⁻¹生物素、13.0 g·L⁻¹烟酸)、1 mL氯化铁溶液(7.8 g·L⁻¹四水氯化亚铁、5.0 g·L⁻¹六水氯化铁)和1 mL微量元素溶液(9.0 g·L⁻¹七水硫酸锌、3.4 g·L⁻¹六水氯化钴、4.0 g·L⁻¹五水硫酸铜、3.0 g·L⁻¹四水钼酸铵、25.2 g·L⁻¹四水氯化锰)。蔗糖和氯化钙于110 °C单独灭菌。维生素溶液、氯化铁溶液和微量元素溶液经过滤除菌。
【数据】菌株:P. polymyxa DSM 365、E. coli Turbo、E. coli S17–1;培养基:LB(10 g·L⁻¹蛋白胨、5 g·L⁻¹酵母提取物、5 g·L⁻¹ NaCl)、改良MOPPA(100 g·L⁻¹蔗糖);抗生素:新霉素50 μg·mL⁻¹、多黏菌素40 μg·mL⁻¹;温度:大肠杆菌37 °C、多黏类芽孢杆菌30 °C;保存:30%甘油、−70 °C;灭菌:蔗糖/氯化钙110 °C
2.2 基因组编辑与质粒构建
多黏类芽孢杆菌的基因组编辑采用CRISPR-Cas方法(Rütering等,2017)。基于pCasPP质粒的单质粒系统包含化脓性链球菌Cas9及sgRNA表达盒(Cobb、Wang和Zhao,2015)。在靶基因内、NGG PAM位点上游鉴定20-nt间隔序列。提供靶区域上下游各约1 kb的同源区域作为修复模板。基因整合时,目的基因置于同源侧翼之间。最终构建体的各片段通过Q5 DNA聚合酶(NEB)PCR扩增获得,并经等温组装(Gibson等,2009)拼接。等温组装后,化学感受态大肠杆菌Turbo用组装混合物转化,涂布于含50 μg·mL⁻¹新霉素的LB琼脂。所得菌落用GoTaq聚合酶(Promega)进行菌落PCR筛选,质粒提取使用GeneJET质粒小提试剂盒(Thermo Fisher Scientific)。质粒进一步经DNA测序确认组装正确。随后,大肠杆菌S17–1用该质粒转化。凝胶纯化和基因组DNA(gDNA)提取分别使用Monarch凝胶纯化试剂盒(NEB)和Monarch基因组DNA纯化试剂盒(NEB)。引物合成和测序分析由Microsynth AG(瑞士)完成。引物设计、克隆和序列比对使用SnapGene 6.1版软件。本研究使用的全部质粒、寡核苷酸和间隔序列列于SI表3和表4。所有异源果聚糖蔗糖酶氨基酸序列的多重比对见SI图14,由Clustal Omega(Madeira、Madhusoodanan、Lee等,2024)生成。
【数据】方法:CRISPR-Cas单质粒系统(pCasPP,化脓性链球菌Cas9);间隔序列:20-nt,位于NGG PAM上游;修复模板:靶区上下游各约1 kb;聚合酶:Q5 DNA聚合酶(NEB)、GoTaq(Promega);新霉素:50 μg·mL⁻¹;软件:SnapGene 6.1、Clustal Omega
2.3 接合转移
多黏类芽孢杆菌和携带目标质粒的大肠杆菌S17–1单菌落分别接种于3 mL LB培养基(含或不含50 μg·mL⁻¹新霉素),过夜培养。过夜培养物按1:100稀释于新鲜培养基,于37 °C、250 rpm培养4 h。随后,900 μL多黏类芽孢杆菌培养物于42 °C孵育15 min,与300 μL大肠杆菌S17–1培养物混合。混合液于8000 rpm离心2 min,沉淀重悬于100 μL LB培养基。菌液滴加于LB平板,30 °C过夜培养。之后,刮取平板上的菌体,重悬于150 μL LB培养基。随后涂布于含50 μg·mL⁻¹新霉素和40 μg·mL⁻¹多黏菌素的LB平板,30 °C培养48 h。必要时在涂布前进行梯度稀释,以获得可计数的菌落数。随后,单菌落经菌落PCR筛选目标突变体。菌落PCR所用引物结合于修复模板同源区域外侧。所得片段从凝胶中纯化并送测序,以确认基因组修饰。最后,提取gDNA并经PCR和测序复核菌落PCR结果。
【数据】接种:3 mL LB过夜;稀释:1:100;培养:37 °C、250 rpm、4 h;热激:42 °C、15 min;混合:900 μL P. polymyxa + 300 μL E. coli S17–1;离心:8000 rpm、2 min;重悬:100 μL LB;接合:30 °C过夜;筛选平板:新霉素50 μg·mL⁻¹ + 多黏菌素40 μg·mL⁻¹;培养:30 °C、48 h
2.4 遗传改造菌株的生长比较
生长比较使用Biolector XT微型生物反应器系统(Beckman Coulter,Inc)。菌株新鲜划线于LB琼脂,30 °C培养48 h。各菌株单菌落接种3 mL LB培养基,培养24 h。预培养时,取100 μL 24 h培养物转接至3 mL含100 g·L⁻¹葡萄糖或蔗糖的改良MOPPA最小培养基,30 °C、250 rpm过夜培养。生长实验中,用预培养物将1 mL含100 g·L⁻¹蔗糖或葡萄糖的MOPPA培养基接种至OD 0.1。菌株在配备pH和DO测量光极的BOH2 FlowerPlate微孔板(MTP)中培养48 h。培养条件为30 °C、1200 rpm振荡、30 mL·min⁻¹加压空气通气。湿度控制开启以防止蒸发。
【数据】系统:Biolector XT;预培养:3 mL LB、24 h;转接:100 μL至3 mL MOPPA(100 g·L⁻¹葡萄糖或蔗糖)、30 °C、250 rpm过夜;起始OD:0.1;培养板:BOH2 FlowerPlate(pH/DO光极);温度:30 °C;振荡:1200 rpm;通气:30 mL·min⁻¹;时间:48 h
2.5 生物反应器培养
从新鲜划线的LB平板挑取单菌落,接种至含50 mL MOPPA培养基的250 mL摇瓶。从第一代预培养物接种第二代50 mL预培养物(250 mL摇瓶),使生物反应器接种时处于指数生长期。预培养物于30 °C、250 rpm过夜培养。生物反应器培养在1 L DASGIP生物反应器系统中进行,初始体积600 mL。生物反应器培养使用基础组分浓度降低的改良MOPPA培养基:2.7 g·L⁻¹柠檬酸、2.46 g·L⁻¹磷酸氢二钾、2.63 g·L⁻¹硫酸铵、1.33 g·L⁻¹七水硫酸镁、0.28 g·L⁻¹四水硝酸钙。pH电极用pH 4和7的缓冲液校准。pO2电极在级联起始条件300 rpm、0.3 vvm压缩空气下校准至100%。用预培养物将生物反应器接种至初始OD600为0.1。必要时,通过将搅拌转速从300 rpm提高至600 rpm、随后将通气量从0.3 vvm提高至1.5 vvm,将溶解氧控制在30%。搅拌配置为一个六叶Rushton叶轮和一个斜叶叶轮。pH初始调至6.5,后续用2 M NaOH或7% H3PO4控制。泡沫控制使用Struktol J647(Schill+Seilacher GmbH)。分批培养于30 °C进行44–48 h,补料分批进行92 h。补料分批过程中,通过注射器脉冲补料,直接将适量补料液加入生物反应器。蔗糖消耗通过取样和HPLC追踪。
【数据】反应器:1 L DASGIP,初始体积600 mL;改良MOPPA:柠檬酸2.7 g·L⁻¹、磷酸氢二钾2.46 g·L⁻¹、硫酸铵2.63 g·L⁻¹、七水硫酸镁1.33 g·L⁻¹、四水硝酸钙0.28 g·L⁻¹;起始OD600:0.1;pH:6.5(2 M NaOH/7% H3PO4);DO:30%(300→600 rpm,0.3→1.5 vvm);温度:30 °C;时间:分批44–48 h、补料分批92 h;消泡剂:Struktol J647
研究结果
3.1 遗传改造菌株在mL规模的生长比较
此前一项研究中,paenan基因簇被敲除,获得paenan缺陷型菌株P. polymyxa ∆pep,仅产果聚糖(Meliawati、Teckentrup和Schmid,2022)。本研究中,通过敲除一系列分泌型蛋白酶,进一步优化P. polymyxa以表达异源果聚糖蔗糖酶。此外,敲除了编码表面活性素蛋白Sfp1的基因——据描述该蛋白参与泡沫形成(Coutte等,2010)。最后,为提高果聚糖产量,敲除了编码预测果聚糖降解酶SacC和LevB的基因。为评估累积敲除对果聚糖生产和细菌生长的影响,五种菌株变体在mL规模微型生物反应器系统中培养,使用含100 g·L⁻¹蔗糖或葡萄糖的MOPPA最小培养基(Goldmanns等,2023)(图2)。
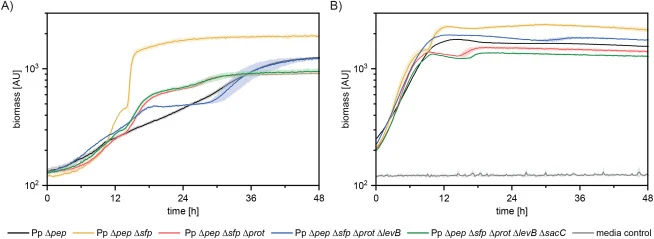
以蔗糖培养时,五种敲除菌株的生物量信号在8至10 h内呈指数增长,生长速率看起来相当。然而,用生物量传感器对纯果聚糖的参比测量显示信号随果聚糖浓度成比例增加,表明合成的果聚糖干扰了生物量测量(SI图1)。为独立于果聚糖生产观察生长行为,改用葡萄糖作为碳源。以葡萄糖培养时,敲除菌株表现出不同的生长行为,指数生长期从15至40 h不等(图2)。参照菌株P. polymyxa ∆pep的最大生长速率(μmax)最低,为0.06 h⁻¹,而附加敲除的菌株生长速率更高,为0.08至0.21 h⁻¹(SI表6)。P. polymyxa ∆pep ∆sfp在葡萄糖和蔗糖上均达到最高生物量。培养过程中培养基溶解氧(DO)下降所指示的耗氧情况,支持了各菌株生长速率的差异。在蔗糖和葡萄糖两种碳源上,P. polymyxa ∆pep ∆sfp的DO消耗最高、最快,其次是P. polymyxa ∆pep ∆sfp ∆proteases和∆pep ∆sfp ∆proteases ∆levB ∆sacC(SI图2)。
除生长外,还测定了游离蔗糖、葡萄糖和果糖浓度,以评估突变株的蔗糖利用情况(图3,SI表7)。产生的果聚糖经水解后通过HPLC以释放的果糖量定量。
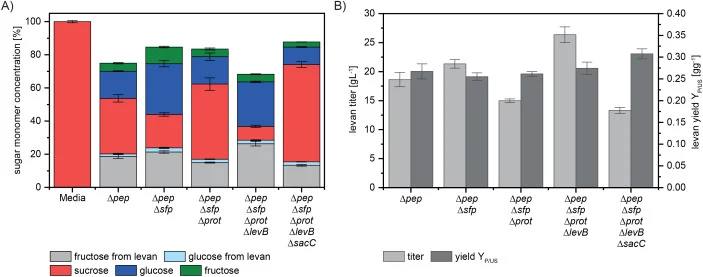
以蔗糖培养时,菌株P. polymyxa ∆pep ∆sfp ∆proteases ∆levB的蔗糖利用率最高,达91.7%,产果聚糖26.36 g·L⁻¹(SI表8)。另一方面,蔗糖利用最少的菌株P. polymyxa ∆pep ∆sfp ∆proteases ∆levB ∆sacC(41.3%)产果聚糖最少,滴度为13.31 g·L⁻¹。蔗糖利用与果聚糖滴度之间的这种正相关反映在各菌株得率一致,分布在0.26至0.31 g·g⁻¹利用蔗糖的窄范围内。此外,五种敲除菌株培养上清中测得高达33.68 g·L⁻¹的葡萄糖和11.11 g·L⁻¹的果糖。与参照菌株P. polymyxa ∆pep相比,P. polymyxa ∆pep ∆sfp利用更多蔗糖,游离葡萄糖和果糖浓度最高,但果聚糖滴度仅居第二,为21.34 g·L⁻¹。
【数据】菌株:P. polymyxa ∆pep、∆pep ∆sfp、∆pep ∆sfp ∆proteases、∆pep ∆sfp ∆proteases ∆levB、∆pep ∆sfp ∆proteases ∆levB ∆sacC;碳源:100 g·L⁻¹蔗糖或葡萄糖;μmax:0.06–0.21 h⁻¹;蔗糖利用率:41.3%–91.7%;果聚糖滴度:13.31–26.36 g·L⁻¹;得率:0.26–0.31 g·g⁻¹;游离葡萄糖:最高33.68 g·L⁻¹;游离果糖:最高11.11 g·L⁻¹;培养时间:48 h
3.2 菌株变体所产果聚糖的表征
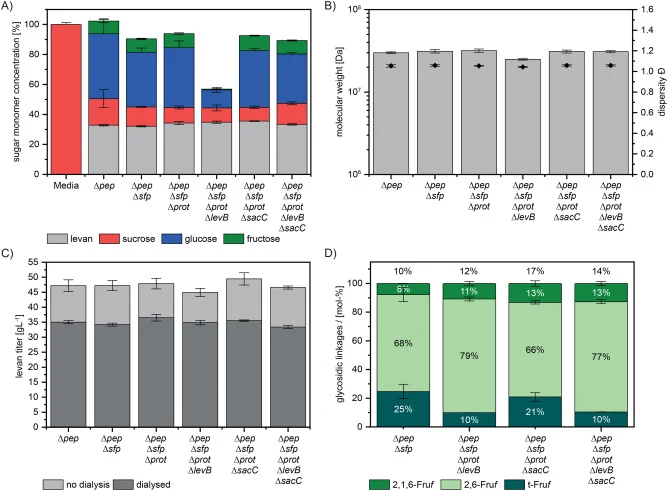
为验证mL规模培养结果并进一步表征所产果聚糖,所有菌株在摇瓶中培养。为独立评估∆sacC和∆levB敲除的效应,纳入了菌株P. polymyxa ∆pep ∆sfp ∆proteases ∆sacC。果聚糖滴度通过异丙醇沉淀聚合物后重量法测定。为去除共沉淀物(如寡糖和单糖、培养基组分或细胞碎片),一半培养上清在沉淀前进行透析。与mL规模微型生物反应器结果相反,六株P. polymyxa菌株产果聚糖滴度相当,约为44.9至49.5 g·L⁻¹,透析后剩余约33.4至36.5 g·L⁻¹(图4C,SI表9)。敲除菌株在摇瓶中利用了约80%的补充蔗糖(图4A)。P. polymyxa ∆pep ∆sfp ∆proteases ∆levB释放到培养基中的葡萄糖显著较少且无果糖,但达到所有菌株变体中最高的生物量(SI表10)。SEC-MALS分析显示,六株菌株所产果聚糖的分子量相似,为3×10⁷ Da,分散度(Ð)为1.05(图4B,SI表11)。所产果聚糖的糖苷键连接模式观察到显著差异(图4D)。值得注意的是,变体∆pep ∆sfp和∆pep ∆sfp ∆proteases ∆sacC含有大量末端果糖残基,而sacC的敲除导致分支度更高。分支连接的增加在P. polymyxa ∆pep ∆sfp ∆proteases ∆sacC ∆levB变体中也可见(图4D)。糖苷键分析结果另经NMR波谱验证(SI图12)。
【数据】培养:摇瓶;果聚糖滴度:44.9–49.5 g·L⁻¹;透析后:33.4–36.5 g·L⁻¹;蔗糖利用:约80%;分子量:3×10⁷ Da;分散度Ð:1.05;方法:异丙醇沉淀重量法、SEC-MALS、NMR;培养时间:48 h
3.3 分批与补料分批培养中的果聚糖生产
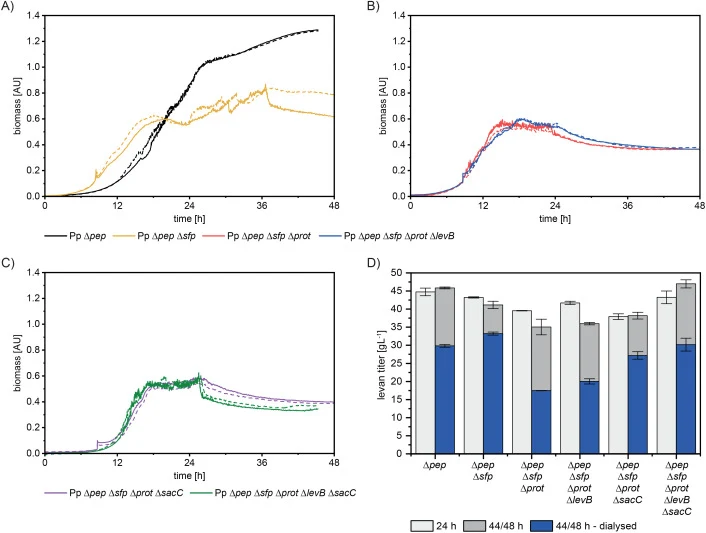
为在受控条件下深入研究果聚糖生产、生长行为和P. polymyxa敲除菌株的活力,工艺放大至1 L生物反应器。分批培养中,P. polymyxa ∆pep生长速率最低,但48 h后生物量信号最高,约1.3。P. polymyxa ∆pep ∆sfp培养37 h后生物量信号居第二,而所有敲除胞外蛋白酶的菌株变体在15至18 h后达到约0.6的最大值,随后生物量信号下降(图5,SI表12)。44/48 h后,菌株变体P. polymyxa ∆pep和P. polymyxa ∆pep ∆sfp的细胞呈杆状,长度约5 μm。含∆proteases敲除的菌株显微观察显示,44/48 h后细胞长2至4倍,且有大量细胞碎片(SI图4)。携带∆proteases敲除的菌株培养24 h后开始的细胞裂解,通过细胞干重(CDW)分析得到证实。P. polymyxa ∆pep ∆sfp在44/48 h后的CDW为3.31 g·L⁻¹,而含∆proteases敲除的菌株变体CDW仅低于1.05 g·L⁻¹(SI表13)。与稳定期生长无关,P. polymyxa ∆pep ∆sfp ∆proteases ∆levB ∆sacC在指数期生长速率最高,为0.50 h⁻¹,其次是P. polymyxa ∆pep ∆sfp ∆proteases和P. polymyxa ∆pep ∆sfp(SI表12)。观察到的生长行为差异与分批培养中O2和碱消耗的差异一致。P. polymyxa ∆pep ∆sfp需氧量最高,尽管搅拌和通气已达最大值,pO2仍有超过12 h低于5%(SI图5)。引入∆proteases敲除缩短了pO2低于5%的时间,而P. polymyxa ∆pep的pO2在较长时间内未低于30%。与P. polymyxa ∆pep相比,所有携带∆sfp敲除的菌株变体维持pH 6.5所需碱液体积约为其两倍(SI图6)。P. polymyxa敲除菌株在44/48 h后产果聚糖35.05至46.99 g·L⁻¹,与24 h测定的果聚糖滴度相比无显著变化(图5D,SI表14)。相应地,六株菌株变体在24 h后几乎利用了全部蔗糖(SI图7)。透析后,各菌株变体获得的高纯度果聚糖最终滴度为33.23 g·L⁻¹至17.49 g·L⁻¹。为最大化最先进菌株的果聚糖滴度……
【数据】反应器:1 L分批;生物量信号:∆pep约1.3(48 h)、∆pep ∆sfp第二(37 h)、∆proteases变体约0.6(15–18 h);细胞长度:约5 μm(∆pep/∆pep ∆sfp)、2–4倍更长(∆proteases);CDW:3.31 g·L⁻¹(∆pep ∆sfp)、<1.05 g·L⁻¹(∆proteases变体);μmax:0.50 h⁻¹(∆pep ∆sfp ∆proteases ∆levB ∆sacC);pO2:<5%超12 h(∆pep ∆sfp);果聚糖滴度:35.05–46.99 g·L⁻¹(44/48 h);透析后:17.49–33.23 g·L⁻¹;蔗糖利用:24 h近完全
3.4 补料分批工艺
在补料分批工艺中,对P. polymyxa ∆pep和P. polymyxa ∆pep ∆sfp ∆proteases ∆levB ∆sacC进行了比较(图6)。培养24 h、44 h和91 h后以及透析后测定果聚糖滴度。补料分批培养进行双重复。
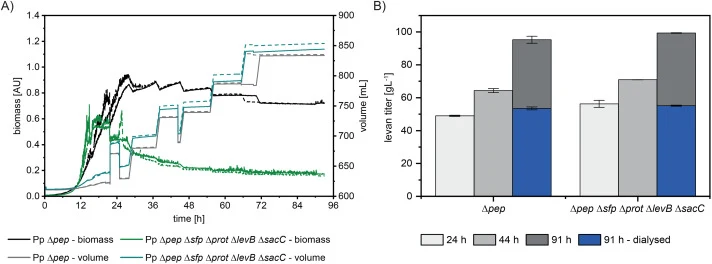
【数据】菌株:P. polymyxa ∆pep、∆pep ∆sfp ∆proteases ∆levB ∆sacC;取样时间点:24 h、44 h、91 h;重复:双重复;工艺:脉冲补料分批
3.5 信号肽对果聚糖生产及结构的影响
为研究信号肽对果聚糖生产和结构的影响,将来自枯草芽孢杆菌纳豆亚种(B. subtilis subsp. natto,BS natto)和Kozakia baliensis LMG 27018(KB LMG 27018)的果聚糖蔗糖酶基因,分别搭配来自P. polymyxa的信号肽(SPP)或来自其自身来源的信号肽,导入P. polymyxa菌株。测定果聚糖滴度(图7)。
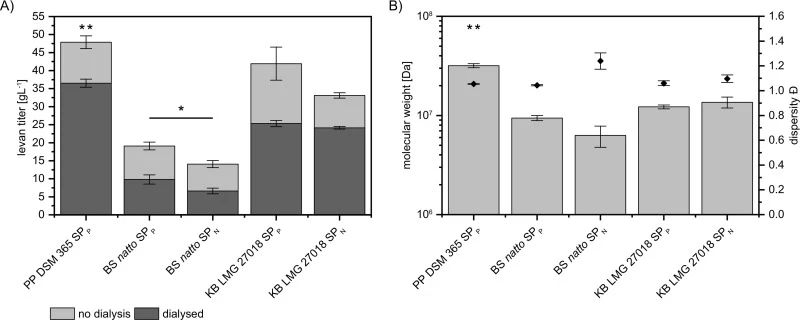
【数据】异源酶来源:B. subtilis subsp. natto、K. baliensis LMG 27018;信号肽:SPP(P. polymyxa)或自身信号肽;指标:果聚糖滴度
3.6 异源果聚糖蔗糖酶在优化底盘中的表达
在优化的P. polymyxa ∆pep ∆sfp ∆proteases菌株中表达异源果聚糖蔗糖酶。培养48 h后测定残余糖浓度和产生的果聚糖(图8)。糖浓度和果聚糖以初始蔗糖浓度的单体当量百分比表示。
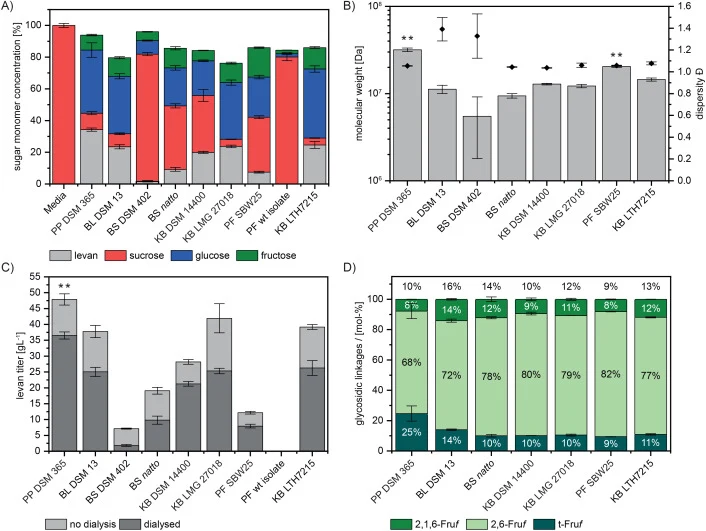
【数据】底盘:P. polymyxa ∆pep ∆sfp ∆proteases;培养时间:48 h;指标:残余糖浓度、果聚糖浓度(初始蔗糖单体当量百分比);异源变体:8种中7种成功;滴度范围:1.8–26.3 g·L⁻¹;分子量:5.5–30.9 MDa;分支度:9–16%
讨论与解读
本研究通过一系列敲除构建了优化的P. polymyxa菌株,作为天然和异源果聚糖生产的平台。敲除效应先在mL规模培养体系中评估,随后放大至1 L生物反应器。对生长行为最显著的影响来自sfp敲除,导致生长明显加速,且在本研究的两个培养实验中均观察到。sfp基因编码4′-磷酸泛酰巯基乙胺基转移酶,激活表面活性素合成的非核糖体肽合成酶(NRPS)。表面活性素生产的代谢负担被描述为相当大,需要大量ATP和NADPH供应(Perino等,2026)。表面活性素是一种环状脂肽,其功能之一是通过使膜去极化增加氧扩散,从而在氧耗尽时维持活力。因此,P. polymyxa ∆pep ∆sfp培养中观察到的溶解氧水平下降,可能归因于细胞在氧耗尽时无法产生表面活性素(Arjes等,2020)。培养基中氧溶解度随之降低,解释了后续搅拌和通气速率的上升。在分批和补料分批培养中,引入额外敲除所得的先进菌株P. polymyxa ∆pep ∆sfp ∆proteases ∆levB……
编译者解读:该研究以基因组精简策略将天然多糖生产者改造为专用底盘,思路清晰——先去除竞争性胞外多糖和蛋白酶负担,再关闭降解途径,最后以异源酶置换产物结构。分批滴度30.2 g·L⁻¹、补料提升82%的数据在同类体系中属中上水平,而7/8异源酶成功表达且分子量、分支度可调,说明该底盘对果聚糖蔗糖酶的兼容性较好。局限在于蛋白酶敲除株在反应器中出现明显裂解、CDW偏低,长期补料工艺的稳健性仍需优化;此外结构-功能关系尚未在应用层面验证。
参考来源
Lanvers P, et al. Heterologous production of structurally distinct levans in an optimized Paenibacillus polymyxa chassis. Carbohydrate Polymers, 2026. DOI: 10.1016/j.carbpol.2026.125921
DOI: 10.1016/j.carbpol.2026.125921