来源:Rational engineering-based scalable production of Morus alba urease in Pichia pastoris optimized biofermenter for industrial silkworm rearing(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
桑叶来源的脲酶是人工饲料养蚕体系中的关键功能蛋白,但天然提取产量低、批次差异大、纯化困难,长期制约其工业化应用。本研究将桑树(Morus alba)脲酶基因(AB479106.1)经密码子优化后导入毕赤酵母,结合FoldX理性设计与Box-Behnken响应面优化,在3 L补料分批生物反应器中实现了重组脲酶的规模化分泌表达。纯化后的合成野生型酶比活达2967 U·mg⁻¹,T₅₀为71.4 °C,对家蚕卵巢细胞及蚕体相关微生物均表现良好生物相容性——为养蚕业提供了一个可放大、宿主适配的植物源脲酶生产平台。
研究背景
养蚕是最具可持续性的农业产业之一,高品质生丝带来的经济与文化价值显著。但人工饲料体系的发展始终受制于一个瓶颈:脲酶来源。桑叶中的脲酶参与氮代谢与营养同化,对维持家蚕生长、代谢健康与产丝量至关重要,然而其大规模获取极为困难。传统植物提取面临回收率低、批次间波动大、纯化技术难度高等问题;先进的提取纯化工艺虽已存在,成本却难以支撑规模化使用。其他植物源脲酶添加入人工饲料后,曾导致蚕体内尿素积累而脲酶活性缺失。刀豆脲酶虽与家蚕血淋巴纯化抗体存在交叉反应(6株单抗中4株识別),却有报道其对昆虫具毒性。与此同时,全球脲酶市场在亚太农业需求与植物源脲酶需求的推动下持续扩张,预计到2033年复合年增长率达6.74%。在此背景下,开发一种发酵罐兼容、功能表现可重复的桑树脲酶,成为养蚕工业亟待解决的课题。
研究方法
2.1 试剂、菌株、质粒与底物
桑树脲酶基因(GenBank登录号AB479106.1)与表达质粒pPIC9r购自上海天霖生物科技有限公司(中国上海)。用于定点突变的引物由SnapGene 6.0.2设计,并由生工生物工程(南京)有限公司合成。DNA测序与His-Tag纯化试剂盒(HyPur Ni-TED 6FF)购自生工生物(中国南京)。DMT感受态细胞(大肠杆菌)购自全式金生物(中国北京)。毕赤酵母GS115购自美国加州Carlsbad。分子生物学试剂,包括Pfu DNA聚合酶、BglII、T4 DNA连接酶、DMT酶及核酸纯化试剂盒,购自Omega Bio-tek(中国上海)与诺唯赞生物(中国南京)。抗His-Tag抗体、Western blot膜及试剂盒购自碧云天(中国上海)。超滤管(10 kDa MWCO)与商品化刀豆脲酶购自Sigma-Aldrich(中国)。TC-100昆虫培养基与FBS分别购自AppliChem(德国)与Thermo Fisher Scientific(美国)。荧光显微镜为OLYMPUS IX3(日本)。其余所有化学试剂均为分析纯,购自上海阿拉丁生化科技有限公司(中国上海)。
【数据】基因:桑树脲酶AB479106.1;质粒:pPIC9r;宿主:毕赤酵母GS115、大肠杆菌DMT;超滤膜截留:10 kDa;培养基:TC-100;原文未详述其余试剂用量
2.2 理性设计指导的工程改造以增强脲酶稳定性
采用FoldX5算法(版本3.0,http://foldx.crg.es/)作为YASARA插件,以全原子描述方法测定脲酶的折叠自由能。野生型桑树(白桑)晶体结构(UniProtKB标识符B9A9C8)用于FoldX5的能量(ΔG)计算评估。应用"Position scan"功能,计算并获得43个残基突变为其他氨基酸时的ΔG值。基于ΔG计算与残基柔性,选定一组热点(表S1)用于全质粒聚合酶链反应(PCR)介导的定点突变。脲酶三维结构及其突变体的同源建模与商业化可视化使用ChimeraX(版本1.11.1)与PyMOL(版本3.1)完成。桑树脲酶基因经密码子优化后,插入pPIC9r质粒中AOX1启动子下游,以适配毕赤酵母表达。
【数据】算法:FoldX5 v3.0;晶体结构:UniProtKB B9A9C8;扫描残基:43个;可视化软件:ChimeraX v1.11.1、PyMOL v3.1;启动子:AOX1;原文未详述温度等参数
2.3 定点突变
定点突变采用全质粒重叠PCR策略,使用突变特异性引物对(表S2)。PCR反应体系包含DNA模板(WT合成脲酶)、正向与反向引物、Pfu Flymix预混液及ddH₂O。PCR程序为:98 °C初始变性1 min;随后30个循环,每个循环98 °C变性10 s、54 °C退火10 s、72 °C延伸2 min 30 s;最后72 °C终延伸5 min。扩增产物在1%琼脂糖凝胶上以100 V电泳45 min分析。上样前,PCR产物于95 °C煮沸2 min,并在4 °C快速冷却30 s。显示正确大小条带的突变构建体(图S1B)用DMT酶处理以去除亲本质粒,随后通过热激转化导入大肠杆菌DMT感受态细胞。阳性转化子用AOX引物进行菌落PCR筛选(图S1C)。在补充氨苄青霉素的Luria-Bertani培养基(LB-Amp)中培养2 h后,阳性菌落质粒经DNA测序进一步验证(图S1D)。
【数据】变性:98 °C 1 min;循环数:30;变性:98 °C 10 s;退火:54 °C 10 s;延伸:72 °C 2 min 30 s;终延伸:72 °C 5 min;电泳:1%琼脂糖、100 V、45 min;煮沸:95 °C 2 min;冷却:4 °C 30 s;培养:LB-Amp、2 h
2.4 毕赤酵母生物反应器优化
重组质粒用BglII线性化,线性化产物经DNA纯化试剂盒纯化。纯化DNA随后转化入毕赤酵母(GS115)感受态细胞——该感受态细胞采用山梨醇法制备,电击转化(模式PIC,2000 V,5 ms)。表达参数采用Box-Behnken设计结合响应面法(RSM)优化,并作轻微修改。使用Design Expert 12软件(Stat-Ease,美国)执行Box-Behnken设计(BBD),考察三个独立变量对脲酶pH稳定性与热稳定性的影响,即:搅拌转速(X₁,rpm)、pH(X₂)与甲醇百分比(X₃,% v/v)。每个因素设三个水平:X₁(200、220、240 rpm)、X₂(5.5、6.5、7.5)、X₃(0.5、0.625、0.75%),编码为−1、0、+1(表S3)。BBD随机选取十七个实验运行。采用响应与编码变量之间的二阶多项式方程建模:
y(C) = A₀ + X₁ + X₂ + X₃ + X₁X₂ + X₁X₃ + X₂X₃ + X₁² + X₂² + X₃²
其中y(C)为预测响应,A₀为常数项,X₁、X₂、X₃分别为搅拌、pH与甲醇%的线性系数。pH稳定性方程:
y_pH = 65.27 + 8.20X₁ + 8.79X₂ + 11.60X₃ + 6.66X₁X₂ + 0.51X₁X₃ + 8.85X₂X₃ + 10.24X₁² + 0.94X₂² + 0.08X₃²
热稳定性方程:
y_TS = 90.90 + 0.64X₁ + 0.00X₂ + 3.50X₃ + 2.29X₁X₂ + 0.14X₁X₃ + 0.00X₂X₃ + 4791.32X₁² + 4737.78X₂² + 0.04X₃²
采用方差分析(ANOVA)评估响应中线性项、交互项与二次项的显著性(表S4)。上述方程进一步用于生成三维响应面图与等高线图——其中一个变量保持均值不变,另两个变量变化,以考察对脲酶稳定性的协同效应。
【数据】电击参数:模式PIC、2000 V、5 ms;变量水平:X₁ 200/220/240 rpm、X₂ 5.5/6.5/7.5、X₃ 0.5/0.625/0.75%;实验运行数:17;软件:Design Expert 12;pH稳定性模型R²与热稳定性模型R²见结果部分
2.5 蛋白表达与纯化
采用最小葡萄糖(MD)平板筛选转化子,并在标准生长培养基上按最优表达条件培养。随后挑选转化子,接种于酵母提取物蛋白胨葡萄糖(YPD)培养基(30 mL,含2%葡萄糖、2%蛋白胨、1%酵母提取物),30 °C、220 rpm振荡培养48 h。之后,取2 mL预培养液接种至200 mL缓冲甘油复合培养基(BMGY),30 °C、220 rpm培养。48 h后,将BMGY培养基(pH 6.5)中的酵母从培养液中移出,转接至200 mL含0.75%甲醇的缓冲甲醇复合培养基(BMMY),30 °C、220 rpm培养。每12 h补加0.75%甲醇以诱导酶分泌。诱导持续48 h,上清液于4 °C、4500 ×g离心10 min;收集含分泌蛋白的澄清上清用于蛋白纯化。溶液经10 kDa截留分子量(MWCO)膜超滤,重复操作直至达到所需浓度,同时将缓冲液置换为结合缓冲液(20 mM磷酸钠、300 mM NaCl,pH 7.4)。浓缩蛋白进一步按厂商说明经Ni-TED亲和层析纯化His-Tag脲酶。上样前Ni-TED树脂用结合缓冲液平衡;上样后,层析柱用含20 mM咪唑的洗涤缓冲液充分洗涤以去除非特异性结合蛋白。重组脲酶用含250 mM咪唑的洗脱缓冲液洗脱。洗脱组分经十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分析,浓缩胶8%、分离胶10%,合并含目标蛋白的组分。蛋白浓度采用Bradford法测定,以牛血清白蛋白(BSA)为标准品。合并蛋白经超滤缓冲液置换重新浓缩,用于下游应用。
【数据】YPD:30 mL、2%葡萄糖、2%蛋白胨、1%酵母提取物、30 °C、220 rpm、48 h;BMGY:200 mL、pH 6.5、30 °C、220 rpm、48 h;BMMY:200 mL、0.75%甲醇、30 °C、220 rpm、诱导48 h;补料:每12 h补0.75%甲醇;离心:4500 ×g、10 min、4 °C;超滤:10 kDa MWCO;结合缓冲液:20 mM磷酸钠、300 mM NaCl、pH 7.4;洗涤:20 mM咪唑;洗脱:250 mM咪唑;SDS-PAGE:8%浓缩胶、10%分离胶
2.6 纯化脲酶的生化表征
脲酶活性通过苯酚-次氯酸盐比色法测定尿素水解释放的氨进行定量。标准反应体系(1.0 mL)……(原文节选至此,后续步骤未详述)
【数据】方法:苯酚-次氯酸盐比色法;反应体系:1.0 mL;原文未详述其余参数
研究结果
3.1 面向毕赤酵母生物反应器的桑树基因构建
桑树(白桑)脲酶基因(GenBank登录号AB479106.1;2546 bp)经密码子优化,以改善其在毕赤酵母中异源表达的翻译适配性。图S1A展示了优化基因的完整性——正确的开放阅读框、序列长度,以及无移码地正确插入pPIC9r表达载体(经测序验证),所得重组质粒总大小为11,841 bp。pPIC9r-合成脲酶构建体用引物ureA-F与ureA-R(表S2)扩增,并成功转化入大肠杆菌(DMT),用于后续定点突变与表达实验。该表达质粒的有效构建与测试产生了可行的合成型桑树脲酶,进一步用于毕赤酵母生物反应器中的脲酶生产。
【数据】基因长度:2546 bp;质粒总大小:11,841 bp;载体:pPIC9r;宿主:大肠杆菌DMT;原文未详述温度时间
3.2 重组脲酶的分子动力学(MD)模拟分析
基于FoldX预测的ΔG值,预测了43个单点突变位点(表S1)。使用表S2所列引物对所有预测位点进行定点突变。筛选阳性克隆,43个突变体中仅8个突变体(C113N、S121L、N206V、N206E、T297I、A304T、L364I与R782V)在琼脂糖凝胶上产生强条带(图S1B),随后转化入大肠杆菌DMT细胞进行序列验证。其中,4个突变体(C113N、N206E、A304T与R782V)成功转化入DMT(图S1C),序列验证后,3个突变体(N206E、A304T与R782V)被选入后续实验(图S1D)。这表明低转化率是多因素造成的。GC富集区的突变可能降低PCR扩增与克隆效率,导致35个计算机预测突变位点被排除在PCR之外。某些点突变导入大肠杆菌后造成代谢负担,导致宿主表达系统不稳定,仅获得4个成功转化子。这一有限的转化子数量说明脲酶具有严格的催化与结构要求。图1A展示了理性设计指导的蛋白工程——通过氨基酸替换获得成功转化子:A304T(Ala→Thr)、N206E(Asn→Glu)与R782V(Arg→Val)。图1B将这三个FoldX预测热点映射到野生型酶上,显示多数能量有利的突变位点位于活性位点远端,从而可在不损害催化功能的前提下进行稳定性工程。
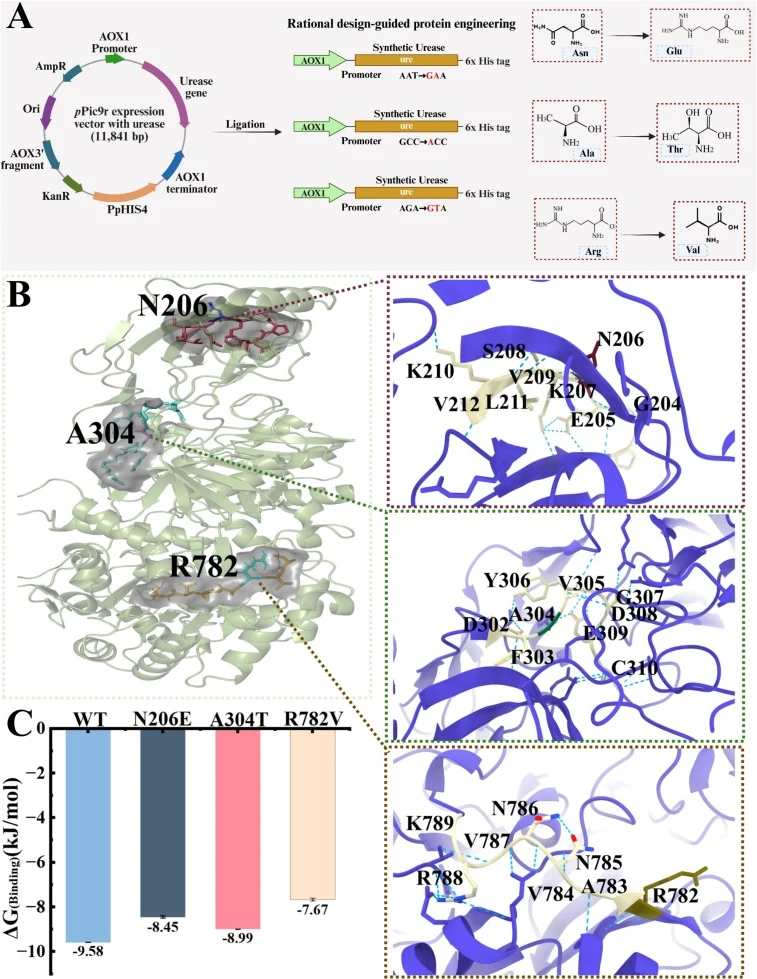
热力学与结合自由能(ΔG(Binding),kJ/mol)分析在318 K下(图1C)证实,三个突变体均保留了底物结合亲和力,其中A304T表现出最有利的结合自由能−8.99 kJ/mol(p < 0.01),最接近WT(−9.58 kJ/mol)。FoldX分析结果显示,A304T与N206E突变酶分别具有轻度至强烈的结构稳定化作用,而318 K下的结合能计算显示突变体底物亲和力较WT略有下降。这些发现表明,整体结构稳定性并不必然对应更高的底物结合与催化活性,因此需要实验验证。通过比较野生型与突变酶的局部结构,分析了替换的稳定化效应(图S2)。N206E突变引入额外静电相互作用,可能降低局部柔性;A304T替换形成新氢键,略微增强局部堆积与结构刚性;R782V则通过以疏水残基替换带电残基,缓解了C端区域的位阻与静电张力。替换残基结合模式的差异可归因于其理化性质,而未损害生化特性。N206E引入一个负电侧链,可增强局部静电相互作用;A304T提供氢键潜力而不显著破坏局部结构;R782V将体积较大的带电精氨酸变为较小的疏水残基,可能缓解位阻与静电张力。这些变化不在催化区域,不太可能直接影响催化机制。这与WT及各突变体的Kₘ和k_cat值一致——突变更可能影响局部底物容纳或可及性,而非催化周转。总体而言,数据表明非催化区域的FoldX指导突变未显著影响催化周转(k_cat),但局部侧链相互作用可影响底物容纳程度与表观亲和力(Kₘ)。
【数据】预测突变位点:43个;凝胶强条带突变体:8个;成功转化:4个;入选实验:3个(N206E、A304T、R782V);A304T结合自由能:−8.99 kJ/mol(p < 0.01);WT结合自由能:−9.58 kJ/mol;分析温度:318 K;排除位点:35个
3.3 毕赤酵母生物反应器优化
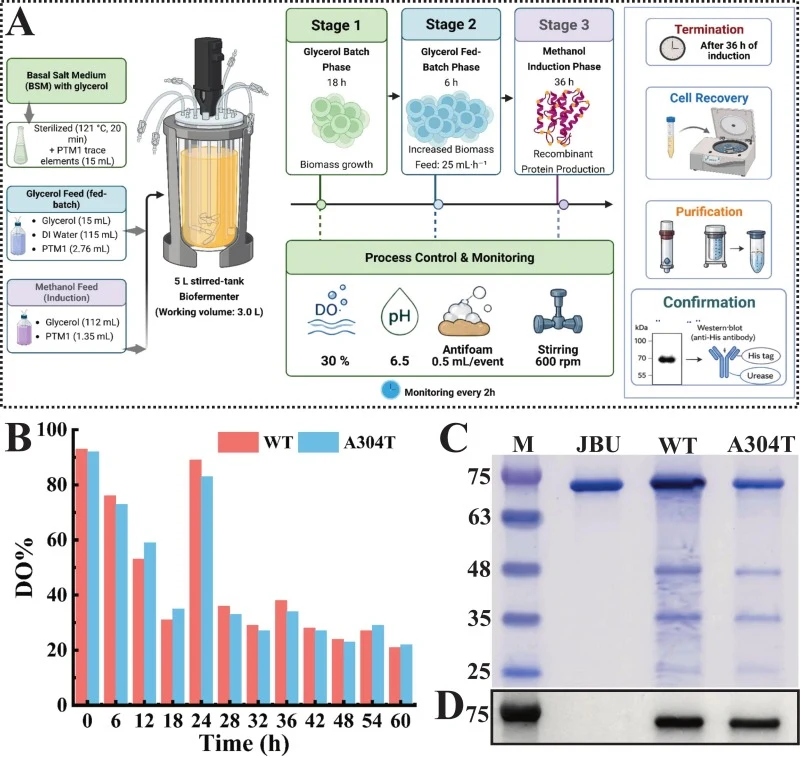
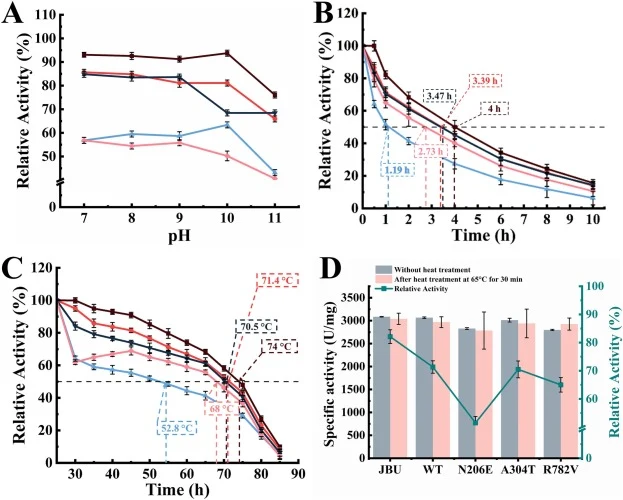
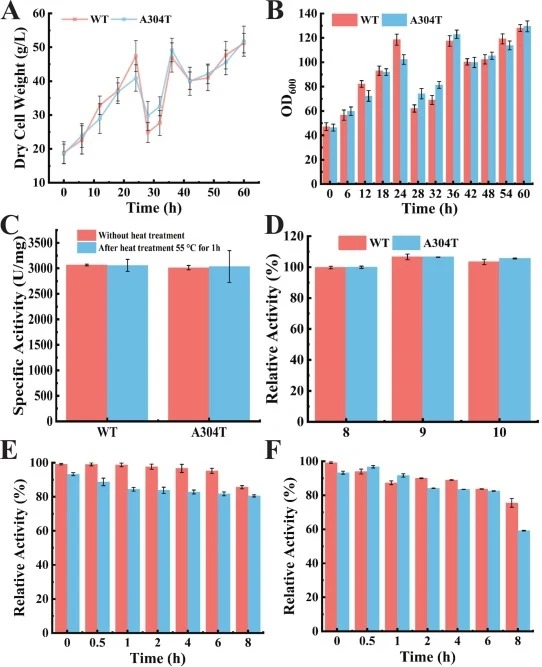
图S3展示了基于Box-Behnken设计(BBD)实验的三维响应面与等高线图,说明搅拌(X₁)、培养基pH(X₂)与甲醇浓度(X₃)的交互效应。这些图直观证实了各因素如何影响合成脲酶的pH与热稳定性。BBD分析确定的最优条件为220 rpm搅拌、pH 6.5、0.75%(v/v)甲醇(图S3)。虽然可用多种测定评估酶活与动力学,我们优先关注重组酶的pH与热稳定性——这与主要目标一致,即聚焦生理相关条件下植物源、宿主特异性的合成酶。详细结果汇总于表S4。ANOVA分析表明,pH稳定性与热稳定性的回归模型均具统计学显著性(p < 0.05),且决定系数高(pH稳定性R² = 0.8896,热稳定性R² = 0.9993),证实二次模型适用于预测酶性能(表S5)。失拟检验不显著(p > 0.05),变异系数低,预测值超过均值预测偏差相对于足够精度指标(>4),进一步验证了实验设计与模型的可靠性。这些结果表明搅拌、pH与甲醇浓度强烈影响酶稳定性。表S6展示了所有BBD组合的活性测定,表明毕赤酵母生长条件强烈影响脲酶表达与活性。相对活性变化达1至3.43倍,说明实验条件对催化活性与酶稳健性的影响。酶在pH 7–11范围内保持活性,证实碱性pH下的功能稳定性。热稳定性在45 °C以上逐渐下降,85 °C时保留20%活性,提示高温诱导的活性位点破坏。不同培养基条件下的这些变化表明,这些参数直接影响毕赤酵母表达系统中的细胞密度、氧传递、分泌动力学与蛋白折叠效率,从而影响酶活性。这一系统优化代表了宿主系统的设计—构建—测试—学习指导的改进,以增强酶功能。220 rpm搅拌、pH 6.5、0.75%(v/v)的培养基条件表现出最佳结果:相对活性提高1.38倍,25 °C下热稳定性94.7%,45 °C下65.7%,最高比活986 U·mg⁻¹。总体而言,这些发现表明,将析因分析与中心点验证相结合,确定了后续酶表达的最佳发酵参数。为此验证,采用补料分批发酵策略在3 L生物反应器中进行规模化生产……
【数据】最优条件:220 rpm、pH 6.5、0.75%甲醇;pH稳定性模型R²=0.8896;热稳定性模型R²=0.9993;失拟检验p>0.05;相对活性变化:1–3.43倍;活性pH范围:7–11;85 °C残留活性:20%;相对活性提升:1.38倍;热稳定性:25 °C 94.7%、45 °C 65.7%;最高比活:986 U·mg⁻¹;反应器体积:3 L
讨论与解读
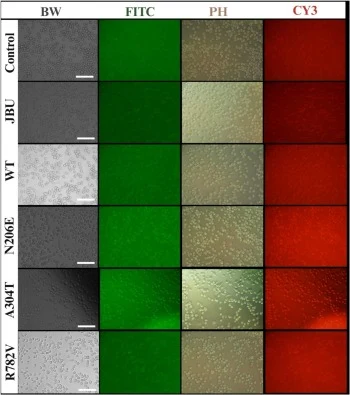
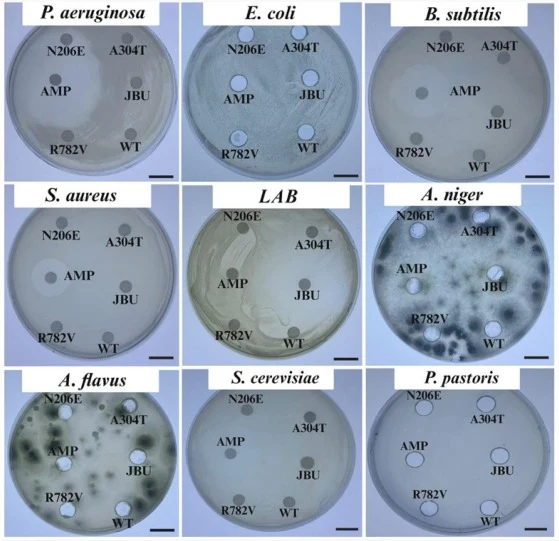
本研究首次报道了桑树脲酶的理性设计、工程改造及其在优化毕赤酵母生物发酵系统中的成功异源表达。工程变体N206E、A304T与R782V表现出稳定、具催化活性且生物学安全的特性。优化发酵条件(pH 6.5、220 rpm、0.75%甲醇)实现了高效分泌与高酶产率,重组WT脲酶比活2967 U·mg⁻¹、Kₘ 1.60 mM、k_cat 10,142 s⁻¹、T₅₀ 71.4 °C、最适pH 9.0。结构与热力学分析表明,非催化区域突变增强了稳定性,但未改善底物亲和力。生物安全评估显示对BmN细胞无毒性,对蚕体相关微生物无不良影响。放大至3 L生物反应器进一步提高了蛋白产量、生产力与热稳定性,展现出良好的工艺重复性与工业潜力。研究为安全、可放大、宿主特异性的合成桑树脲酶平台提供了初步基础,在可持续养蚕与生物技术领域具有应用前景。不过,仍需通过家蚕饲喂试验进行直接验证;未来研究应评估对家蚕生长、产丝与肠道微生物互作的长期影响,同时测试更广泛的突变体并优化补料分批发酵。
编译者解读:该研究的可取之处在于把"酶稳定性工程"与"发酵工艺优化"两条线并置推进——FoldX先筛远端热点避开活性位点,再用BBD锁定培养参数,逻辑闭环清晰。但需注意,理性设计阶段43个预测位点最终仅3个进入实验,转化效率瓶颈暴露了脲酶结构容忍度之低;且所有变体的底物亲和力均未超越WT,说明"稳定"与"活性"在该酶上存在取舍。真正决定其养蚕业价值的,仍是尚未开展的家蚕饲喂试验。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI: 10.1016/j.ijbiomac.2026.155024
DOI: 10.1016/j.ijbiomac.2026.155024