来源:An Integrated Strategy to Reprogram NRPS Initiation Modules for Long-Chain Surfactin Biosynthesis(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
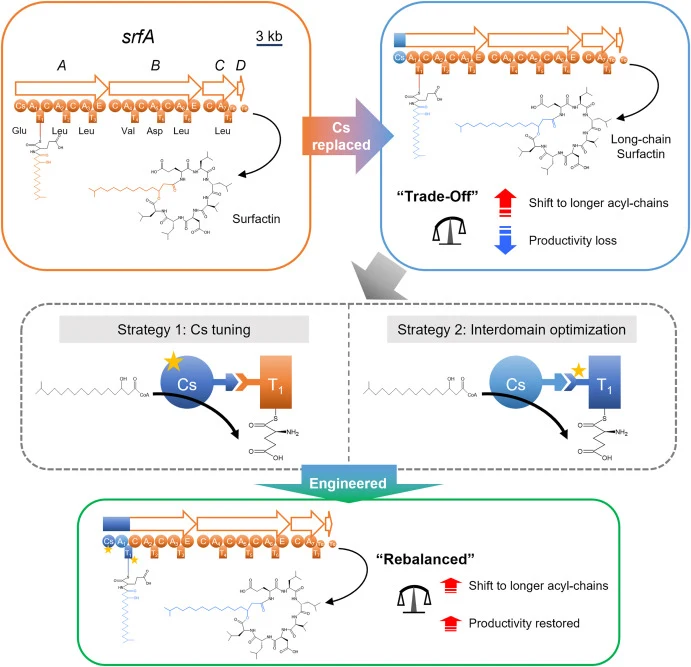
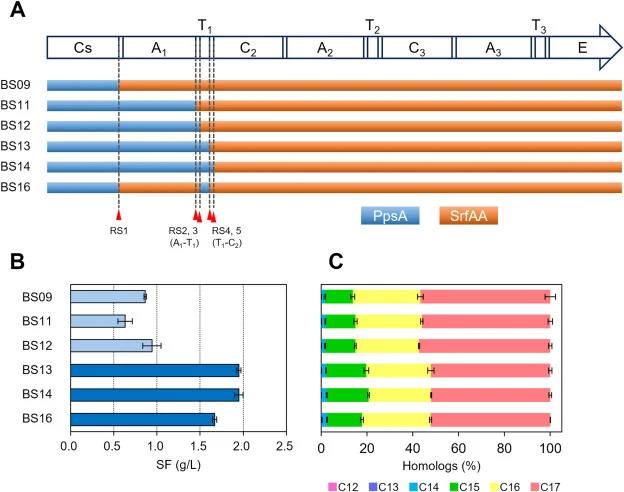
非核糖体肽合成酶(NRPS)的模块化工程常因结构域重组后产量骤降而受阻,起始模块中的结构域兼容性问题尤为突出。本研究以表面活性素(SF)合成酶为对象,用来自长链脂肽合成酶的起始缩合(Cs)结构域替换天然Cs结构域,成功将酰基链偏好转向C16–C17长链同系物,但产量大幅下降。通过Cs结构域定点突变、结构域界面工程与载体(T1)结构域精细调控的组合优化,研究者在基本不改变酰基链特异性的前提下恢复了产量,揭示了催化效率与底物选择可以独立优化的规律。
研究背景
NRPS是模块化装配线酶,负责合成结构多样的生物活性天然产物,其中环状脂肽因两亲性结构在材料科学、环境技术和生物医学领域具有广泛应用潜力。其模块化生物合成逻辑为定制分子提供了理想平台,但天然生物合成系统可及的结构多样性仍然有限,制约了功能的系统化调控。NRPS工程虽已取得重要进展,但通路重编程成功后生物合成产量丧失仍是核心挑战之一。
在非核糖体脂肽生物合成中,N端脂肪酸酰基链决定疏水性、自组装行为和生物活性等分子性质。该部分通常由起始缩合(Cs)结构域在NRPS装配的起始步骤引入,催化脂肪酸酰基底物与第一个氨酰载体蛋白结合残基的偶联。在SF系统中,CoA活化的脂肪酸可作为底物。尽管通过替换Cs结构域常可重编程底物选择性,但此类修饰通常伴随产量严重下降,构成NRPS工程的重大瓶颈。起始模块中结构域间兼容性对产量的作用此前研究不足,本研究即针对这一空白展开。
研究方法
本研究的方法学细节按原文安排如下。原文第2节"材料与方法"全文为:菌株构建、分子生物学操作、培养条件、分析方法、蛋白质结构预测以及LC-MS/MS分析均按支持信息中所述进行。详细的实验步骤、菌株、质粒、引物和合成DNA片段均在其中提供。
【数据】方法学细节:原文未详述(全部指向Supporting Information);分析手段:LC-MS/MS、蛋白质结构预测(ColabFold);菌株/质粒/引物:见支持信息
需要说明的是,原文节选的方法部分未给出分步操作、试剂用量、温度时间等具体参数,上述内容均收录于支持信息,正文节选未展开。研究结果部分对遗传平台构建与筛选流程有较详细描述,其操作要点在下一节如实译出。
研究结果
Cs结构域的突变调控能力有限
为系统研究NRPS起始模块中酰基链选择性的调控策略,研究者首先建立了一个能够对SF合成酶进行稳健迭代工程的遗传平台。如图S2所示,天然Cs结构域编码区被四环素抗性标记盒暂时替换,以便后续遗传操作。该修饰破坏了感受态因子comS的表达——comS与srfA操纵子共转录,导致转化效率丧失。为克服这一限制,在amyE位点引入comS的额外拷贝,从而在迭代基因组工程中恢复感受态。该遗传背景使得四环素抗性标记盒能够被含有卡那霉素抗性标记盒和任意Cs结构域编码区的DNA片段高效替换,得到Cs结构域修饰的srfA构建体。该平台进一步支持对多个Cs变体的高效评估。
利用该平台,研究者首先评估了能否通过天然Cs结构域内的氨基酸替换改变酰基链选择性。基于前期研究和结构分析(图S3),选取位于推定底物结合区及其周围的残基(V138、S143和M148)进行突变分析。然而,将这些残基替换为体积较小的氨基酸后,所产脂肽的脂肪酸酰基链分布未出现任何可检测的变化,表明此前提出的决定底物选择性的残基不足以在本系统中重编程底物选择性。
【数据】突变位点:V138、S143、M148;突变方式:替换为小体积氨基酸;酰基链分布变化:无可检测变化;统计显著性:原文未详述
为进一步鉴定Cs结构域中控制酰基链的重要残基,研究者对候选底物相互作用区域的34个残基进行了系统丙氨酸扫描。与靶向替换结果一致,所有丙氨酸变体相对于野生型菌株均未表现出脂肪酸酰基链组成的可测偏移(图S4)。研究者还选取了产量提升相对较高的Q360进行饱和突变,但这些替换同样未影响脂肪酸酰基链分布(图S5)。广泛残基集合中一致缺乏选择性变化,表明酰基链特异性对Cs结构域内的局部扰动高度稳健。
然而,丙氨酸替换虽未改变产物谱,却频繁改变脂肽产量(图S4和图S5)。若干变体产量高于野生型,另一些则产量下降,说明即使底物选择性维持不变,生物合成效率仍对Cs结构域内的扰动敏感。这些观察表明,控制产量的决定因素可以与控制底物识别的决定因素独立调控。综合来看,这些结果揭示了传统突变方法的根本局限:局部氨基酸替换不足以重编程酰基链选择性,却能显著影响生物合成性能。这种选择性与产量之间的明显分离提示,改变底物特异性可能需要更大范围的结构扰动。
【数据】扫描残基数:34个;饱和突变位点:Q360;产量变化:部分变体高于野生型、部分下降;酰基链组成变化:无;统计显著性:原文未详述
Cs结构域替换重编程酰基链选择性但损害产量
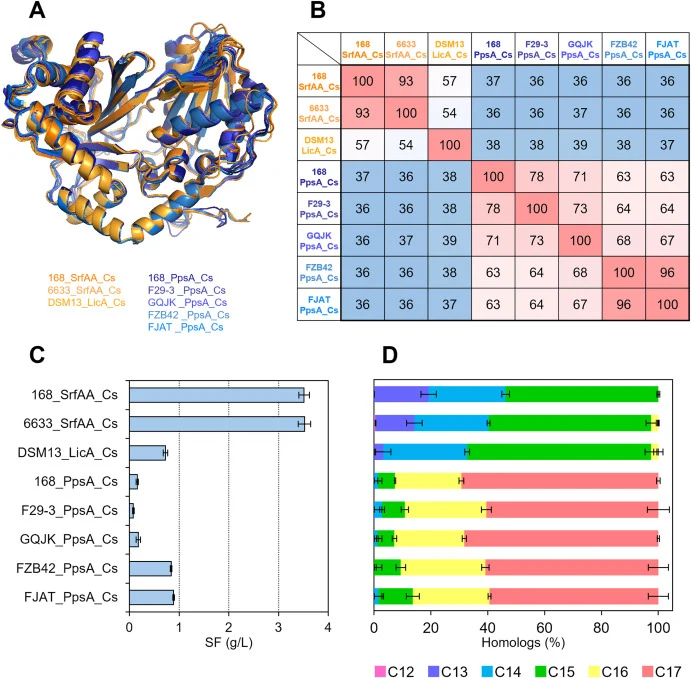
天然Cs结构域突变调控能力有限,促使研究者探索结构域级工程作为替代策略。研究假设:用具有不同底物偏好的同源Cs结构域替换,可实现SF生物合成中酰基链选择性的重编程。尽管氨基酸同一性相对较低(约36–37%),ColabFold模型预测SrfAA_Cs与PpsA_Cs具有高度相似的整体结构和保守的活性位点区域(图2A)。然而序列分析显示,这两个结构域之间的分化程度明显高于亲缘关系较近的Cs同源物之间(图2B)。结构保守与序列分化的组合提示,PpsA_Cs是功能替换的合适候选,可能在不丧失催化能力的前提下重编程酰基链选择性。
为验证该假设,研究者用来自多种芽孢杆菌脂肽合成酶的Cs结构域替换SrfAA的天然Cs结构域(图2C)。携带来自枯草芽孢杆菌168或ATCC 6633的srfAA_Cs的菌株,其SF产量谱与亲本菌株基本无差别,以C13–C15同系物为主(图2D)。类似地,用地衣芽孢杆菌LicA_Cs替换导致SF产量大幅下降,但酰基链分布无可检测偏移。相反,用来自多株产plipastatin菌株的PpsA_Cs替换SrfAA_Cs,导致SF酰基链组成显著向长链同系物偏移。在这些工程菌株中,C16-和C17-SF成为主导,同时C13–C15同系物减少(图2D)。该效应在多个序列分化中等的PpsA_Cs同源物中一致观察到,表明对长链β-羟基脂肪酸的偏好是这些结构域的保守功能特征。
【数据】氨基酸同一性:约36–37%;主导同系物(对照):C13–C15;工程菌主导同系物:C16-和C17-SF;酰基链偏移:C13–C15减少;统计显著性:原文未详述
尽管酰基链选择性重编程成功,PpsA_Cs替换仍导致SF总产量大幅下降(图2C)。某些变体(如来自解淀粉芽孢杆菌FZB42和贝莱斯芽孢杆菌FJAT-52631的变体)产量相对较高,但仍显著低于天然系统。携带C13–C17 β-羟基脂肪酸的SF同系物结构基于高分辨率串联质谱确定(图S6)。正如对同源Cs结构域的预期,结构比较显示整体折叠高度相似、催化基序保守(图S7)。序列比对显示,HHxxxDG催化基序及其侧翼残基在Cs结构域间高度保守,而更远端区域序列变异性更大(图S8)。尽管催化架构保守,Cs结构域间的酰基链偏好差异显著(图2)。这些观察共同提示,底物特异性和催化性能的决定因素位于保守催化核心之外。综上,Cs结构域替换能够重编程酰基链选择性,并在低序列相似性下保留可测活性;但该重编程伴随生物合成效率下降,揭示了NRPS起始模块内底物选择性与产量之间的内在权衡。
【数据】产量变化:PpsA_Cs替换后大幅下降;相对较高变体来源:FZB42、FJAT-52631;酰基链碳数:C13–C17 β-羟基脂肪酸;催化基序:HHxxxDG;统计显著性:原文未详述
定点突变提升PpsA_Cs功能
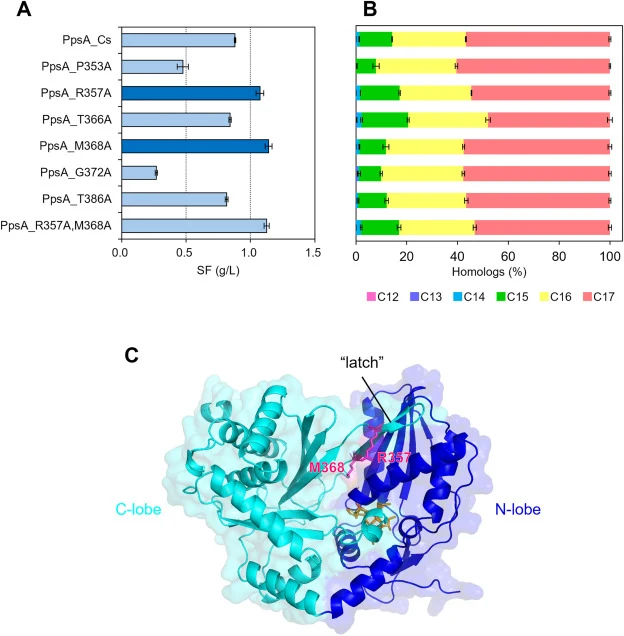
Cs结构域替换后产量下降,促使研究者检验异源PpsA_Cs的催化性能能否通过靶向突变改善。对天然SrfAA_Cs的分析显示,该结构域内的突变可在不改变酰基链选择性的情况下调节生物合成效率(图S3–S5),表明控制产量的决定因素可能在不同同源Cs结构域间可迁移。据此,研究者在PpsA_Cs中鉴定了7个对应位置,其中1个已为丙氨酸(A355),因此在其余6个位置引入丙氨酸替换。原文在此处截断,后续结果未在节选范围内。
【数据】候选位置数:7个;已为丙氨酸位置:A355;引入丙氨酸替换位置数:6个;后续结果:原文节选未详述
讨论与解读
本研究证明,工程化NRPS起始模块可合成带有延长酰基链的SF同系物。用plipastatin合成酶的Cs结构域替换SF合成酶的天然Cs结构域,成功将酰基链长度偏好重编程为C16–C17 β-羟基脂肪酸,直接证明Cs结构域是脂起始过程中酰基链选择性的主要决定因素。这与既往结构和生化研究一致——Cs结构域编码决定脂肪酸酰基掺入的内在底物偏好。然而,Cs结构域替换降低了产量,凸显NRPS工程的核心难题:模块化装配线的功能重构常伴随生物合成效率受损,原因很可能是精细调节的结构域间相互作用被破坏。其他脂肽系统中也报道过类似产量下降,提示这一限制反映的是NRPS模块性的普遍约束,而非本系统特有问题。研究还表明,酰基链选择性对天然Cs结构域内的局部扰动高度耐受——靶向突变和广泛丙氨酸扫描均未产生可检测的产物谱变化。这说明底物识别与催化效率的决定因素在结构上可分离,为"先改选择性、再修产量"的分步工程策略提供了依据。
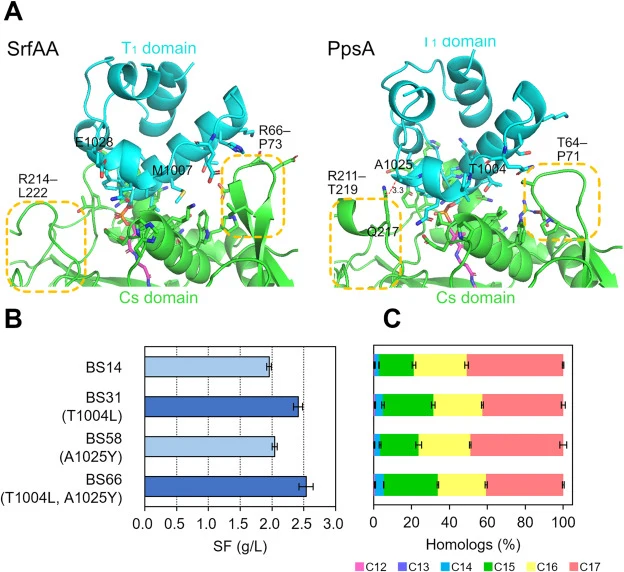
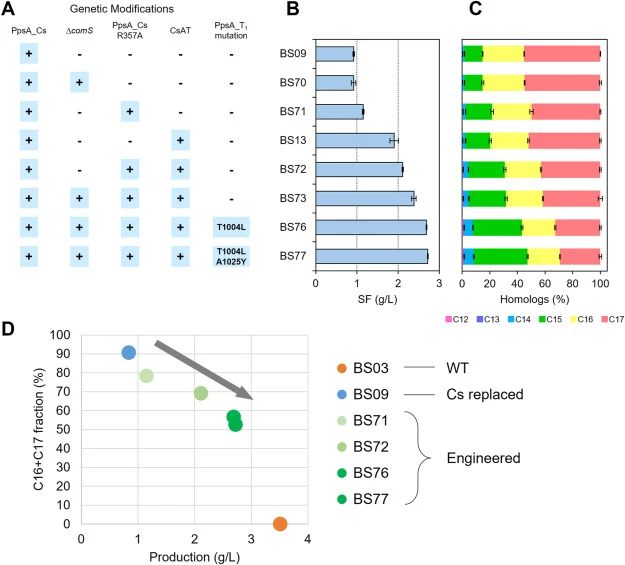
编译者解读:该研究把NRPS起始模块的工程问题拆成"选择性"与"兼容性"两个可独立操作的变量,方法上以Cs结构域替换定方向、以界面突变与T1结构域调优补产量,思路清晰。其价值在于证明了长链脂肽可通过模块替换获得,且产量恢复不必牺牲链长特异性。局限也明显:产量仍未回到天然系统水平,且节选的方法学细节全部外置,复现依赖支持信息;Cs-T1界面突变的组合空间是否已充分探索,尚待完整数据检验。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102574
DOI: 10.1016/j.ymben.2026.102574