来源:Multilevel metabolic engineering of Bacillus amyloliquefaciens for enhanced L-tyrosine production(Journal of Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
L-酪氨酸是重要的芳香族氨基酸,广泛用于食品、饲料、医药及多种天然产物合成。传统质粒过表达策略虽能提高产量,却受制于抗生素选择压力与非选择性条件下的遗传不稳定。本研究以解淀粉芽孢杆菌为宿主,采用基因组整合、启动子原位替换与前体模块优化等多层级策略,构建了无质粒、无抗生素依赖的稳定生产菌株,摇瓶效价达1079.94 mg/L,较出发菌株提高287%。
研究背景
L-酪氨酸兼具营养与生理功能,被报道有助于维持认知表现、缓解应激与焦虑相关症状,因而在食品、饲料和营养保健品中作为补充剂广泛应用。对苯丙酮尿症患者而言,由于苯丙氨酸羟化酶缺陷导致内源L-酪氨酸合成不足,L-酪氨酸被视为必需氨基酸,需外源补充。同时,L-酪氨酸是左旋多巴、对香豆酸、咖啡酸、丹酚酸A、白藜芦醇和羟基酪醇等多种天然产物的关键前体,这些衍生物具有神经保护、抗氧化和抗炎等生物活性,在医药领域潜力可观。因此,开发高效、经济、稳定的L-酪氨酸生产工艺对满足持续增长的市场需求具有重要意义。
已有研究表明,基于质粒过表达突变型预苯酸脱氢酶可显著提升L-酪氨酸产量,但质粒系统在无选择压力下易丢失,抗生素添加又推高成本并带来大规模发酵的生物安全顾虑。如何在基因组水平实现稳定、无需抗生素的高效合成,成为本研究要解决的问题。
研究方法
2.1 菌株、质粒与培养条件
本研究所用细菌菌株、质粒和引物分别列于表1、表S1和表S2。质粒构建与扩增使用大肠杆菌DH5α完成,解淀粉芽孢杆菌Z1(野生型菌株)作为L-酪氨酸生产宿主。所有基因整合菌株和过表达菌株均源自解淀粉芽孢杆菌Z1。常规培养在Luria-Bertani(LB)培养基中进行,含10 g/L NaCl、10 g/L胰蛋白胨和5 g/L酵母提取物。L-酪氨酸生产发酵培养基组成为(g/L):葡萄糖30、(NH4)2SO4 3、K2HPO4 6.75、KH2PO4 1.25、MgSO4·7H2O 1.5、柠檬酸钠5、蛋白胨3、酵母提取物6。摇瓶发酵时,种子液在LB培养基中于37℃、220 rpm过夜培养,随后以初始OD600为0.4接种至250 mL摇瓶中的50 mL发酵培养基。培养物于37℃、220 rpm培养36 h,除另有说明外,在36 h取样进行L-酪氨酸定量。需要时,卡那霉素和四环素均以20 μg/mL的终浓度添加。
【数据】培养基:LB(10 g/L NaCl、10 g/L胰蛋白胨、5 g/L酵母提取物);发酵培养基:葡萄糖30 g/L、(NH4)2SO4 3 g/L、K2HPO4 6.75 g/L、KH2PO4 1.25 g/L、MgSO4·7H2O 1.5 g/L、柠檬酸钠5 g/L、蛋白胨3 g/L、酵母提取物6 g/L;种子培养温度:37℃;转速:220 rpm;接种初始OD600:0.4;发酵体积:50 mL/250 mL摇瓶;发酵温度:37℃;发酵时间:36 h;抗生素浓度:卡那霉素20 μg/mL、四环素20 μg/mL
2.2 重组质粒与菌株的构建
基因整合菌株采用温度敏感型质粒介导的同源重组方法构建。简言之,通过PCR扩增上游同源臂(约750 bp)、P43-UTR3-Bao-tyrA I309A/E330V-TamyL表达盒和下游同源臂(约750 bp),并经重叠延伸融合。所得片段连接入T2(2)-ori质粒以生成整合载体,通过电转化导入解淀粉芽孢杆菌Z1。转化子在含卡那霉素(20 μg/mL)的LB琼脂上筛选。经PCR验证后,阳性克隆在含卡那霉素(20 μg/mL)的LB培养基中于45℃、180 rpm培养8 h以促进单交换事件。随后将单交换克隆在无抗生素培养基中于37℃培养以筛选双交换重组子,获得菌株Z1ΔtrpE::tyrA I309A/E330V。所有工程菌株均经PCR和DNA测序确认,其他整合菌株采用相同流程构建。对于多拷贝整合菌株,每次整合事件均用整合位点两侧的位点特异性引物通过PCR确认,并通过测序验证完整表达盒的存在。不同拷贝数菌株中目标基因的转录水平进一步以cDNA为模板通过逆转录定量PCR(RT-qPCR)分析,以16S rRNA基因作为内参。多拷贝菌株的整合位点选自非必需基因组位点,tyrA基因的位点包括trpE、aprE、nprE和aprX,aroA基因的位点包括bpr、mpr和vpr。该选择策略用于避免破坏必需基因并便于独立整合事件的发生。启动子原位替换菌株采用类似方法构建,即用P43、P bacA 和P srfA启动子替换目标基因的天然启动子。过表达菌株按先前建立的流程构建。以aroB为例,从菌株Z1基因组DNA中PCR扩增aroB编码序列,随后插入质粒pT02。将所得质粒转化大肠杆菌DH5α感受态细胞,重组构建体经测序验证并命名为pT02-P43-Bao-aroB。验证后的质粒通过电转化导入菌株Z7的电感受态细胞,生成Z7/P43-Bao-aroB。携带空载体pT02的菌株Z9作为所有基于质粒的过表达实验的对照。其他过表达菌株采用相同流程构建。
【数据】同源臂长度:约750 bp;表达盒:P43-UTR3-Bao-tyrA I309A/E330V-TamyL;整合载体:T2(2)-ori;卡那霉素筛选浓度:20 μg/mL;单交换培养温度:45℃;单交换转速:180 rpm;单交换时间:8 h;双交换培养温度:37℃;整合位点(tyrA):trpE、aprE、nprE、aprX;整合位点(aroA):bpr、mpr、vpr;启动子:P43、P bacA 、P srfA;过表达质粒:pT02;对照菌株:Z9(Z7/pT02);内参基因:16S rRNA
2.3 L-酪氨酸的测定
具体而言,取接种后36 h收集的50 mL发酵液与30 mL 1 M HCl混合,以确保L-酪氨酸沉淀完全溶解,涡旋1 h。混合物于12,000 r/min离心3 min,上清液经0.22 μm滤膜过滤。L-酪氨酸使用配备ZORBAX Eclipse XDB-C18色谱柱(4.6 mm × 250 mm,5 μm)的Agilent 1100 HPLC系统定量。流动相为10%甲醇和90%乙酸钠(100 mmol/L,pH 4.0),流速0.6 mL/min。进样体积10 μL,柱温维持30℃,紫外检测器于280 nm检测。
【数据】发酵液体积:50 mL;HCl浓度:1 M;HCl体积:30 mL;涡旋时间:1 h;离心转速:12,000 r/min;离心时间:3 min;滤膜孔径:0.22 μm;色谱柱:ZORBAX Eclipse XDB-C18(4.6 mm × 250 mm,5 μm);流动相:10%甲醇+90%乙酸钠(100 mmol/L,pH 4.0);流速:0.6 mL/min;进样体积:10 μL;柱温:30℃;检测波长:280 nm
2.4 统计分析
所有实验均至少进行三次独立生物学重复。数据分别使用GraphPad Prism 8和SPSS 23.0处理与分析。结果以三次重复的平均值表示,误差棒表示标准差(SD)。统计显著性采用单因素方差分析(ANOVA)结合Dunnett's事后检验相对于对照菌株进行评估,**表示p < 0.01,*表示p < 0.05,ns表示不显著。
【数据】生物学重复:至少3次;分析软件:GraphPad Prism 8、SPSS 23.0;误差表示:标准差(SD);统计方法:单因素方差分析(ANOVA)+ Dunnett's事后检验;显著性阈值:p < 0.05(*)、p < 0.01(**)
研究结果
3.1 tyrA I309A/E330V拷贝数对L-酪氨酸产量的影响
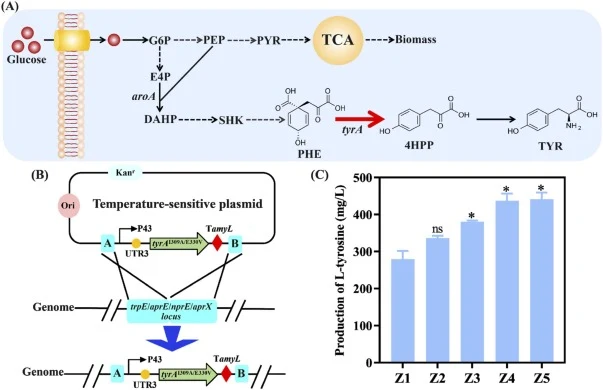
既往研究表明,过表达突变型预苯酸脱氢酶基因tyrA I309A/E330V可显著提高L-酪氨酸产量(图1A)。然而,基于质粒的表达在缺乏选择压力时往往遗传不稳定,抗生素添加又增加成本并在大规模发酵中引发生物安全顾虑。为克服这些局限,将高表达盒(P43-UTR3-tyrA I309A/E330V-TamyL)整合到菌株Z1基因组中,构建无质粒、无抗生素依赖的菌株(图1B)。选择trpE位点作为初始整合位点,是因为trpE的破坏可阻断分支酸流向L-色氨酸,并可能将碳前体重定向至L-酪氨酸生物合成。此外,终点生物量和效价测定显示,与对照菌株Z1相比,trpE敲除未显著影响细胞生长或L-酪氨酸产量(图S1)。所得菌株Z2的L-酪氨酸产量达到336.05 mg/L,较对照菌株Z1提高20%(图1C)。随后进一步评估多拷贝整合对L-酪氨酸积累的影响。当tyrA I309A/E330V拷贝数增至二和三个时,L-酪氨酸产量分别提高至380.60 mg/L(菌株Z3)和437.43 mg/L(菌株Z4),较对照菌株Z1分别提高36%和57%(图1C)。相反,在菌株Z4基础上再增加一个拷贝生成菌株Z5,并未显著提高效价(440.89 mg/L)。这些结果表明,tyrA I309A/E330V的多拷贝整合可提高L-酪氨酸产量,但超过三个拷贝后收益趋于平台,这与先前报道一致。
【数据】菌株:Z1(对照)、Z2、Z3、Z4、Z5;整合表达盒:P43-UTR3-tyrA I309A/E330V-TamyL;整合位点:trpE;Z2效价:336.05 mg/L(+20%);Z3效价:380.60 mg/L(+36%);Z4效价:437.43 mg/L(+57%);Z5效价:440.89 mg/L(无显著提升);拷贝数:1、2、3、4
3.2 aroA R27A/K38A拷贝数对L-酪氨酸产量的影响
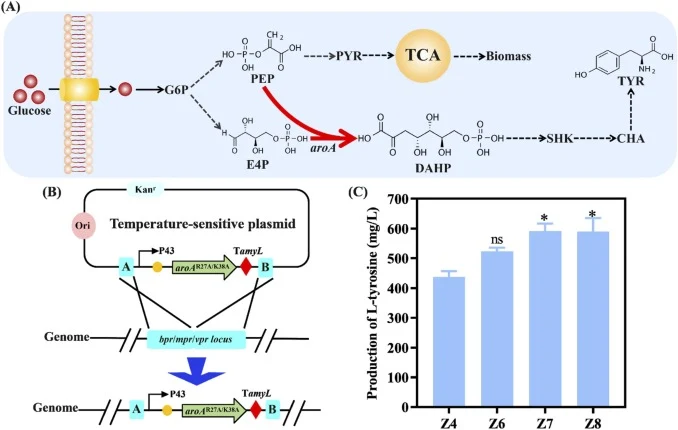
除预苯酸脱氢酶外,DAHP合酶是提高L-酪氨酸生物合成的另一个关键改造靶点。该酶催化PEP与E4P缩合生成DAHP,从而启动芳香族氨基酸生物合成途径,其活性直接决定进入该途径的总碳通量(图2A)。为进一步缓解上游瓶颈并增强上下游模块的协调性,将高表达盒(P43-Bao-aroA R27A/K38A-TamyL)整合到菌株Z4基因组中(图2B)。为避免使用已用过的整合位点,选择bpr、mpr和vpr位点作为后续整合的候选。第一步,将表达盒整合到菌株Z4的bpr位点,生成单拷贝菌株Z6。该菌株将L-酪氨酸积累显著提高至522.70 mg/L,较对照菌株Z4提高19%(图2C)。该结果与先前报道一致,并进一步支持DAHP合酶是缓解芳香族氨基酸生物合成上游限制的有效杠杆。随后评估多拷贝整合对L-酪氨酸积累的影响。当aroA R27A/K38A拷贝数增至二和三个时,L-酪氨酸产量分别达到591.29 mg/L(菌株Z7)和589.46 mg/L(菌株Z8)(图2C)。值得注意的是,提升在二拷贝时即趋于平台,增加拷贝数未带来显著额外收益。这表明上游模块可能已接近饱和,后续限制因素可能转移至下游节点和前体供应。总体而言,DAHP合酶与预苯酸脱氢酶的联合染色体整合建立了从碳源到L-酪氨酸的高效路线,为构建稳健高性能的L-酪氨酸细胞工厂以及通过多基因协同调控进一步优化奠定了基础。
【数据】菌株:Z4(对照)、Z6、Z7、Z8;整合表达盒:P43-Bao-aroA R27A/K38A-TamyL;整合位点:bpr、mpr、vpr;Z6效价:522.70 mg/L(+19%);Z7效价:591.29 mg/L;Z8效价:589.46 mg/L;拷贝数:1、2、3
3.3 途径基因协同强化对L-酪氨酸产量的影响
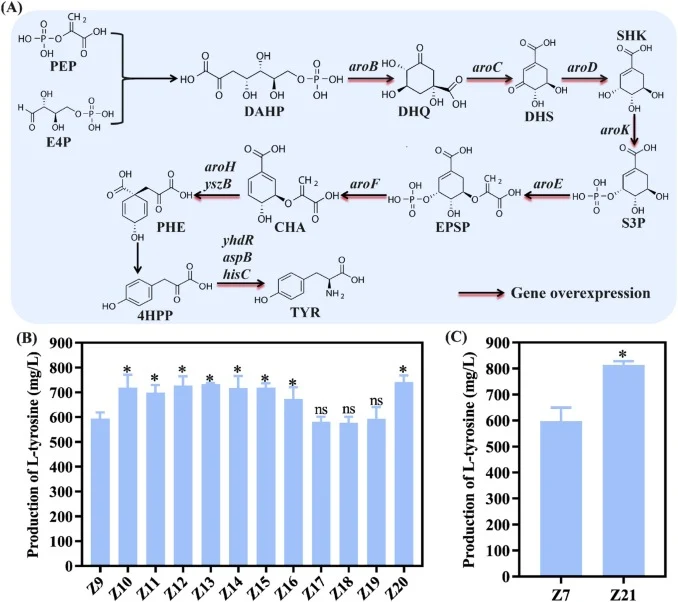
多项研究表明,增强DAHP合酶和预苯酸脱氢酶的表达有助于提高L-酪氨酸产量。然而,芳香族氨基酸生物合成途径包含从DAHP到分支酸、再从预苯酸到L-酪氨酸的多个酶促步骤(图3A)。仅强化少数关键节点可能将限制转移至中间反应并产生新瓶颈。为系统识别并缓解此类途径内限制,以菌株Z7(三个拷贝tyrA I309A/E330V和两个拷贝aroA R27A/K38A)为底盘,分别过表达aroB、aroC、aroD、aroK、aroE、aroF、aroH、yszB、yhdR、aspB和hisC。菌株Z9(Z7/pT02)作为所有基于质粒的过表达实验的对照。过表达aroB(718.98 mg/L)、aroC(698.79 mg/L)、aroD(726.92 mg/L)、aroK(734.08 mg/L)、aroE(717.62 mg/L)、aroF(718.81 mg/L)、aroH(672.85 mg/L)和hisC(742.04 mg/L)均提高了L-酪氨酸产量,而yszB、yhdR和aspB无显著影响(图3B)。这些结果表明,从DAHP到分支酸并经预苯酸到L-酪氨酸的主路线通量仍不足,而yszB、yhdR和aspB并非解淀粉芽孢杆菌中的主要限制因素。为协同强化多个途径基因,通过基因组整合将aroB、aroC、aroD、aroK、aroE、aroF、aroH和hisC的天然启动子替换为组成型P43启动子,生成菌株Z21。该菌株产L-酪氨酸813.01 mg/L,较对照菌株Z7提高36%(图3C)。这些结果表明,多个潜在限速步骤的平衡上调可系统增强途径通量,与先前研究一致。总体而言,缓解中间步骤的瓶颈对于整个途径的协同改善和代谢网络的全局优化至关重要。该策略为构建高效稳定的芳香族氨基酸微生物细胞工厂提供了有益参考。
【数据】底盘菌株:Z7(tyrA I309A/E330V×3、aroA R27A/K38A×2);对照菌株:Z9(Z7/pT02);过表达基因:aroB、aroC、aroD、aroK、aroE、aroF、aroH、yszB、yhdR、aspB、hisC;aroB效价:718.98 mg/L;aroC效价:698.79 mg/L;aroD效价:726.92 mg/L;aroK效价:734.08 mg/L;aroE效价:717.62 mg/L;aroF效价:718.81 mg/L;aroH效价:672.85 mg/L;hisC效价:742.04 mg/L;yszB、yhdR、aspB:无显著影响;启动子替换基因:aroB、aroC、aroD、aroK、aroE、aroF、aroH、hisC;替换启动子:P43;Z21效价:813.01 mg/L(+36%)
3.4 增强前体供应对L-酪氨酸产量的影响
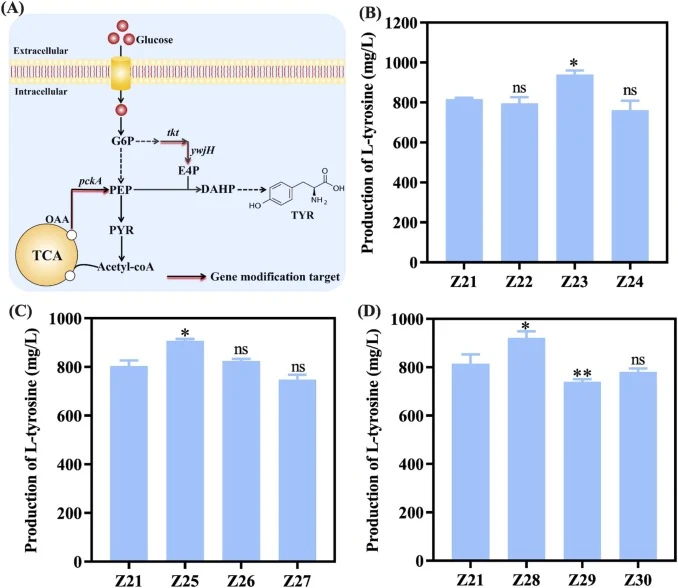
充足的前体供应是限制高效L-酪氨酸生物合成的另一关键因素。L-酪氨酸的碳骨架来源于糖酵解途径的PEP和戊糖磷酸途径的E4P,这些前体缩合生成DAHP,从而启动芳香族氨基酸生物合成途径(图4A)。因此,提高胞内PEP和E4P的可利用性对强化整体途径至关重要。常见改造靶点包括pckA(磷酸烯醇式丙酮酸羧激酶)、tkt(转酮醇酶)和ywjH(转醛醇酶)。为精细调节表达,将这些基因的天然启动子替换为不同强度的启动子(来自枯草芽孢杆菌168的P43、来自地衣芽孢杆菌的P bacA 和P srfA),生成一系列重组菌株。本节所有启动子替换实验以菌株Z21为对照,因其代表前体优化前最先进的途径强化底盘。启动子强度的效果因基因而异。对于pckA,替换为P bacA 启动子(菌株Z23)获得最高L-酪氨酸效价(939.43 mg/L),较对照菌株Z21提高15%,提示适度增强PEP供应有益(图4B)。对于tkt和ywjH,组成型P43启动子表现最佳,L-酪氨酸产量分别达到908.06 mg/L(菌株Z25)和922.26 mg/L(菌株Z28)。
【数据】对照菌株:Z21;改造基因:pckA、tkt、ywjH;启动子:P43(枯草芽孢杆菌168)、P bacA (地衣芽孢杆菌)、P srfA(地衣芽孢杆菌);Z23(pckA::P bacA )效价:939.43 mg/L(+15%);Z25(tkt::P43)效价:908.06 mg/L;Z28(ywjH::P43)效价:922.26 mg/L
3.5 组合优化对L-酪氨酸产量的影响
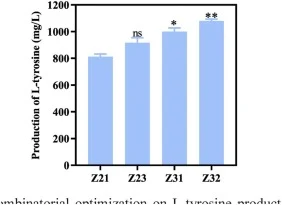
在分别强化途径模块和前体模块的基础上,进一步进行组合优化以获得最终生产菌株Z32。组合优化后的菌株Z32在摇瓶培养中L-酪氨酸效价达到1079.94 mg/L,较出发菌株Z1提高287%(图5)。各轮改造的效价提升呈现逐级叠加特征:从Z1到Z4(tyrA多拷贝)、Z7(aroA整合)、Z21(途径基因启动子替换)到Z32(前体模块优化),产量依次攀升。图5中*(p < 0.05)和**(p < 0.01)表示相对于对照菌株Z21的显著性水平,ns表示无显著差异。
【数据】最终菌株:Z32;效价:1079.94 mg/L;较Z1提升:287%;对照菌株(图5):Z21;显著性标注:* p < 0.05、** p < 0.01、ns不显著
讨论与解读
本研究采用基因组整合、启动子原位替换和前体模块优化相结合的系统代谢工程策略改造L-酪氨酸生物合成途径。首先将携带预苯酸脱氢酶和DAHP合酶编码基因的高表达盒整合至菌株Z1基因组:tyrA I309A/E330V三拷贝插入使L-酪氨酸产量达437.43 mg/L(菌株Z4),随后aroA R27A/K38A双拷贝插入将产量进一步提高至591.29 mg/L(菌株Z7)。在此基础上,通过关键基因的原位启动子替换进一步强化生物合成途径(aroB、aroC、aroD、aroK、aroE、aroF、aroH和hisC)与前体供应模块(pckA、ywjH和tkt)。最终菌株Z32产L-酪氨酸1079.94 mg/L,较对照菌株Z1提高287%。该多层级策略实现了无质粒、无抗生素依赖的高产菌株构建,为芳香族氨基酸及其衍生物的工程化提供了有用框架。尽管取得上述进展,本研究获得的L-酪氨酸效价仍低于此前报道的、基于质粒系统的解淀粉芽孢杆菌9.39 g/L水平,摇瓶培养中为1079.94 mg/L,原文对造成这一差距的若干因素进行了讨论(节选至此)。
编译者解读:该研究的亮点在于"去质粒化"——把产量提升的压力全部转移到染色体上,用拷贝数与启动子强度做精细剂量控制,规避了抗生素依赖和质粒丢失这一工业化的真实痛点。三拷贝tyrA、双拷贝aroA后收益即饱和,说明作者对"过表达边际递减"的判断是清醒的。局限也明显:1079.94 mg/L的摇瓶效价与质粒系统9.39 g/L仍有近九倍差距,染色体单拷贝表达强度不足是硬约束。后续若能在整合位点选择、启动子库扩展或拷贝数-前体协同上继续挖潜,这一无抗平台才真正具备工业竞争力。
参考来源
期刊:Journal of Biotechnology, 2026
DOI: 10.1016/j.jbiotec.2026.10.017
DOI: 10.1016/j.jbiotec.2026.10.017