来源:Improved thermal stability of 1,4-α-glucan branching enzyme via the semi-rational design of the flexible loops and disulfide bonds for starch modification(Food Chemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
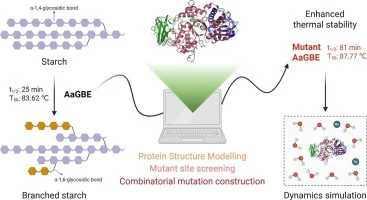
高温淀粉改性对1,4-α-葡聚糖分支酶(GBE)的热稳定性提出严苛要求,而来源于Aquifex aeolicus的AaGBE因缺乏晶体结构,理性改造长期受阻。本研究以AlphaFold2预测模型为起点,整合共识突变、柔性环区分析、DynaMut稳定性预测与二硫键设计,构建五重突变体V155L-V280I-D282N-H408C-W536C。该突变体在85 °C下半失活时间由25 min延长至81 min,T₅₀提高4.15 °C,熔解温度提升7.29 °C;用于马铃薯淀粉改性时支链淀粉含量提高10.5%,快消化淀粉降低9.75%。这套"计算—实验"闭环为无晶体结构酶的热稳定性工程提供了可复用范式。
研究背景
GBE(EC 2.4.1.18)通过水解α-1,4-糖苷键并将释放的寡糖链转移至C-6羟基形成α-1,6-糖苷键,从而改变淀粉的分支度。分支度直接决定淀粉的消化性、糊化行为与回生倾向,是淀粉基食品品质的核心参数。按IUBMB命名,GBE因转糖基活性被归为糖基转移酶;但依据序列同源性与折叠相似性,其结构上属于糖苷水解酶超家族,微生物来源的GBE主要归入CAZy数据库的GH13或GH57家族。微生物GBE多功能、易异源表达,已被广泛研究。
工业高温淀粉改性要求GBE在糊化温度(通常高于70 °C)下保持高催化活性,并在整个加工过程中维持稳定。现有GBE难以满足这一严苛需求,热稳定性不足成为产业化的关键瓶颈。传统定向进化依赖高通量筛选,成本高;理性设计依赖晶体结构,而AaGBE的晶体结构尚未解析。AlphaFold2的出现使基于预测模型开展半理性设计成为可能,但预测模型不显式考虑温度、pH、配体结合等环境因素,也不使用能量函数识别天然构象,因此必须结合实验验证与分子动力学模拟进行校正。本研究正是在这一背景下,将柔性环区刚性化与二硫键引入相结合,对AaGBE进行热稳定性改造,并验证改性后马铃薯淀粉的理化与消化特性。
研究方法
2.1 菌株、载体与培养条件
大肠杆菌—枯草芽孢杆菌穿梭质粒pHTN06/AaGBE为预先构建并保存于大肠杆菌DH5α中的质粒。AaGBE由枯草芽孢杆菌DB403表达。DH5α在LB肉汤(OXOID,英国)中培养,转速220 rpm、温度37 °C;当菌体携带pHTN06及其重组质粒时,加入终浓度100 μg/mL氨苄青霉素(BBI,中国)。DB403在LB或TB肉汤(OXOID,英国)中培养,转速220 rpm、温度37 °C;当菌体携带pHTN06或其重组质粒时,加入终浓度10 μg/mL氯霉素(BBI,中国)。需要时使用终浓度1 mM异丙基-β-D-1-硫代吡喃半乳糖苷(IPTG,Sangon Biotech,中国)诱导目标蛋白表达。所有化学试剂均为分析纯。
【数据】菌株:E. coli DH5α、B. subtilis DB403;质粒:pHTN06/AaGBE;培养基:LB、TB;转速:220 rpm;温度:37 °C;抗生素:氨苄青霉素100 μg/mL、氯霉素10 μg/mL;诱导剂:1 mM IPTG
2.2 克隆与突变
使用设计引物(表S1)进行PCR扩增。PCR体系依据PrimeSTAR® HS DNA Polymerase试剂盒(TAKARA,中国)说明书条件略作修改:10 μL 5×PrimeSTAR Buffer(Mg2+ Plus)、4 μL dNTPs、正向与反向引物各4 μL(终浓度10 μM)、1 μL模板DNA(50–150 ng)、26.5 μL ddH2O、0.5 μL PrimeSTAR HS DNA Polymerase。PCR扩增(Bio-Rad T100,美国)条件:98 °C 1 min 30 s;18个循环(98 °C 30 s,51 °C 15 s,72 °C 9 min 10 s);72 °C 5 min。经琼脂糖凝胶电泳纯化并用DNA凝胶回收试剂盒(TIANGEN,中国)从胶中回收后,DNA片段用DpnI酶(NEB,美国)消化。消化产物随后纯化。接着将DNA片段连接入经BamHI和XbaI(NEB,美国)线性化的pHTN06载体。连接混合物转化大肠杆菌DH5α,涂布于含终浓度100 μg/mL氨苄青霉素的LB琼脂平板。37 °C培养16 h后,通过菌落PCR鉴定阳性克隆,并经DNA测序确认。
【数据】PCR体系:5×Buffer 10 μL、dNTPs 4 μL、引物各4 μL(10 μM)、模板1 μL(50–150 ng)、ddH2O 26.5 μL、酶0.5 μL;PCR条件:98 °C 1 min 30 s、18循环(98 °C 30 s、51 °C 15 s、72 °C 9 min 10 s)、72 °C 5 min;酶切:DpnI、BamHI、XbaI;培养:37 °C、16 h;抗生素:100 μg/mL氨苄青霉素
2.3 蛋白表达
枯草芽孢杆菌在LB琼脂平板上复苏,37 °C培养16 h。挑取单菌落接种LB肉汤,37 °C、220 rpm振荡培养16 h。随后以2%(v/v)接种量接入TB肉汤(OXOID,英国)。当菌液OD600为0.6–0.8时,加入终浓度1 mM IPTG诱导表达。培养72 h后,菌液于10,900 ×g离心20 min(Thermo Scientific Fresco 17,美国)收集菌体,上清液作为粗酶液收集,4 °C保存用于后续蛋白纯化。
【数据】接种量:2%(v/v);培养基:TB;诱导条件:OD600 0.6–0.8、1 mM IPTG;培养时间:72 h;离心:10,900 ×g、20 min;保存温度:4 °C
2.4 DEAE阴离子交换层析
向粗酶液中缓慢加入0.22 g/mL硫酸铵(Sangon Biotech,中国),4 °C静置16 h,随后于4 °C、10,900 ×g离心20 min。弃上清,沉淀蛋白用等体积ddH2O重悬。用 conductivity meter测定50 mM Tris-HCl缓冲液(pH 8.0;Sangon Biotech,中国)与浓缩样品的电导率,两者均用ddH2O调节至相同电导率。样品(200 mL)装入透析袋,对2 L 50 mM Tris-HCl缓冲液(pH 8.0)于4 °C缓慢搅拌透析8 h,再换新鲜缓冲液透析8 h。DEAE Sepharose FF(Yuanye Bio-Tech,中国)层析柱用5倍柱体积的50 mM Tris-HCl(pH 8.0)平衡,随后加入透析样品使蛋白充分结合于柱上。依次用含0、0.1、0.2、0.4、0.6、0.8、1和2 M NaCl(Sangon Biotech,中国)的50 mM Tris-HCl洗脱,收集洗脱液并检测。
【数据】硫酸铵:0.22 g/mL;静置:4 °C、16 h;离心:10,900 ×g、20 min、4 °C;缓冲液:50 mM Tris-HCl pH 8.0;透析:2 L×2次、各8 h、4 °C;层析介质:DEAE Sepharose FF;平衡:5倍柱体积;洗脱:NaCl 0–2 M共8个梯度
2.5 酶活、动力学参数与热稳定性测定
分支酶活性的碘—淀粉比色法参照Krisman(1962)与Takata等(1994)方法并修改。实验组:50 μL待测酶液与50 μL 4 mg/mL马铃薯淀粉在100 mM Tris-HCl缓冲液(pH 8.0)(Yuanye Bio-Tech,中国)中混合,于金属浴80 °C恒温、220 rpm反应20 min。加入2 mL碘显色液终止反应,取200 μL转移至96孔板。用EPOCH2酶标仪(BioTek,美国)测定OD660,记为A1。对照组:以50 μL灭活酶液(100 °C沸水浴处理30 min)为对照,OD660记为A0。一个酶活单位定义为每分钟使660 nm吸光度降低1%所需的酶量。所有测定均在OD660 0.2–0.5范围内进行,该范围内吸光度下降与酶浓度经确认呈线性相关(R² > 0.99)。酶活计算公式如下:
(1)酶活 U/mL = (A0 − A1)/A0/20 × N × 100
式中N为稀释倍数。
WT AaGBE与最优突变体的动力学参数通过测定不同浓度马铃薯淀粉(0–4 mg/mL)在100 mM Tris-HCl缓冲液(pH 8.0)、80 °C下的初始反应速率确定。酶活测定同上,反应时间固定20 min以保证初始速率条件。初始速率数据用GraphPad Prism 8.0软件(San Diego,CA,美国)对Michaelis–Menten方程进行非线性回归拟合,由此确定米氏常数(Kₘ)、转换数(kcat)与催化效率(kcat/Kₘ)。转换数kcat按kcat = Vmax/[E]计算,[E]为酶的摩尔浓度。所有测定均使用新鲜制备的酶样,一式三份。热稳定性检测时,待测酶液于90 °C孵育30 min,冰上快速冷却后测定残余活性。
【数据】反应体系:酶液50 μL + 4 mg/mL马铃薯淀粉50 μL;缓冲液:100 mM Tris-HCl pH 8.0;反应:80 °C、220 rpm、20 min;显色:2 mL碘液;检测:OD660、96孔板、200 μL;酶活单位定义:每分钟OD660降低1%;线性范围:OD660 0.2–0.5(R² > 0.99);动力学底物浓度:0–4 mg/mL;拟合软件:GraphPad Prism 8.0;热稳定性处理:90 °C、30 min
2.6 热稳定性参数(t1/2与T50)测定
通过测定热失活半衰期(t1/2)与半失活温度(T50)评价纯化WT与突变体AaGBE的热稳定性。经特定热处理后,样品于冰上快速冷却5 min终止变性,测定残余酶活。未处理酶液活性定义为100%。测定t1/2时,样品于85 °C孵育,按设定时间间隔取样。t1/2值表示酶活降至初始值50%所需时间。测定T50时,样品在60 °C至90 °C范围内孵育10 min。T50值定义为酶保留初始活性50%时的温度。
【数据】冷却:冰上5 min;t1/2测定温度:85 °C;T50测定温度范围:60–90 °C;T50孵育时间:10 min;活性基准:未处理酶液100%
2.7 二硫键测定
二硫键含量参照Beveridge等(1974)方法略作修改测定。简言之,纯化酶样用变性缓冲液(100 mM Tris-HCl、8 M尿素,pH 7.0;Sangon Biotech,中国)稀释至0.3 mg/mL制备非还原样品。还原样品制备:2 mL非还原样品与50 μL β-巯基乙醇(Yuanye Bio-Tech,中国)混合,37 °C孵育1 h。随后加入2 mL三氯乙酸(TCA;Yuanye Bio-Tech,中国)沉淀蛋白并去除过量还原剂。孵育1 h后,14,000 ×g离心10 min。沉淀重新溶于2 mL变性缓冲液。为定量游离巯基,取15 μL……
【数据】酶样浓度:0.3 mg/mL;变性缓冲液:100 mM Tris-HCl、8 M尿素、pH 7.0;还原剂:50 μL β-巯基乙醇;还原条件:37 °C、1 h;沉淀剂:2 mL TCA;沉淀孵育:1 h;离心:14,000 ×g、10 min;游离巯基取样:15 μL
研究结果
3.1 基于AlphaFold2的AaGBE结构建模
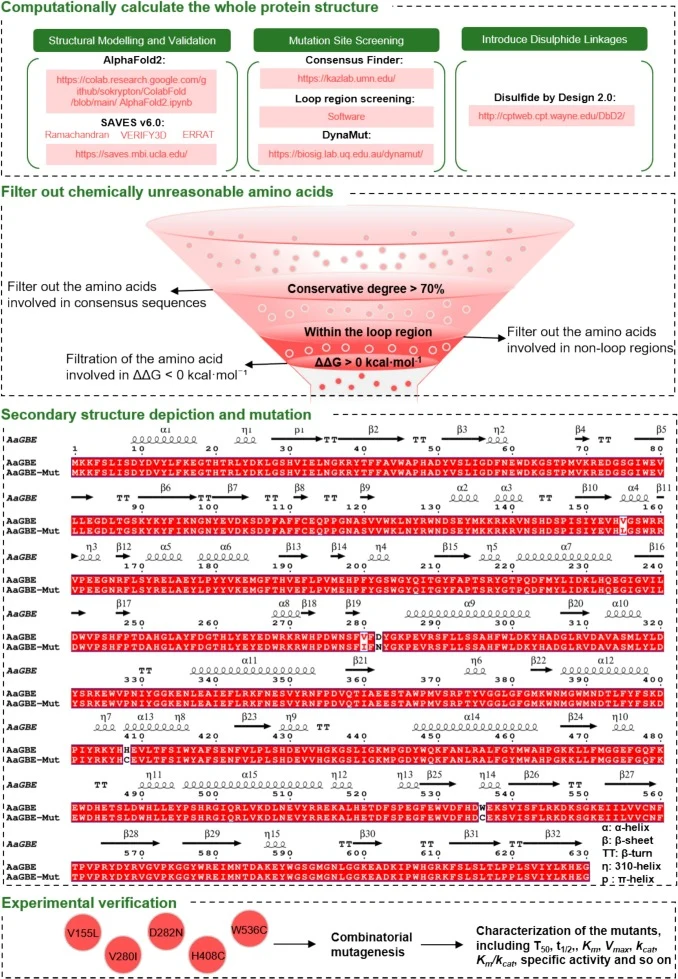
基于可靠结构信息靶向环区柔性弱点,是理性设计AaGBE以提升热稳定性的有效途径。然而AaGBE的晶体结构尚未解析。因此,我们采用AlphaFold2(L. Wang等,2024)生成AaGBE结构模型,并基于该模型使用整合多种互补方法的混合计算策略预测全蛋白范围内的稳定化突变,以减轻采样偏差。候选位点经筛选、过滤去除具有不良结构特征者,随后进行实验验证(图1)。
AlphaFold2对AaGBE的预测结果见图2A。AaGBE在75 °C以上仍保持稳定,在淀粉糊化工艺中显示出可观的应用潜力(X. F. Ban等,2020a)。与嗜温蛋白不同,AaGBE等嗜热蛋白往往具有更刚性的α-螺旋与β-折叠,减少了分子内柔性区域数量并降低结构缠绕(Rahban等,2022)。这种刚性有助于酶维持紧凑的结构构象,从而防止热胁迫下的去折叠(Pica等,2013)。近期研究提示,AlphaFold2在生物学应用中仍存在一定局限。当前版本的AlphaFold2基于进化与序列信息预测蛋白结构,不显式考虑温度、pH或配体结合等环境因素,也不使用能量函数识别天然样构象(Agarwal和McShan,2024)。因此,AlphaFold2生成的模型虽为本研究理性设计提供了可靠起点,但其在实际实验条件(85 °C、pH 8.0)下的真实稳定性与动力学行为,必须通过实验验证与MD模拟来评估这些环境效应。
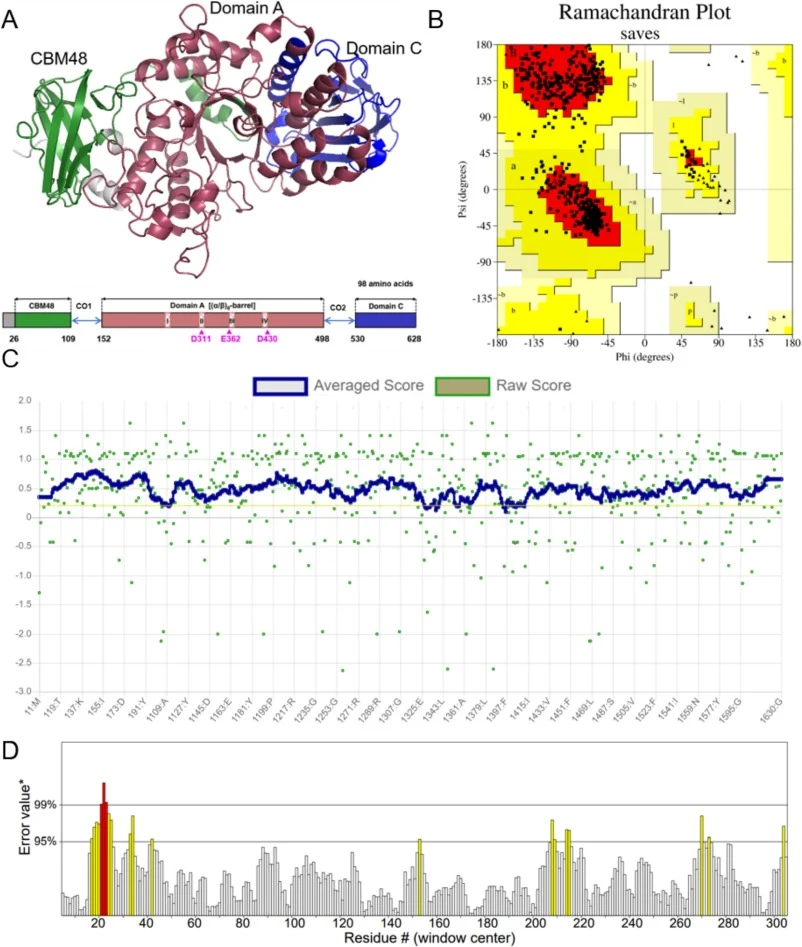
预测的AaGBE模型使用PROCHECK服务器以默认立体化学参数评估。Ramachandran图分析显示,90.1%的氨基酸残基位于最适区(红色区域);9.9%位于额外允许区(黄色区域),不允许区(白色区域)为零;其他立体化学参数未检出违规(图2B),证实预测模型几何质量良好。随后用VERIFY3D评估每个残基的三维结构环境与其氨基酸序列的兼容性,采用源自高分辨率晶体结构的默认统计参考。如图2C所示,94.24%的残基3D1D得分高于0.2,超过可靠模型公认的90%阈值。该指标不依赖温度或pH等外部物理条件,而反映预测模型与已知蛋白结构统计的整体一致性。进一步用ERRAT评估非键相互作用质量,结果显示0.35 nm内原子对间非键相互作用的总体质量得分为94.05(> 90,公认阈值),接近晶体结构水平(约95分),表明该预测蛋白模型的兼容性令人满意(图2D)。这些结果表明,用AlphaFold2生成的AaGBE结构模型较为可靠。
【数据】Ramachandran:最适区90.1%、额外允许区9.9%、不允许区0%;VERIFY3D:94.24%残基3D1D得分>0.2(阈值90%);ERRAT:非键相互作用得分94.05(阈值90,晶体结构约95);评估条件:85 °C、pH 8.0(实验验证条件)
3.2 多轮筛选鉴定关键突变残基
为提升AaGBE热稳定性,采用基于结构模型的多轮突变位点筛选(MRMS)策略。鉴定同源序列中的保守氨基酸有利于通过共识突变获得蛋白折叠稳定性(Jones等,2020)。首先用Consensus Finder比较1372条与AaGBE相关的蛋白序列,以70%序列保守性为突变阈值,共筛选出23个突变位点(图3A与表S2,第1轮)。尽管目前尚无实验解析的AaGBE结构,AlphaFold2预测模型使我们能够识别代表动力学柔性弱点的环区(Yu等,2017)。因此,基于共识序列筛选的第1轮突变位点,第2轮针对动力学柔性弱点高发的环区进行AaGBE突变位点筛选。环区筛选后保留13个潜在突变位点,另10个因不位于环区而被排除(图3B与表S2,第2轮)。环区通常是降低过度柔性的首选靶点,对增强热稳定性起关键作用(Yu和Huang,2014;Yu等,2017)。蛋白结构分析表明,AaGBE的非催化区域含有大量环区。此外,在若干保守位点上,AaGBE的氨基酸序列与共识序列显著偏离(表S2)。就这些环区而言,高温暴露会增加蛋白构象波动,导致不可逆去折叠并随之丧失功能(Wintrode等,2003)。同时,当环区与周围残基接触较少时,蛋白易于去折叠(Yu等,2017)。最后,用DynaMut对第2轮13个突变位点逐一进行单点突变高精度预测,以确定蛋白结构稳定性与刚性的变化(第3轮)(C. H. M. Rodrigues等,2021)。结果显示,13个突变位点中6个具有正ΔΔG,即N118T、H144L、V155L、V280I、D282N与K285R,提示蛋白稳定性提高(图3C)。相反,其余7个位点ΔΔG为负,表明稳定性下降(表S2,第3轮)。对在枯草芽孢杆菌中表达的构建突变体进行热稳定性测定,V155L、V280I、D282N(均p < 0.05)与K285R(p < 0.0001)热稳定性显著提高,而N118T与H144L未提高(图3D)。在鉴定出的突变体中,按式(1)测定WT AaGBE酶活为1552.3 U/mL。相对WT,V155L与V280I突变体活性略有提高,分别为1712.2 U/mL(+10.3%,p < 0.01)与1663.0 U/mL(+7.1%,p < 0.01)。相反,D282N中度下降至1338.7 U/mL(−13.8%,p < 0.001)。K285R突变体虽热稳定性提高,但酶活显著降至404.1 U/mL(p < 0.0001),较WT下降74.0%(图3E)。K285R突变体活性下降归因于285位精氨酸残基在蛋白表面形成突出结构(图S1A与S1B)。突变后氨基酸空间取向改变,精氨酸更大的侧链结构产生更大空间位阻,不利于底物进入酶,导致AaGBE催化活性急剧下降(图S1C与S1D)。K285R突变体凸显了当前设计策略的潜在局限。DynaMut基于结构能量学与折叠自由能预测稳定性,但不模拟底物结合动力学或催化机制(Carlos H. M. Rodrigues等,2018)。因此,用较大的Arg残基替换Lys285虽稳定了局部骨架,却可能引入空间位阻或改变静电……
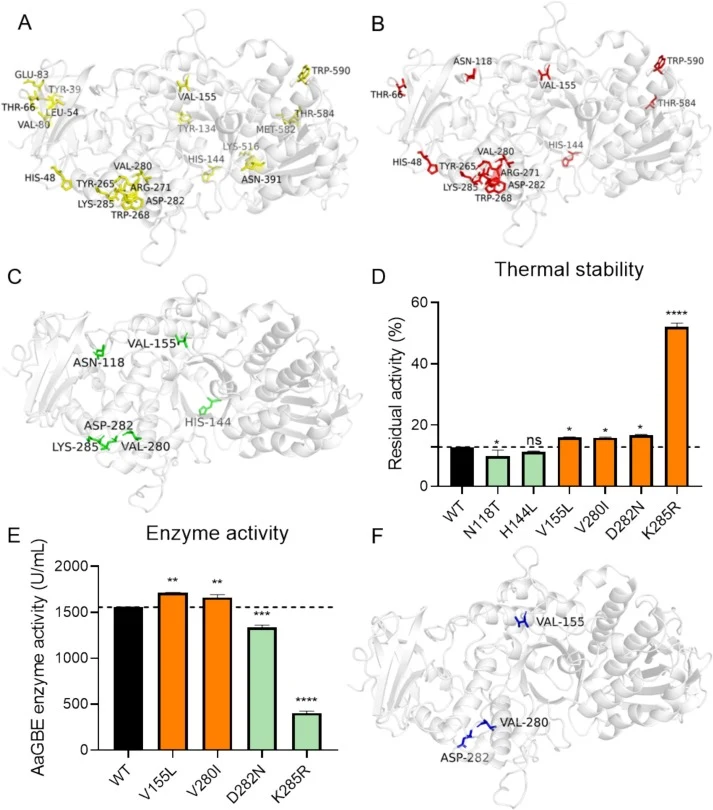
【数据】序列比对:1372条序列、保守性阈值70%、第1轮23个位点;第2轮:环区保留13个、排除10个;第3轮:正ΔΔG 6个(N118T、H144L、V155L、V280I、D282N、K285R)、负ΔΔG 7个;WT酶活:1552.3 U/mL;V155L:1712.2 U/mL(+10.3%,p < 0.01);V280I:1663.0 U/mL(+7.1%,p < 0.01);D282N:1338.7 U/mL(−13.8%,p < 0.001);K285R:404.1 U/mL(−74.0%,p < 0.0001);显著性:V155L/V280I/D282N p < 0.05、K285R p < 0.0001
3.3 二硫键突变体的表征与结构分析
在柔性环区刚性化之外,二硫键引入是另一条稳定化路径。图4A显示设计突变体中检出的二硫键数量,H408C-W536C与K516C-D547C各形成一个二硫键。图4B为WT与二硫键突变体在90 °C热处理30 min后的残余酶活。
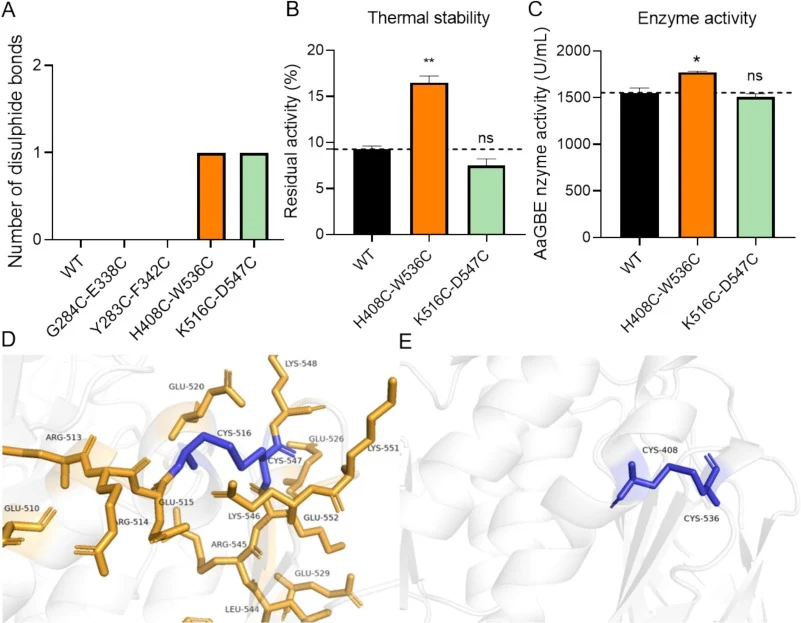
【数据】二硫键突变体:H408C-W536C、K516C-D547C各形成1个二硫键;热处理:90 °C、30 min;检测指标:残余酶活
3.4 组合突变体的热稳定性
图5A给出单环区突变体在85 °C下的半失活时间(t1/2)。图5B为纯化单突变体的SDS-PAGE分析:泳道1为WT,2为V155L,3为V280I,4为D282N。图5C为环区组合与二硫键突变体的t1/2。图5D为相应SDS-PAGE分析。
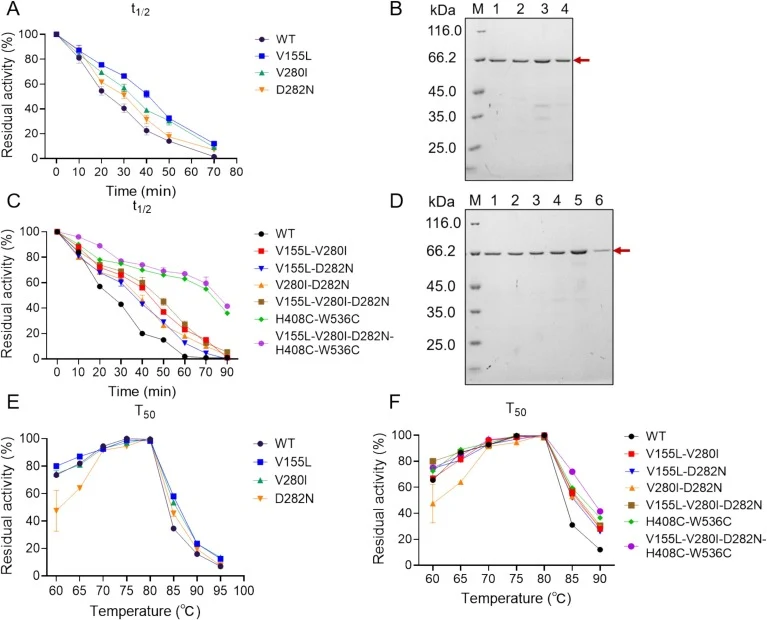
【数据】t1/2测定温度:85 °C;SDS-PAGE泳道:1 WT、2 V155L、3 V280I、4 D282N;组合类型:环区组合、二硫键突变体
3.5 分子动力学模拟
对WT AaGBE与突变体V155L-V280I-D282N-H408C-W536C进行500 ns模拟。图6A为WT与突变体蛋白骨架原子的RMSD。图6B为WT与突变体的逐残基RMSF,蓝色箭头指示柔性位点突变(V155L、V280I、D282N),红色箭头指示二硫键相关位点。模拟结果与实验一致:突变位点柔性降低,催化三联体几何构型趋于稳定。
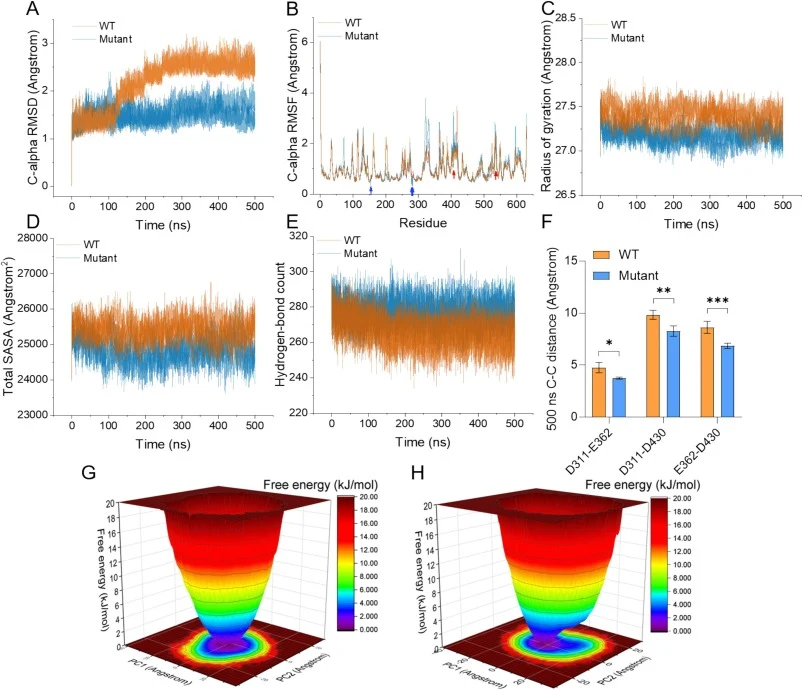
【数据】模拟时长:500 ns;对象:WT与V155L-V280I-D282N-H408C-W536C;分析指标:RMSD(骨架原子)、RMSF(逐残基);突变位点:V155L、V280I、D282N(蓝箭头)、二硫键位点(红箭头)
3.6 改性马铃薯淀粉的理化性质与体外消化性
图7展示WT与5M AaGBE改性马铃薯淀粉的理化性质与体外消化性。图7A为直链与支链淀粉含量;图7B为马铃薯淀粉的冷水溶解度(CWS);图7C为透光率;图7D为RDS、SDS与RS含量;图7E为淀粉溶液在0与1(后续时间点)的实物照片。
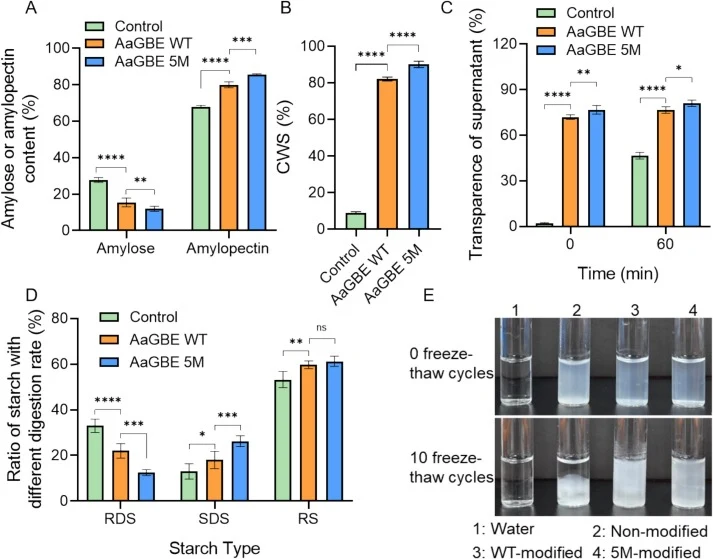
【数据】检测指标:直链/支链淀粉含量、CWS、透光率、RDS/SDS/RS含量;样品:WT与5M改性马铃薯淀粉;实物观察:0与1时间点
3.7 热稳定性演化总结
图8总结AaGBE热稳定性的逐步演化。柔性环区刚性化(V155L、V280I、D282N)与二硫键引入(H408C-W536C)相结合的逐步工程策略,使最优突变体85 °C下t1/2由25 min延长至81 min,T₅₀由83.62 °C提高至87.77 °C。
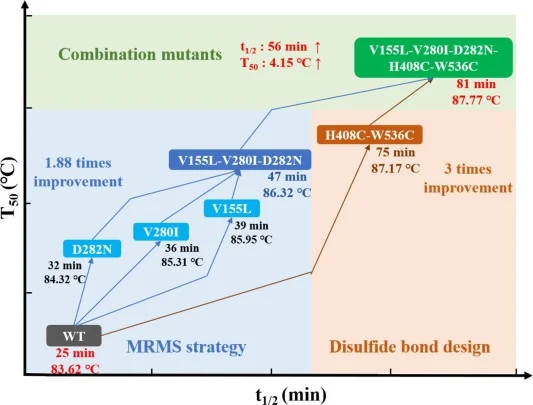
【数据】最优突变体:V155L-V280I-D282N-H408C-W536C;t1/2:25 min→81 min(85 °C,3.24倍,+56 min);T₅₀:83.62 °C→87.77 °C(+4.15 °C)
讨论与解读
本研究在无晶体结构条件下,建立了以AlphaFold2预测模型为起点、MRMS柔性环区刚性化与二硫键工程相结合的半理性策略。最优五重突变体V155L-V280I-D282N-H408C-W536C在85 °C下t1/2达81 min(为WT的3.24倍,+56 min),T₅₀达87.77 °C(较WT +4.15 °C),DSC测得熔解温度较WT提高7.29 °C。MD模拟显示,突变体在高温下热波动更小,催化三联体残基间距变化更小,从机制上解释了其更稳定、更紧凑的结构。应用于马铃薯淀粉改性时,5M突变体使支链淀粉含量提高10.5%、冷水溶解度提高8.0%、冻融稳定性增强,同时RDS含量降低9.75%。这表明5M突变体不仅热稳定性更优,还能有效定制淀粉功能、改善营养特性。所建立的"计算—实验"整合方法为无晶体学数据的热稳定酶工程提供了通用策略,对淀粉基功能食品生产具有应用前景。K285R的案例也提示,单纯基于结构能量学的稳定性预测可能忽略底物结合与空间位阻,需与活性筛选联动。
编译者解读:该研究的亮点在于把"无结构"这一现实约束转化为方法学优势——用AlphaFold2模型驱动多轮筛选,再用MD与实验闭环校验,路线对合成生物学中大量缺乏晶体结构的工业酶具有直接复用价值。局限同样明显:五重突变体仅经单点与组合层面验证,未做全因子组合或适应性景观分析;K285R的活性崩塌说明稳定性预测工具与催化功能评估之间仍存在盲区。若能将机器学习适应度预测与高通量微流控筛选耦合,这类热稳定化工程有望从"逐轮试错"走向"一次成型"。
参考来源
期刊:Food Chemistry, 2026
DOI: 10.1016/j.foodchem.2026.151576
DOI: 10.1016/j.foodchem.2026.151576