来源:Expanding the catabolic capacity of Pseudomonas putida to acetovanillone, 5-carboxyvanillate, and vanillyl glyoxylate for muconate production from kraft lignin-derived aromatics(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
硫酸盐法木质素高度缩合,难以高效转化为单一化学品。本研究以松木来源的硫酸盐法木质素为底物,采用铜催化氧化解聚(连续段塞流反应器)联合逆流萃取,获得含9种芳香单体的氧化木质素流,单体产率4.5 wt%,萃取回收率52 wt%。研究者向恶臭假单胞菌KT2440中导入10个异源基因,使其获得对乙酰香草酮、5-羧基香草酸、5-羧基香草醛、5-甲酰香草醛和香草酰乙醛酸的降解能力,构建出菌株KMM428。该菌株在真实解聚木质素混合物中利用93.6 ± 0.2 mol%的可定量芳香单体,黏康酸产率达99 ± 3 mol%,理论碳转化效率提升37.6 ± 0.1 mol%。
研究背景
制浆造纸工业产生大量木质素,本可支撑生物燃料与生物基化学品的生产。但制浆条件使硫酸盐法木质素高度缩合,其中大量碳—碳(C–C)键难以被常规解聚方法切断——传统工艺主要针对碳—氧(C–O)键。近年针对木质素C–C键断裂的研究多使用还原催化分级(RCF)得到的稳定木质素油,针对硫酸盐法木质素C–C连接的研究相对稀少。木质素解聚通常得到芳香单体与寡聚物的异质混合物,需进一步加工才能获得高值化学品。微生物通过共同中间体将多种芳香单体汇聚为单一产物(即"生物漏斗")的策略已在多种异质原料上得到验证。
研究方法
4.1 材料与试剂
所有商业试剂均按购买状态直接使用;试剂及对应供应商列于补充信息。香草酰乙醛酸按补充方法合成,结构见补充图S13。
【数据】试剂:商业试剂按购买状态使用;香草酰乙醛酸:按补充方法合成;原文未详述具体试剂清单(列于补充信息)
4.2 段塞流反应器设计
按补充图S14所示方块流程图搭建定制连续段塞流反应器。液体进料用两台Teledyne ISCO(260D)注射泵以连续模式泵送。氧气(Airgas,工业级)通过经25 °C、1,000 sccm O2校准的Teledyne质量流量控制器引入。液相与气相经Swagelok三通接头合并后流入反应环路。反应环路由盘绕的316不锈钢管(内径2 mm,反应器体积60 mL)构成,浸没于维持在210 °C的油浴(Chemglass高温硅油,CG-1100-31;最高操作温度315 °C)中。反应环路连接热交换器:将反应管穿入3/8英寸外径316不锈钢管,配水进出口,接5加仑水桶中的Vivosun潜水泵。反应器压力由配PTFE玻璃层压膜片的316不锈钢Equilibar背压调节器维持。
【数据】反应器:316不锈钢管;内径:2 mm;反应器体积:60 mL;油浴温度:210 °C;油浴最高操作温度:315 °C;氧气流量控制器校准:25 °C、1,000 sccm O2
4.3 松木硫酸盐法木质素的铜催化氧化
将2.68 kg湿木质素(含水率33%;干木质素1.79 kg)加入28.04 kg 2 M NaOH溶液,配成30.72 kg木质素进料,约合干基6 wt%木质素。将CuSO4·5H2O(8.04 g,32.2 mmol)溶于10 mL去离子水,在顶置搅拌器连续搅拌下加入木质素溶液以确保混合均匀。随后溶液与氧气共进段塞流反应器:液体流速5 mL/min,氧气流速360 mL/min,背压311 psi。反应器在段塞流状态下运行,停留时间20.3 s。以理想化聚松柏醇的木质素重复单元分子量196.2 g/mol计算相对摩尔流速,估算O2/木质素摩尔比为9.0。反应器先用去离子水热平衡,之后将进料切换为木质素储液,于210 °C连续处理89.5 h。所得本体溶液在持续机械搅拌下用浓硫酸少量多次酸化至pH 2,每次加入后待气泡平息再加。深色沉淀用粗筛去除。所得溶液留存用于分析与后续萃取。
【数据】木质素进料:30.72 kg;湿木质素:2.68 kg(含水率33%);干木质素:1.79 kg;NaOH:28.04 kg、2 M;木质素浓度:约6 wt%(干基);CuSO4·5H2O:8.04 g、32.2 mmol;去离子水:10 mL;液体流速:5 mL/min;氧气流速:360 mL/min;背压:311 psi;停留时间:20.3 s;O2/木质素摩尔比:9.0;木质素重复单元分子量:196.2 g/mol;处理温度:210 °C;处理时间:89.5 h;酸化终点:pH 2
4.4 解构木质素的分析
酸化后解构木质素的样品组成用Waters Acquity Class H QSM Plus UPLC系统测定,配BEH C18柱(1.7 μm,2.1 × 50 mm),柱温40 °C。数据采集用Empower软件,校准曲线与样品谱图通过光电二极管阵列在280 nm监测洗脱获得。内标为10 mM 1,4-二甲氧基苯。所有化合物的校准曲线通过系列稀释储备分析物溶液后进样获得(补充图S15、表S6)。洗脱采用UPLC梯度程序(表S7),流动相为0.1%甲酸水溶液(A相)与0.1%甲酸乙腈溶液(B相)。
【数据】色谱柱:BEH C18(1.7 μm,2.1 × 50 mm);柱温:40 °C;检测波长:280 nm;内标:10 mM 1,4-二甲氧基苯;流动相A:0.1%甲酸水;流动相B:0.1%甲酸乙腈
4.5 逆流萃取器设计
按补充图S16搭建逆流萃取器。玻璃部件由威斯康星大学麦迪逊分校化学玻璃实验室吹制。水相与有机相液体用两台Iwaki计量泵(型号EZBD1)泵送。泵通过PharMed® BPT管连接玻璃混合/沉降腔。柱内用Caframo机械搅拌器搅拌,搅拌器接32英寸不锈钢杆,杆上交替装配5个叶轮与6个圆盘。
【数据】泵:Iwaki EZBD1计量泵×2;搅拌杆:32英寸不锈钢;叶轮:5个;圆盘:6个;原文未详述转速(见4.6)
4.6 解构木质素的分离与凝胶渗透色谱
上述酸化解构木质素溶液用逆流萃取器萃取,乙酸乙酯与水相进料流速均为15 mL/min,搅拌速率800 rpm。收集乙酸乙酯萃取液,用Across International 5 L旋转蒸发仪浓缩。以初始木质素底物计,获得8.11 wt%的分离氧化木质素。所得解构木质素中的芳香单体在生物转化前按下文所述定量。分析型GPC在Shimadzu Prominence LC20上进行,配光电二极管阵列检测器(SPD-M20A)。分离用PSS PolarSil Linear S柱(7.8 mm ID × 30 cm L × 30 μm粒径),柱温箱50 °C,0.1 M溴化锂(LiBr)的N,N-二甲基甲酰胺(DMF)溶液以0.5 mL/min流洗40 min。样品配为0.33 mg/mL木质素溶液(溶剂为0.1 M LiBr的DMF溶液)。分子量分布在λ = 270 nm下用PSS聚苯乙烯ReadyCal标准品套装M(p) 474–2,520,000 Da(P/N PSS-pskitr4;PSS-Polymer Standards Service,美国马萨诸塞州阿默斯特)与乙酰香草酮(166 Da)校准。
【数据】萃取流速:乙酸乙酯15 mL/min、水相15 mL/min;搅拌速率:800 rpm;旋转蒸发仪:5 L;分离氧化木质素得率:8.11 wt%(以初始木质素计);GPC柱温:50 °C;流动相:0.1 M LiBr的DMF溶液;流速:0.5 mL/min;运行时间:40 min;样品浓度:0.33 mg/mL;检测波长:270 nm;校准标准品范围:474–2,520,000 Da;校准小分子:乙酰香草酮166 Da
4.7 细菌培养用芳香底物的制备
依研究需要,芳香化合物溶于乙醇、DMSO或水。以乙醇为共底物时,乙酰香草酮、香草酸和乙酰丁香酮分别以0.5 M、0.5 M和0.25 M溶于乙醇(数据见图2c、d)。芳香物单独作为唯一碳源(图2b、图3–4数据)或与葡萄糖共喂(图5b、图S10、S11数据)的研究中,芳香物溶于DMSO,浓度0.25–2 M。最终培养基中DMSO浓度不超过1% v/v。需说明:乙酰丁香酮在乙醇中溶解度有限,5-羧基香草酸与5-羧基香草醛在DMSO中溶解度有限,故其喂料浓度低于其他芳香物。在KMM428将模拟混合物或氧化木质素中的芳香物转化为黏康酸的最后一项研究中(图5c–e数据),氧化木质素以50 mg/mL溶于水,用4 M NaOH缓慢调pH至中性。所得溶液组成按4.10节所述用超高效液相色谱-二极管阵列检测(UHPLC-DAD)测定(图1b)。模拟混合物中的芳香物同样以与水相氧化木质素溶液相同的浓度溶于水,用4 M NaOH缓慢调至中性。
【数据】乙醇共底物浓度:乙酰香草酮0.5 M、香草酸0.5 M、乙酰丁香酮0.25 M;DMSO溶解浓度范围:0.25–2 M;最终DMSO上限:1% v/v;氧化木质素溶解浓度:50 mg/mL;pH调节剂:4 M NaOH;终点pH:中性
4.8 质粒与菌株构建
本研究所用质粒、寡核苷酸与菌株列于表1、表S2–S4。所用合成DNA序列列于表S5。异源编码序列用Integrated DNA Technologies(美国)密码子优化工具针对恶臭假单胞菌优化。合成核糖体结合位点用Salis RBS计算器设计(Cetnar and Salis, 2021;Reis and Salis, 2020)。质粒或购自Twist Bioscience(美国),或用标准方案克隆。简言之,PCR用Q5(NEB)进行,质粒构建用NEBuilder HiFi DNA Assembly(NEB)。构建后质粒序列经Plasmidsaurus确认。恶臭假单胞菌KT2440工程菌株通过同源重组(Johnson and Beckham, 2015;Schäfer et al., 1994)或丝氨酸重组酶辅助基因组工程(SAGE)(Elmore et al., 2017;Huenemann et al., 2025)按此前所述方法生成。基因缺失与插入经菌落聚合酶链式…(原文节选至此)
【数据】密码子优化:针对P. putida;PCR酶:Q5(NEB);组装:NEBuilder HiFi DNA Assembly(NEB);质粒测序:Plasmidsaurus;基因组改造:同源重组或SAGE;原文未详述PCR程序参数
研究结果
2.1 从松木硫酸盐法木质素生成芳香单体
我们近期报道,铜催化氧化可切断从杨木与松木RCF所得木质素衍生寡聚物中的C–C键,产生松木木质素氧化裂解的典型单体——香草酸、香草醛和乙酰香草酮,以及5-羧基香草醛和5-甲酰香草醛,后两者是β-5键断裂或硫酸盐法木质素5位其他缩合连接断裂的产物。受该氧化技术从RCF寡聚物C–C键断裂生成生物可利用单体这一成功的启发,本研究将铜催化氧化应用于软木硫酸盐法木质素,采用段塞流反应器实现连续氧化(实验细节见4.2与4.3节)。凝胶渗透色谱(GPC)与超高效液相色谱(UPLC)显示,聚合态木质素氧化后分子量急剧下降,转化为单体产物与低分子量寡聚物(图S1、S2)。本研究所用条件得到4.5 wt%的单体产率(以克单体/克硫酸盐法木质素计;表S1)。酸化、乙酸乙酯逆流萃取除盐、旋转蒸发除溶剂后,获得氧化木质素混合物,组成17 wt%(克单体/克氧化木质素;图1b)。可定量的木质素衍生芳香物包括香草醛(45 mol%,以mol单体/∑mol单体计)、香草酸(8 mol%)、乙酰香草酮(8 mol%)、5-羧基香草醛(13 mol%)、5-羧基香草酸(8 mol%)、5-甲酰香草醛(5 mol%)、4-羟基苯甲醛(5 mol%)和4-羟基苯甲酸(2 mol%)。我们还鉴定出香草酰乙醛酸为单体产物——此化合物在此前研究中未定量——占单体组分的5 mol%。鉴于氧化木质素中相当比例的芳香单体是此前工程化恶臭假单胞菌KT2440菌株无法转化为原子经济产物的,我们着手通过代谢工程提高KT2440的碳转化效率。
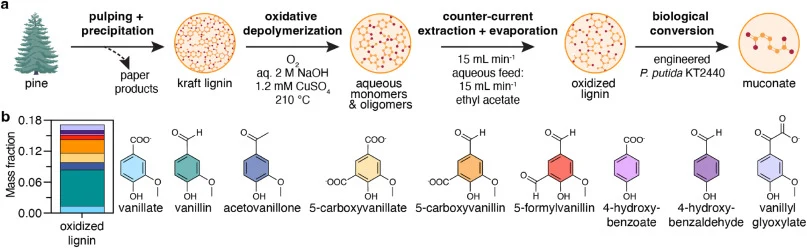
【数据】单体产率:4.5 wt%(g单体/g硫酸盐法木质素);氧化木质素组成:17 wt%(g单体/g氧化木质素);香草醛:45 mol%;香草酸:8 mol%;乙酰香草酮:8 mol%;5-羧基香草醛:13 mol%;5-羧基香草酸:8 mol%;5-甲酰香草醛:5 mol%;4-羟基苯甲醛:5 mol%;4-羟基苯甲酸:2 mol%;香草酰乙醛酸:5 mol%
2.2 acv与vce途径的异源表达使菌株在补充碳源与能源存在时利用乙酰香草酮
我们首先改造乙酰香草酮的利用能力。乙酰香草酮是多种细菌的已知底物,但KT2440不能利用(图S3)。使KT2440利用乙酰香草酮对建立稳健生物过程尤为重要,因为乙酰香草酮浓度达5 mM及以上会抑制细胞生长(图S4)。Lalande等近期在工程化Rhodococcus aromaticivorans RHA1(原Rhodococcus jostii RHA1)中比较了来自Sphingobium lignivorans SYK-6、Rhodococcus rhodochrous GD02和Actinomadura macra NBRC-14102的三条乙酰香草酮降解途径。作者发现三个来源的降解基因均能使乙酰香草酮转化为预期途径中间体,其中GD02的hpe基因转化最快。但SYK-6途径是唯一被证明对S型类似物乙酰丁香酮有活性的途径。乙酰丁香酮虽不存在于松木硫酸盐法木质素流中,却是杨木来源氧化木质素流的常见产物。因此我们选择SYK-6的乙酰香草酮/乙酰丁香酮途径(图2a),含acvABCDEF与vceAB基因,以便兼容G型与S型木质素流。这些基因共同将乙酰香草酮和乙酰丁香酮分别转化为香草酸和丁香酸:acvAB编码4-乙酰基-2-甲氧基苯基磷酸(AVP)/4-乙酰基-2,6-二甲氧基苯基磷酸(ASP)合成酶,acvCDE编码生物素依赖型羧化酶,acvF编码AVP/ASP磷酸酶,vceA编码乙酰辅酶A(乙酰-CoA)依赖的香草酰乙酸(VAA)/3-(4-羟基-3,5-二甲氧基苯基)-3-氧代丙酸(SAA)转化酶,vceB编码香草酰-CoA/丁香酰-CoA硫酯酶。我们将8个SYK-6基因拆分到三个合成操纵子(fpvA::Ptac:vceA SYK-6:vceB SYK-6:acvF SYK-6、PP_5042::Ptac:acvAB SYK-6和PP_5322::Ptac:acvCDE SYK-6),各由强组成型tac启动子(Ptac)驱动。每个基因均针对恶臭假单胞菌密码子优化(表S5),置于强合成核糖体结合位点(RBS)之后。合成操纵子经无标记同源重组整合到野生型KT2440染色体,生成菌株KMM022(表1、表S3)。在含5 mM乙酰香草酮或乙酰丁香酮(溶于DMSO,KT2440不能代谢DMSO)的M9基本培养基中微孔板培养时,KMM022不能以任一底物为唯一碳源与能源生长,尽管其能如预期在香草酸上生长(图2b)。然而,以0.4 mM乙酰香草酮或乙酰丁香酮与4 mM香草酸(溶于乙醇,终浓度2% v/v)共喂时,摇瓶中48 h内实现完全利用(图2c–d、图S5)。为在更高底物负载下表征菌株,我们将乙酰香草酮与乙酰丁香酮浓度分别提高至4 mM和2 mM,使乙酰香草酮/香草酸与乙酰丁香酮/香草酸的摩尔比分别约为1:1和1:2。此时72 h后,菌株仅利用所供乙酰香草酮的50 ± 5 mol%和乙酰丁香酮的55.8 ± 0.3 mol%(图2e–f、图S5)。相比之下,所供香草酸在24 h内被全部消耗,提示需进一步改良菌株对乙酰香草酮与乙酰丁香酮的利用。此前已观察到,强组成型表达编码Rieske非血红素铁单加氧酶的vanAB并敲除分解代谢物阻遏控制基因crc,可改善在香草酸与丁香酸上的生长。我们据此推测vanAB过表达与crc缺失会改善乙酰香草酮与乙酰丁香酮利用,为此构建菌株KMM091(KMM022 Δcrc:Ptac:vanAB)验证。KMM091不能以乙酰香草酮或乙酰丁香酮为唯一碳源生长(图S6a)。Hall等近期报道,来自Novosphingobium aromaticivorans DSM12444的多芳香激酶MarK的突变使菌株能以乙酰香草酮为唯一生长底物。为评估该酶是否同样改善KT2440的乙酰香草酮利用,我们以marK E16K替换acvAB(菌株MG084),但该改造同样未能使菌株以乙酰香草酮为唯一碳源与能源生长(图S6b)。对香草酸形式补充碳源与能源的需求可能提示:乙酰香草酮与乙酰丁香酮不能充分激活所需天然基因(如乙酰香草酮与乙酰丁香酮转运蛋白)的表达,而香草酸可以;或仅仅需要额外能量。值得注意的是,已报道的乙酰香草酮与乙酰丁香酮降解途径每摩尔底物需3 mol ATP,其中第二个耗ATP步骤可能因非生物脱羧而无谓循环(图2a)。为评估这些可能性,我们向KMM022提供5 mM乙酰香草酮与多种谷…(原文节选至此)
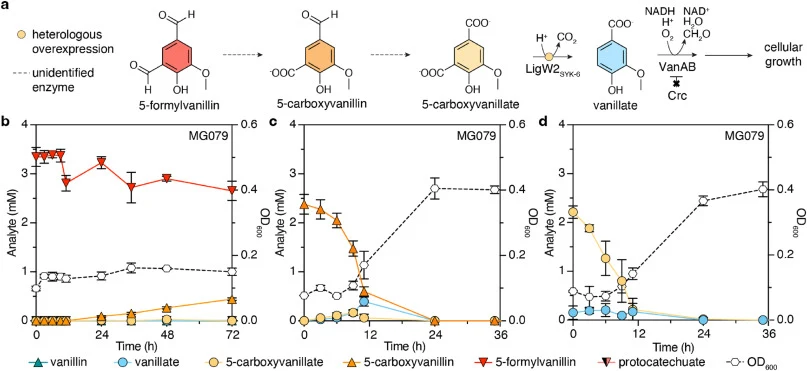
【数据】乙酰香草酮生长抑制浓度:≥5 mM;微孔板唯一碳源试验:5 mM乙酰香草酮或乙酰丁香酮;共喂试验:0.4 mM乙酰香草酮/乙酰丁香酮 + 4 mM香草酸,乙醇终浓度2% v/v;共喂完全利用时间:48 h;高负载试验:乙酰香草酮4 mM、乙酰丁香酮2 mM;摩尔比:乙酰香草酮/香草酸约1:1、乙酰丁香酮/香草酸约1:2;72 h利用率:乙酰香草酮50 ± 5 mol%、乙酰丁香酮55.8 ± 0.3 mol%;香草酸消耗时间:24 h内全部;途径ATP需求:3 mol ATP/mol底物
2.3 苯基乙醛酸脱羧酶同源物赋予KT2440香草酰乙醛酸利用能力
(本节内容对应图3,原文节选未提供该节正文,以下仅列图注信息)
图3显示,三种焦磷酸硫胺素(TPP)依赖的苯基乙醛酸脱羧酶同源物——来自Pseudomonas putida的MdlC(原Arthrobacter siderocapsulatus;PP)、来自Pseudomonas stutzeri的DpgB等——赋予KT2440对香草酰乙醛酸的利用能力。
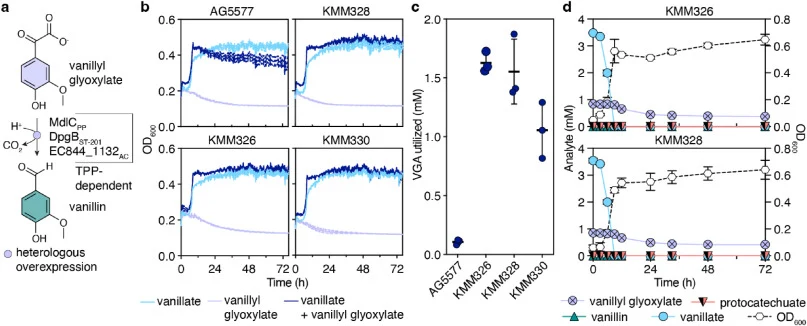
【数据】原文节选未提供本节正文与具体数值;酶类:TPP依赖苯基乙醛酸脱羧酶同源物;来源:MdlC(P. putida,原A. siderocapsulatus)、DpgB(P. stutzeri);原文未详述酶活数值
2.4 KMM428从松木来源解聚硫酸盐法木质素生产黏康酸
(本节内容对应图4,原文节选未提供该节正文,以下仅列图注信息)
图4展示乙酰香草酮(AV)、香草酰乙醛酸(VGA)、香草醛(Vn)、香草酸(VA)、5-甲酰香草醛(5FVn)、5-羧基香草醛(5CVn)、5-羧基香草酸(5CVA)、4-羟基…等底物的异源与天然代谢路径。
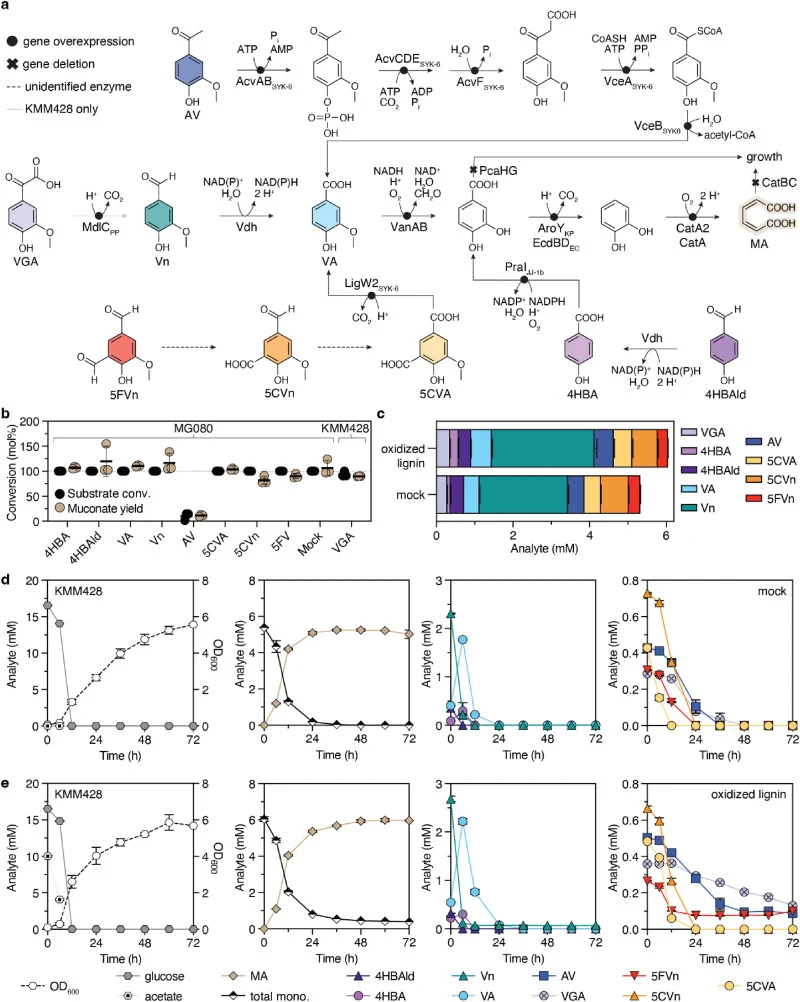
【数据】原文节选未提供本节正文与具体数值;底物:AV、VGA、Vn、VA、5FVn、5CVn、5CVA、4-羟基…(原文节选截断);原文未详述产量数值
讨论与解读
本研究证明,铜催化氧化解聚可从松木硫酸盐法木质素生成生物可利用的芳香单体,并经工程化恶臭假单胞菌KT2440高效转化为黏康酸。所构建的KMM428是单一工程菌株,能利用全部9种已鉴定芳香单体(4-羟基苯甲酸、4-羟基苯甲醛、香草醛、香草酸、乙酰香草酮、5-羧基香草酸、5-羧基香草醛、5-甲酰香草醛和香草酰乙醛酸)生产黏康酸。总体而言,KMM428将该过程的生物转化率拓展37.6 ± 0.1 mol%,在氧化木质素流中基于可定量单体实现99 ± 3 mol%的黏康酸产率。更广泛地说,本工作将碳生物转化拓展到此前仅针对上述化合物子集的研究之外。平行工作中,Rhodococcus aromaticivorans RHA1被改造为从类似松木硫酸盐法木质素流将香草醛、香草酸和乙酰香草酮转化为黏康酸;Lalande等采用补料分批策略克服原儿茶酸积累造成的初始黏康酸产率限制,在静息细胞中达到99 mol%的黏康酸产率,但原儿茶酸积累仍限制该过程,只是程度较轻。相比之下,本研究开发的KT2440菌株…(原文节选至此)
编译者解读:该研究的亮点在于"化学解聚—生物漏斗"的接口设计:铜催化氧化专门切断硫酸盐法木质素中难处理的C–C键,把β-5等缩合连接打开,生成可被微生物识别的单体谱;再以10个异源基因一次性补齐KT2440的代谢缺口。方法学上,连续段塞流反应器保证了氧化条件的可放大性,而逆流萃取则解决了盐与溶剂的分离问题。局限也很明显:单体总产率仅4.5 wt%,乙酰香草酮利用仍依赖共底物,且途径每摩尔底物消耗3 mol ATP。未来若能把ATP消耗与产物外排耦合,或引入更高效的激酶变体,这条路线在经济性上才更具竞争力。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102572
DOI: 10.1016/j.ymben.2026.102572