来源:Semi-rational engineering of linoleic acid isomerase improves catalytic efficiency and substrate affinity for conjugated linoleic acid biosynthesis(Enzyme and Microbial Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
共轭亚油酸(CLA)是食品与制药领域的重要功能化合物,其生物合成依赖亚油酸异构酶(LAI)。天然LAI催化效率低、底物亲和力弱,制约了CLA的工业化生产。本研究以痤疮丙酸杆菌LAI为对象,采用半理性设计策略,通过同源建模、分子对接与虚拟氨基酸突变锁定五个候选位点,经重叠延伸PCR构建突变体并实验验证,获得表达量提升4.56倍、酶活提升1.95倍的G36R突变体,并系统表征了其酶学性质与动力学参数。
研究背景
共轭亚油酸是亚油酸的位置与几何异构体,含18个碳原子和两个共轭双键,主要异构体为顺-9,反-11-CLA与反-10,顺-12-CLA。CLA被广泛添加于功能食品、膳食补充剂和食品添加剂中,具有抗氧化、免疫调节、抗癌、抗动脉粥样硬化、减脂和抗炎等活性,天然来源包括反刍动物肉类与乳制品。CLA可经化学法或生物法合成。化学合成成本低、速度快、适合大规模生产,但产物为异构体混合物,需要特定异构体时须额外纯化。尽管CLA已获美国FDA“一般认为安全(GRAS)”认定,生物合成法——利用亚油酸异构酶或表达LAI的微生物——因选择性高、反应条件温和、分离纯化相对简单而日益受到青睐。然而,微生物生产面临细胞限制导致的酶活性低、表达量不足等问题,催化效率不够。提升LAI的底物亲和力、催化效率与可溶性表达水平,是实现高效CLA生物合成的关键。
研究方法
2.1 菌株、质粒与培养条件
本课题组前期构建的P229菌株(携带lai-p基因)划线接种于含100 μg/mL氨苄青霉素(Amp)的LB琼脂平板。观察菌落形态后,挑取单菌落接种于20 mL含Amp的LB培养基中,于37 ℃、160 rpm培养12 h。使用质粒提取试剂盒(Aidlab,北京,中国)提取质粒。采用表S1所示引物经PCR扩增lai-p基因片段。质粒构建使用pMD18-T(TaKaRa Bio Inc.,大连,中国)、大肠杆菌DH5α与BL21(DE3)(鼎国生物技术有限公司,北京,中国)。
【数据】Amp浓度:100 μg/mL;培养基体积:20 mL;温度:37 ℃;转速:160 rpm;时间:12 h;菌株:P229、E. coli DH5α、BL21(DE3);质粒:pMD18-T
2.2 引物设计与重叠延伸PCR
以P229基因组为模板设计突变引物(表S1),由生工生物工程(上海)股份有限公司合成。酶切位点以斜体标注,突变位点以粗体标注。PCR条件详见表S2与表S3。
【数据】模板:P229基因组;引物来源:生工生物(上海);PCR条件:原文详见表S2、表S3
2.3 同源建模与分子对接
将LAI序列数据与痤疮丙酸杆菌亚油酸异构酶(LAI)基因(NCBI登录号:AX062088.1)进行同源分析。通过Discovery Studio 4.5(Accelrys Inc.,圣迭戈,CA,美国)中的“Search Sequences by Similarity”模块鉴定同源模板,依据E值选择最优模板。使用Align Sequence to Templates模块进行序列比对,通过Create Homology Models模块构建LAI三维结构,并优化侧链与几何属性。模型质量依据PDF Total Energy、DOPE评分、Ramachandran图、Profile-3D分析评价,并通过PROSA服务器(https://prosa.services.came.sbg.ac.at/prosa.php)验证。亚油酸(CAS:60–33–3)三维结构从PubChem获取,经优化与能量最小化后用于分子对接。建模的LAI结构用Prepare Protein工具处理,包括清理、残基修复与极性氢添加。鉴定蛋白活性位点,选取排名最高的结合球作为对接中心。通过LibDock算法对接,依据LibDock评分确定最优构象。结合能与蛋白-配体相互作用用PyMOL分析并可视化。
【数据】模板库:Discovery Studio 4.5;NCBI登录号:AX062088.1;LA CAS号:60–33–3;对接算法:LibDock;可视化软件:PyMOL;评价指标:PDF Total Energy、DOPE、Ramachandran、Profile-3D、PROSA
2.4 虚拟氨基酸突变
在Discovery Studio(DS)中以CHARMm力场分析LAI-LA对接复合物。选取距亚油酸4 Å以内的残基进行氨基酸突变。使用Calculate Binding Energy Change(Mutation Energy)工具将残基突变为丙氨酸(ALA),依据突变效应对蛋白-配体亲和力的影响将位点分为稳定化与去稳定化两类。鉴定的关键残基替换为19种标准氨基酸,选取结合能变化< -0.5 kcal/mol的突变为最优位点。
【数据】距离阈值:4 Å;力场:CHARMm;替代氨基酸数:19种标准氨基酸;筛选阈值:结合能变化< -0.5 kcal/mol
2.5 突变菌株构建
基于P229的lai-p基因序列设计五对突变引物(表S1)。重叠PCR扩增目标片段,连接入pMD18-T,转化大肠杆菌DH5α,经PCR筛选。验证的克隆进行测序。使用pCold-SUMO构建重组质粒(pCold-lai-pG36R、pCold-lai-pG7Q、pCold-lai-pY319W、pCold-lai-pE392R、pCold-lai-pF399W),转化大肠杆菌BL21(DE3)。pCold-SUMO表达载体含SUMO可溶性标签与6×His标签,便于后续镍柱亲和层析纯化。基于氨基酸序列分析,野生型与突变型LAI蛋白理论分子量约为55 kDa。
【数据】突变引物:5对;载体:pMD18-T、pCold-SUMO;宿主:E. coli DH5α、BL21(DE3);标签:SUMO、6×His;理论分子量:约55 kDa;突变体:G36R、G7Q、Y319W、E392R、F399W
2.6 突变酶表达与活性测定
#### 2.6.1 粗酶液制备与蛋白表达
重组菌株(P229、pCold-lai-pG36R、pCold-lai-pG7Q、pCold-lai-pY319W、pCold-lai-pE392R、pCold-lai-pF399W)划线于含Amp的LB琼脂平板,37 ℃培养14 h。单菌落接种于5 mL含Amp的LB中,37 ℃、160 rpm过夜培养获得种子液。随后取1 mL种子液转接至100 mL含Amp的LB培养基,培养至OD600约0.6(对数期),以0.1 mmol/L IPTG于16 ℃诱导表达18 h。离心收集细胞(10,000 rpm,10 min,4 ℃),重悬于PBS至浓度0.05 g/mL,涡旋使菌体充分溶解。超声裂解(400 W,开/关各5 s,共15 min),4 ℃、10,000 rpm离心30 min。上清液收集为LAI粗酶液。粗酶液使用AKTApure 25 M1系统(Cytiva,马尔伯勒,MA,美国)与His Trap HP柱进行亲和层析纯化。柱子用纯水冲洗并以10倍柱体积以上Binding buffer平衡。上样后,以1 mL/min流速用Binding buffer线性洗脱去除非目标蛋白,再以相同流速用Elution buffer线性洗脱收集目标蛋白。纯化的LAI蛋白经超滤浓缩。蛋白浓度用Lowry蛋白测定试剂盒(Solarbio,北京,中国)测定以确定上样量。SDS-PAGE在恒压条件下进行:80 V 20 min(浓缩胶),120 V 60 min(分离胶)。SDS-PAGE后,含目标蛋白的凝胶转印至PVDF膜1.5 h。膜用His-Tag抗体(一抗)与山羊抗兔IgG-HRP(二抗)孵育以确保充分结合。随后进行比色检测,膜上目标蛋白区域显示明显颜色变化。
【数据】培养温度:37 ℃;培养时间:14 h;种子液体积:5 mL;转接体积:1 mL;诱导OD600:约0.6;IPTG浓度:0.1 mmol/L;诱导温度:16 ℃;诱导时间:18 h;离心条件:10,000 rpm、10 min、4 ℃;重悬浓度:0.05 g/mL;超声功率:400 W;超声模式:开/关各5 s、共15 min;纯化流速:1 mL/min;SDS-PAGE电压:80 V 20 min、120 V 60 min;转膜时间:1.5 h
#### 2.6.2 LAI表达量测定
重组菌株基因表达通过荧光qPCR定量,以recA基因为内参。引物(表S1)与PCR条件(表S4)见原文。反应设三个重复,测定相对表达水平。
【数据】内参基因:recA;技术重复:3次;引物与条件:原文详见表S1、表S4
#### 2.6.3 CLA产量测定
参照Liu Ying[41]与Tian Aidi[42]的方案改编。种子液制备同2.6.1节。取200 μL培养物转接至20 mL含Amp的LB,培养至OD600约0.6,以LA乳剂(终浓度0.5 mg/mL)与IPTG(终浓度50 μg/mL)诱导。37 ℃诱导4 h后,离心收集细胞(10,000 rpm,10 min,4 ℃),重悬于PBS至0.05 g/mL,冰浴超声(400 W,开/关各5 s,15 min),离心(10,000 rpm,30 min,4 ℃)收集LAI粗酶。CLA标准曲线:以正己烷配制CLA标准品(0.1 mg/mL),梯度稀释至2.5–15.0 μg/mL。测定233 nm吸光度,以吸光度对CLA浓度作图构建标准曲线。CLA产量测定:取2 mL粗酶液与1 mL LA乳剂(50 mg/mL)及2 mL 50 mM磷酸缓冲液(pH 7.0)混合,37 ℃、160 rpm孵育2 h。反应后加入6 mL正己烷,涡旋,离心(10,000 rpm,5 min,4 ℃)分离有机相。收集正己烷层,测定233 nm吸光度(OD233)。依据标准曲线计算CLA产量。
【数据】转接体积:200 μL;培养基体积:20 mL;LA终浓度:0.5 mg/mL;IPTG终浓度:50 μg/mL;诱导温度:37 ℃;诱导时间:4 h;重悬浓度:0.05 g/mL;超声功率:400 W、15 min;CLA标准品浓度:0.1 mg/mL;标准曲线范围:2.5–15.0 μg/mL;检测波长:233 nm;反应体系:2 mL粗酶+1 mL LA乳剂(50 mg/mL)+2 mL 50 mM磷酸缓冲液(pH 7.0);反应条件:37 ℃、160 rpm、2 h;萃取剂:6 mL正己烷;离心:10,000 rpm、5 min、4 ℃
#### 2.6.4 比酶活测定
一单位酶活(U)定义为每小时产生1 μg CLA的酶量。蛋白浓度测定同2.6.1节。比酶活(U·μg−1)按酶活(U·mL−1)除以蛋白浓度(μg·mL−1)计算(式1)。
式1:酶活(U/mL)= K × G / (V × T)
式中K、G、V、T分别代表酶液稀释倍数、CLA产量(μg)、酶液体积(mL)与反应时间(h)。酶活测定以总蛋白浓度归一化。
【数据】酶活定义:每小时产生1 μg CLA;计算公式:酶活=K×G/(V×T);单位:U·μg−1
2.7 突变酶与底物相互作用分析
原文该节内容在提供的节选中不完整,仅保留标题,具体方法原文未详述。
【数据】原文未详述
研究结果
3.1 LAI模型的构建与评估
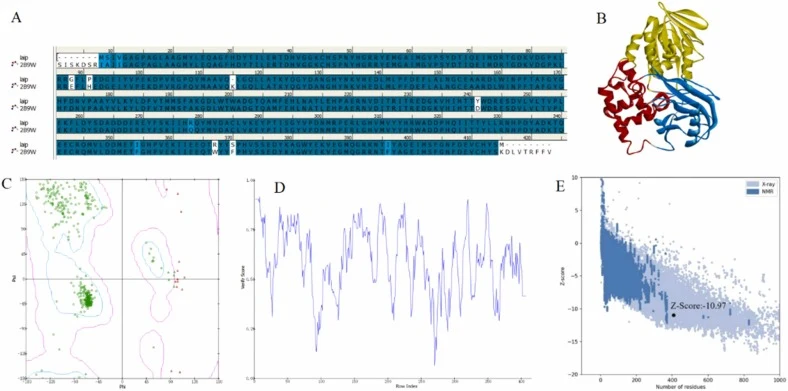
由于缺乏P229菌株LAI的精确晶体结构,我们利用DS软件中的同源建模构建其三维结构,基于氨基酸序列进行模板鉴定与序列比对。模板选择对模型质量至关重要,以序列同源性(>30%)与E值(E < 1e-5)作为可靠性指标。模板2b9w_A表现出最高序列同源性(97%)与最低E值(表1,图2A),是LAI结构建模的最优选择。构建的LAI三维结构(图2B)经多种方法验证。Ramachandran图(图2C)确认模型可靠性达99.70%,超过90%的阈值。Profile-3D分析(图2D)显示96.31%的残基评分≥ 0.20,表明结构兼容性良好;PROSA评估(图2E)给出Z值为−10.97,确认模型在能量层面的稳定性与可靠性。
【数据】序列同源性阈值:>30%;E值阈值:E < 1e-5;最优模板:2b9w_A;同源性:97%;Ramachandran可靠性:99.70%;Profile-3D合格残基比例:96.31%(评分≥0.20);PROSA Z值:−10.97
3.2 分子对接与虚拟氨基酸突变分析
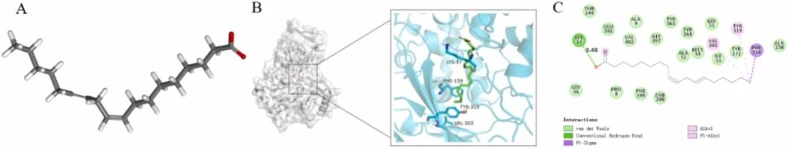
为研究LAI-LA相互作用,使用DS软件“LibDock”模块进行分子对接。生成五个对接构象(表S5),其中构象1稳定性最佳(LibDock评分:137.21;结合能:−7.60)。LA定位于LAI的疏水口袋中,形成稳定复合物(图3A)。最低结合能确认最强的受体-配体亲和力,故以该构象作为相互作用分析的基础。分子间相互作用分析(图3B、3C)显示LAI氨基酸残基与LA两端区域均有相互作用。LYS37与LA羧基之间形成氢键(键长:3.48 Å),增强蛋白构象稳定性。与VAL303、TYR319和PHE159的疏水相互作用提高配体结合特异性,而与GLY51、MET54、TYR272等残基的范德华相互作用主导结合机制。LA底物稳定结合,尤其在催化中心邻近残基附近,有利于CLA生成。对LAI-LA界面4 Å以内残基进行丙氨酸扫描突变,鉴定出15个影响酶-底物亲和力的关键残基,以结合能变化> 0.50为标志(表2)。随后的饱和突变(表3)凸显出五个改善底物亲和力的突变(G36R、G7Q、Y319W、E392R、F399W)(结合能变化< −0.50),提示催化活性增强。
【数据】对接构象数:5个;最优构象LibDock评分:137.21;结合能:−7.60;氢键:LYS37与LA羧基、键长3.48 Å;疏水残基:VAL303、TYR319、PHE159;范德华残基:GLY51、MET54、TYR272;扫描半径:4 Å;关键残基:15个(结合能变化>0.50);优选突变:5个(结合能变化<−0.50)
3.3 突变菌株构建
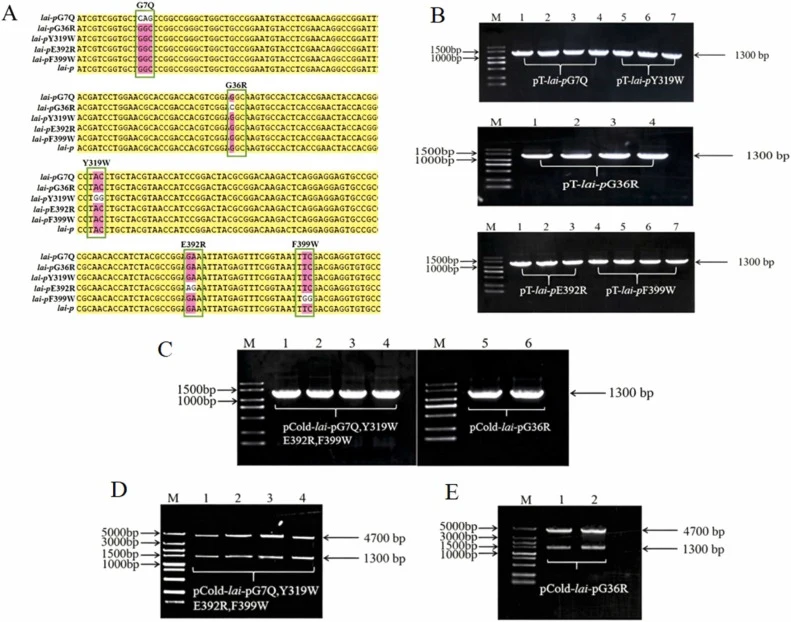
为构建lai-p突变片段,设计重叠延伸PCR引物,随后克隆入pMD18-T载体。1300 bp目标条带(图4B)确认构建成功,测序验证无脱靶突变(图4A)。突变质粒亚克隆入pCold-SUMO载体,转化大肠杆菌BL21(DE3),经PCR与酶切验证(图4C-4E)。成功构建五株单点突变菌株——pCold-lai-pG36R、pCold-lai-pG7Q、pCold-lai-pY319W、pCold-lai-pE392R、pCold-lai-pF399W。
【数据】目标条带长度:1300 bp;载体:pMD18-T、pCold-SUMO;宿主:BL21(DE3);突变菌株数:5株
3.4 重组LAI突变体的表达、酶活测定与优势菌株纯化
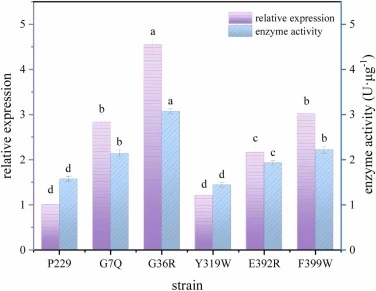
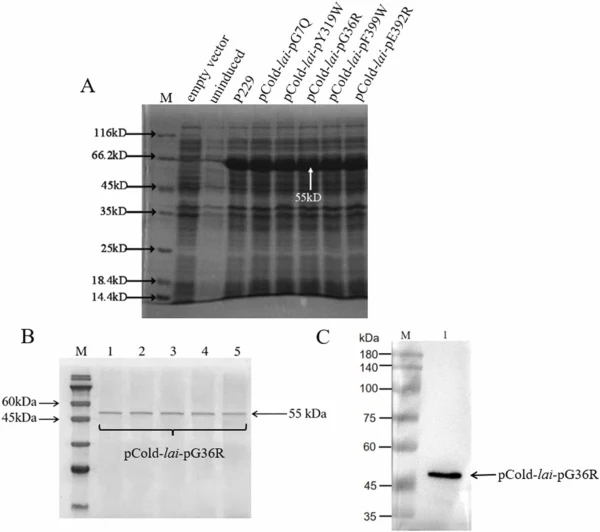
通过定量五个LAI突变体(G36R、G7Q、Y319W、E392R、F399W)与野生型(WT)P229菌株的基因表达与酶活,研究突变体表达水平与催化活性的关系,随后验证蛋白表达并纯化表现最优的突变体。定量PCR分析显示所有突变体LAI表达水平均高于WT,其中pCold-lai-pG36R表达最高(WT的4.56倍)。比酶活呈相似趋势,pCold-lai-pG36R活性最高(WT的1.95倍),其次为pCold-lai-pF399W(1.41倍)、pCold-lai-pG7Q(1.35倍)与pCold-lai-pE392R(1.22倍)。pCold-lai-pY319W突变体表达升高但活性无显著变化,可能源于蛋白错误折叠或构象破坏(图5)。经IPTG诱导与SDS-PAGE确认蛋白表达(图6A),所有菌株在55 kDa处显示强条带,与LAI预期分子量一致。pCold-lai-pG36R突变体条带最强,与其最高表达水平相符,被选用于后续镍亲和层析(图6B)。Western blot(图6C)通过His标签验证目标蛋白的纯度与特异性,确保其适用于详细酶学分析。
【数据】表达量:pCold-lai-pG36R为WT的4.56倍;比酶活:G36R为WT的1.95倍、F399W为1.41倍、G7Q为1.35倍、E392R为1.22倍;Y319W:表达升高但活性无显著变化;分子量:55 kDa
3.5 突变酶与底物相互作用分析
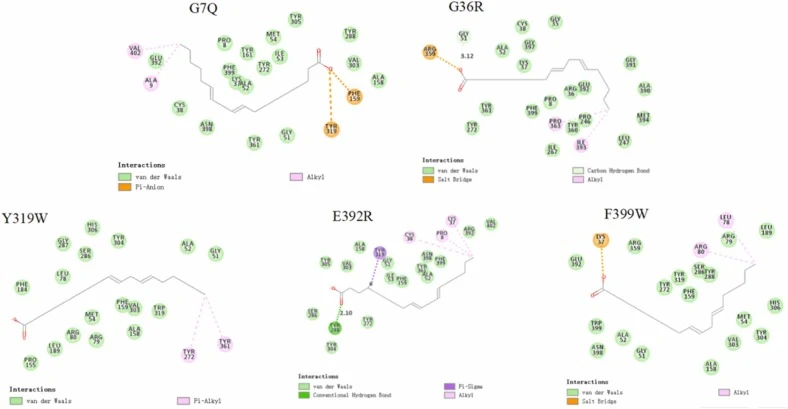
突变酶与亚油酸的二维相互作用模型(图7)揭示了影响活性的分子变化。突变体G7Q、G36R与F399W促进盐桥形成,增强结合稳定性与酶学性能。G36R突变体将氢键位点改变至GLY51(3.12 Å),E392R将键合转移至TYR288(2.10 Å),键长缩短,强化酶-底物相互作用。相比之下,Y319W消除了氢键且未能形成新盐桥,破坏结合稳定性。这种相互作用的丧失可能引起错误折叠或结构不稳定,最终损害催化活性。
【数据】G36R氢键:与GLY51、键长3.12 Å;E392R氢键:与TYR288、键长2.10 Å;盐桥形成:G7Q、G36R、F399W;Y319W:氢键消除、无新盐桥
3.6 pCold-lai-pG36R的酶学性质与动力学表征
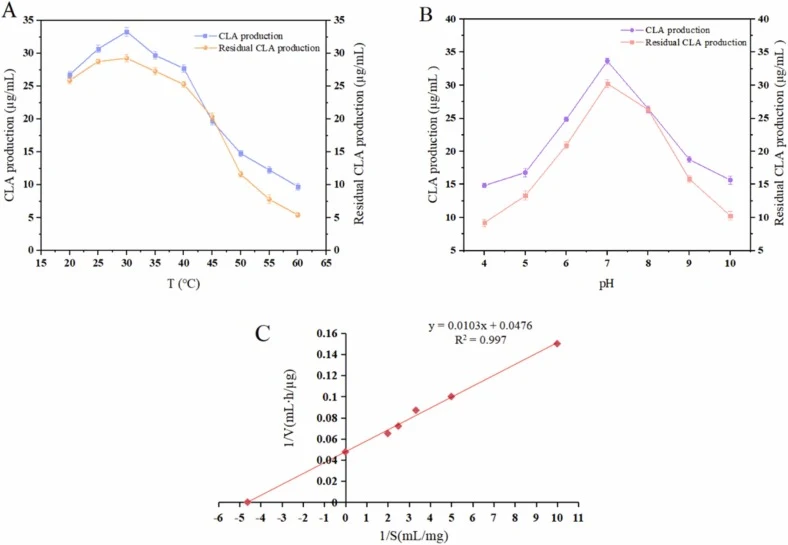
pCold-lai-pG36R突变体在30 ℃时催化活性最佳,CLA最高产量为33.32 ± 0.69 μg/mL,残余CLA产量峰值为29.79 ± 0.56 μg/mL,更高温度下显著下降(图8A)。60 ℃时CLA产量降至9.75 ± 0.51 μg/mL,显示高度热敏感性。活性最适pH为7.0,残余CLA产量为30.26 ± 0.62 μg/mL;偏离该pH导致活性急剧下降,可能源于对酶结构关键的电离状态改变(图8B)。双倒数作图(图8C)计算的动力学参数显示米氏常数(Km)为0.22 mg/mL,最大反应速率(Vmax)为21.41 μg/mL·h。低Km值表明高底物结合亲和力,凸显突变体增强的催化性能。
【数据】最适温度:30 ℃;最高CLA产量:33.32 ± 0.69 μg/mL;残余CLA峰值:29.79 ± 0.56 μg/mL;60 ℃产量:9.75 ± 0.51 μg/mL;最适pH:7.0;pH 7.0残余CLA:30.26 ± 0.62 μg/mL;Km:0.22 mg/mL;Vmax:21.41 μg/mL·h
讨论与解读
本研究采用计算模拟与实验验证相结合的半理性设计策略,鉴定出底物亲和力与酶活显著提升的LAI突变体pCold-lai-pG36R。AI驱动的蛋白结构预测与分子对接技术被证明能有效揭示酶-底物相互作用。研究通过同源建模构建突变型亚油酸异构酶三维结构,并验证了模型的结构与能量完整性。对接分析显示底物通过范德华力、氢键与疏水相互作用稳定结合于LAI疏水腔,THR244、GLU392、LYS37与TYR319被鉴定为结合关键残基,构成后续突变的结构基础。G36R酶活增强可能源于突变诱导的结构变化:引入带正电的精氨酸与LA羧基末端形成离子盐桥,为底物提供静电锚定;庞大的精氨酸侧链限制底物在活性位点的定位并提升催化效率。既往研究表明此类精氨酸替换可增强工程酶的电荷相互作用与热稳定性。同时,底物结合模式发生关键重排:氢键供体位点发生转移。
编译者解读:该研究将同源建模—对接—虚拟突变—湿实验验证串成闭环,用较小的突变库(5个位点)换来表达量与酶活的双提升,方法经济且可复制。G36R的增益主要来自盐桥与氢键几何优化,说明活性口袋边缘的静电锚定是LAI改造的高杠杆点。局限在于热稳定性未同步改善(60 ℃产量骤降),且单酶可溶体系在工业底物浓度下的表现尚待验证;后续可叠加刚性化突变或定向进化,兼顾亲和力与稳定性。
参考来源
Yao K. Semi-rational engineering of linoleic acid isomerase improves catalytic efficiency and substrate affinity for conjugated linoleic acid biosynthesis. Enzyme and Microbial Technology, 2027. DOI: 10.1016/j.enzmictec.2026.110982
DOI: 10.1016/j.enzmictec.2026.110982