来源:Improving methanol tolerance and utilization of Saccharomyces cerevisiae via SCRaMbLE and systematic metabolic engineering(Biochemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
甲醇是极具潜力的C1生物制造原料,但其细胞毒性与微生物固有耐受性不足长期制约其工业应用。本研究以携带合成染色体V和X的酿酒酵母SynV&X为底盘,用"与门"开关PCRE4精确控制SCRaMbLE重排,经6小时诱导与10%甲醇胁迫筛选获得耐受菌株SynV&X-18,72小时生物量较对照提高0.6倍。基因组与转录组分析锁定RAD4缺失及丝氨酸、精氨酸代谢的关键作用,过表达SER3、CAR1分别提高生物量0.23倍与0.19倍;导入XuMP甲醇同化途径后,甲醇利用率再提高0.73倍。
研究背景
甲醇来源广、价格低、水溶性强且能量密度高,是生物技术领域颇具吸引力的C1原料。甲烷营养型细胞工厂的构建为利用C1资源提供了可行路径,有望缓解可持续能源与环境污染等全球性问题。微生物可将甲醇转化为蛋白及多种化学品。然而,甲醇生物转化的工业性能指标仍远低于应用要求。限制主要来自两方面:一是甲醇及其代谢中间体甲醛的细胞毒性会损害细胞生理;二是微生物对甲醇的固有耐受性低,制约细胞生长、代谢通量与整体合成效率。为此,研究者尝试改造大肠杆菌、枯草芽孢杆菌、酿酒酵母、毕赤酵母等模式宿主,以期构建更稳健的甲醇生物转化体系。但甲醇的固有毒性往往限制其高效利用。在此背景下,本研究将SCRaMbLE(LoxP介导进化的合成染色体重组与修饰)与系统代谢工程结合,从耐受性进化、机制解析到甲醇同化途径整合,系统提升酿酒酵母的甲醇耐受与利用能力。
研究方法
2.1 菌株、质粒与培养基
主要酵母菌株为SynV&X,即携带合成染色体V和X的酿酒酵母菌株;PCRE4质粒用于精确控制潜在重排。细菌培养使用Luria-Bertani(LB)培养基,每升含10 g胰蛋白胨、5 g酵母提取物、10 g氯化钠,需要时用15 g琼脂固化。酵母菌株常规培养于Yeast Extract Peptone Dextrose(YPD)培养基(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖,固体培养基加15 g/L琼脂)。营养缺陷型筛选使用缺组氨酸的合成完全培养基(SC-His),配制为20 g/L葡萄糖、6.7 g/L酵母氮源(YNB)、15 g/L琼脂及相应的氨基酸缺陷混合物。诱导实验使用缺组氨酸的合成半乳糖培养基(SG-His),含20 g/L半乳糖与6.7 g/L YNB并补充氨基酸。需要甲醇诱导时,YPD培养基中补充规定体积分数的甲醇。携带pRS416系列质粒的菌株使用缺尿嘧啶的合成完全培养基(SC-Ura)进行筛选与质粒维持;SC-Ura培养基配制为20 g/L葡萄糖、6.7 g/L YNB、15 g/L琼脂及缺尿嘧啶的氨基酸缺陷混合物。
【数据】LB培养基:10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、15 g/L琼脂;YPD培养基:10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖、15 g/L琼脂;SC-His:20 g/L葡萄糖、6.7 g/L YNB、15 g/L琼脂;SG-His:20 g/L半乳糖、6.7 g/L YNB;SC-Ura:20 g/L葡萄糖、6.7 g/L YNB、15 g/L琼脂;原文未详述培养温度与时间(本节)
2.2 质粒转化
大肠杆菌质粒转化按以下步骤进行:冰上解冻感受态细胞,立即与质粒DNA混合,冰浴30 min。42 °C热激90 s,回到冰上2 min,加入800 μL LB液体培养基,37 °C振荡复苏1 h。取适当体积菌液涂布于含相应抗生素的LB琼脂平板,37 °C过夜培养。酿酒酵母转化时,感受态细胞依次与620 μL 50% PEG3350、40 μL 10 mg/mL单链载体DNA、90 μL 1 M醋酸锂以及质粒DNA或DNA片段混合。混合物30 °C孵育30 min,随后加入90 μL DMSO,42 °C热激18 min。离心收集细胞,重悬于400 μL 5 mM CaCl₂中5 min,再次收集。适当稀释后涂布于选择平板,30 °C培养3天。
【数据】大肠杆菌:冰浴30 min、42 °C热激90 s、冰上2 min、800 μL LB、37 °C复苏1 h、37 °C过夜;酵母:620 μL 50% PEG3350、40 μL 10 mg/mL单链载体DNA、90 μL 1 M醋酸锂、30 °C 30 min、90 μL DMSO、42 °C 18 min、400 μL 5 mM CaCl₂ 5 min、30 °C 3天
2.3 SCRaMbLE过程
为诱导SCRaMbLE介导的基因组重排,从新鲜制备的YPD琼脂平板挑取合成酵母菌株SynV&X单菌落,接种于5 mL缺组氨酸合成完全培养基(SC-His)。预培养于30 °C、220 rpm连续轨道振荡过夜。离心收集细胞,用无菌去离子水洗涤两次以去除残留营养,随后重悬并转入5 mL SG-His培养基,使初始OD600达到0.5。加入β-雌二醇至终浓度1 μM(由1 mM母液加入,每5 mL培养液加5 μL)诱导Cre重组酶介导的基因组重排,随后于30 °C、220 rpm孵育诱导。诱导结束后,细胞悬液以4,000 rpm离心1 min收集。细胞沉淀用1 mL无菌蒸馏水洗涤两次以去除残留诱导剂,随后进行10倍梯度稀释。最后,取适当稀释液均匀涂布于选择筛选琼脂平板,30 °C培养以进行后续表型表征。
【数据】接种:5 mL SC-His;预培养:30 °C、220 rpm、过夜;初始OD600:0.5;β-雌二醇:终浓度1 μM(1 mM母液,5 μL/5 mL);诱导:30 °C、220 rpm;离心:4,000 rpm、1 min;洗涤:1 mL无菌蒸馏水×2;稀释:10倍梯度;平板培养:30 °C
2.4 基因一步快速组装
基因组装所需的多个DNA片段通过PCR扩增获得。pRS416质粒用EcoRI于37 °C酶切60 min线性化,随后65 °C热失活20 min,4 °C保存。取约600 ng各纯化片段与线性化载体,用醋酸锂/PEG法共转化酿酒酵母感受态细胞。转化子涂布SC-Ura固体培养基,30 °C培养3天。菌落出现后,收集酵母菌落并重悬于无菌水,提取总质粒DNA。所得质粒库转化大肠杆菌感受态细胞,涂布含氨苄青霉素与X-gal的LB琼脂平板,37 °C避光过夜培养。挑取白色菌落(提示含插入片段质粒)进行PCR验证。若蓝白斑区分不足,可将平板于4 °C放置以增强显色后再挑取菌落。
【数据】酶切:EcoRI、37 °C、60 min;热失活:65 °C、20 min;片段用量:约600 ng;酵母培养:30 °C、3天;大肠杆菌培养:37 °C、避光、过夜;显色增强:4 °C;原文未详述PCR扩增条件
2.5 基因组提取
从过夜培养的酿酒酵母YPD培养物中提取基因组DNA。取1 mL菌液离心收集细胞,洗涤后用200 μL破碎缓冲液、石英砂及酚:氯仿:异戊醇(25:24:1)涡旋裂解10 min。离心后,水相用预冷乙醇沉淀。DNA沉淀用70%乙醇洗涤,风干后溶于无菌水。DNA质量通过琼脂糖凝胶电泳评估。合格DNA用Covaris仪器剪切至约350 bp。文库经末端修复、加A尾、接头连接和PCR扩增构建。验证插入片段大小,并用qPCR定量文库浓度。等摩尔混合的文库在Illumina平台测序。
【数据】菌液:1 mL;破碎缓冲液:200 μL;涡旋:10 min;酚:氯仿:异戊醇:25:24:1;DNA剪切:约350 bp;测序平台:Illumina;原文未详述离心转速与时间
2.6 甲醇标准曲线绘制
甲醇定量时,将梯度稀释的样品(0–20 μL)用去离子水补足至20 μL。样品依次加入0.2 mL 25% H₂SO₄与0.1 mL 1% KMnO₄,涡旋后室温孵育5 min。随后加入0.1 mL 5% Na₂SO₃、1 mL浓H₂SO₄和0.1 mL 0.5%变色酸,沸水浴加热20 min。冷却后于574 nm测定吸光度。以吸光度对甲醇浓度线性回归绘制标准曲线。
【数据】样品体积:0–20 μL(补足至20 μL);25% H₂SO₄:0.2 mL;1% KMnO₄:0.1 mL;室温:5 min;5% Na₂SO₃:0.1 mL;浓H₂SO₄:1 mL;0.5%变色酸:0.1 mL;沸水浴:20 min;检测波长:574 nm
2.7 转录组测序分析
用标准RNA提取试剂盒(细菌RNA提取试剂盒,Coolaber)按厂商说明从酵母细胞沉淀中提取总RNA。酵母细胞通过珠磨破碎以促进高效裂解。提取的RNA用DNase I处理以去除残留基因组DNA。用NanoDrop/Qubit评估RNA浓度与纯度,文库构建前用琼脂糖凝胶电泳评估RNA完整性。文库构建取1 μg总RNA为起始材料。用Oligo(dT)包被磁珠分离多聚腺苷酸化mRNA,随后在高温下用二价阳离子片段化。用随机六聚体引物合成第一链cDNA,再合成第二链cDNA。双链cDNA纯化后在同一反应中完成末端修复与加dA尾,随后经T-A连接接上Illumina接头。接头连接片段用DNA Clean Beads进行片段大小选择。每个文库用P5和P7引物PCR扩增,扩增产物经验证。带不同index的文库等摩尔混合,按厂商方案在Illumina HiSeq、NovaSeq或MGI2000平台以2 × 150 bp双端模式测序。
【数据】总RNA起始量:1 μg;DNase I处理:有;片段化:二价阳离子、高温;测序模式:2 × 150 bp双端;测序平台:Illumina HiSeq/NovaSeq/MGI2000;原文未详述RNA提取试剂盒型号外的其他参数
2.8 基因敲除验证
基因敲除验证在合成酿酒酵母菌株SynV&X中进行。通过同源重组用His3营养缺陷型标记替换目标基因,以便筛选敲除突变体。转化子涂布SC-His固体培养基,30 °C培养3天。随后挑取单菌落进行PCR验证,确认基因破坏成功。
【数据】筛选培养基:SC-His;培养:30 °C、3天;验证方法:PCR;原文未详述同源重组片段用量
2.9 基因过表达
基因片段以酿酒酵母基因组DNA为模板通过PCR扩增(原文此处节选结束,后续步骤原文未详述)。
【数据】模板:酿酒酵母基因组DNA;方法:PCR;其余参数原文未详述
研究结果
3.1 SCRaMbLE系统的构建
基于合成酿酒酵母多染色体SCRaMbLE系统,本研究以SynV&X菌株作为潜在重排宿主。为精确控制潜在重排,构建了双输入"与门"开关PCRE4(pGAL1-Cre-EBD-tCYC1),其激活取决于β-雌二醇的存在(图1a)。在该系统中,pGAL1启动子仅在半乳糖存在时驱动Cre-EBD融合基因表达。将pRS413与pCRE4质粒分别转化合成酿酒酵母SynV&X菌株,随后通过PCR确认质粒成功导入。琼脂糖凝胶电泳显示清晰的目标条带,pRS413质粒片段为847 bp,pCRE4质粒片段为2676 bp,与预期条带大小一致(图1b)。由此,pRS413与pCRE4质粒均成功转化进合成酿酒酵母SynV&X菌株。
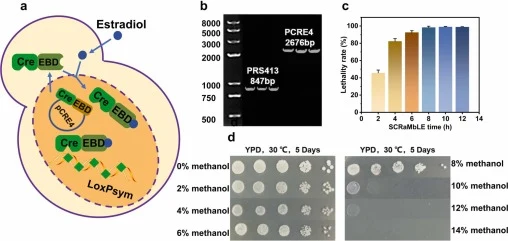
合成酿酒酵母菌株的非必需基因3′非翻译区(UTR)插入了loxPsym位点,但这些位点间由Cre/loxPsym介导的重组可能误删必需基因,导致致死。SCRaMbLE诱导后(重排后)获得的菌落数(合成酿酒酵母SynV&X)明显低于未诱导对照(重排前),提示SCRaMbLE诱导的基因组重排对相当比例细胞产生致死效应(图S1)。本研究进一步以携带空载体pRS413的SynV&X菌株为对照、携带PCRE4的SynV&X菌株为实验组,表征潜在重排所致致死率。两株菌均用β-雌二醇诱导2、4、6、8、10和12小时。诱导后细胞用PBS缓冲液洗涤两次以去除β-雌二醇并终止潜在重排反应。洗涤后适当稀释涂布YPD固体培养基。统计各菌株各时间点的菌落形成单位并计算致死率。2、4、6、8、10和12小时的致死率分别为46%、83%、93%、98%、99%和99%(图1c)。随着潜在重排时间延长,基因组扰动加剧,致死率相应升高。诱导6小时后致死率超过90%,在8、10和12小时时间点接近100%。为维持足够菌株数量并提供丰富的基因组变异文库,选择6小时作为潜在重排时间点。
【数据】pRS413片段:847 bp;pCRE4片段:2676 bp;诱导剂:β-雌二醇;时间点:2/4/6/8/10/12 h;致死率:46%/83%/93%/98%/99%/99%;选定重排时间:6 h;洗涤:PBS×2
为筛选潜在重排后的甲醇耐受变体,采用高浓度甲醇作为选择压力。鉴于甲醇的细胞毒性,其浓度直接影响细胞生长。本研究首先评估SynV&X菌株在含不同甲醇浓度YPD平板上的生长。结果显示,甲醇低于10%(v/v)时生长良好,无明显胁迫;而浓度等于或超过YPD + 10%甲醇时生长明显受抑制(图1d)。因此选择YPD + 10%甲醇作为重排菌株的筛选条件。基于预设的潜在重排时长(6小时)与该筛选阈值(YPD + 10%甲醇),建立了通过SCRaMbLE驱动基因组多样化以改造合成酿酒酵母甲醇耐受性的整合流程。
【数据】甲醇浓度阈值:10%(v/v);低于10%:生长良好;≥10%:生长明显受抑制;筛选条件:YPD + 10%甲醇;重排时长:6 h
3.2 甲醇耐受菌株的筛选
随后选择6小时潜在重排时长、以10%甲醇浓度为选择压力,对合成酿酒酵母SynV&X进行潜在重排并筛选甲醇耐受突变体。在YPD固体培养基上培养后,实验组(SynV&X + pCRE4)菌落数明显少于对照组(SynV&X + pRS413),表明存在大量致死,证实SynV&X菌株潜在重排成功(图S2a)。在补充10%甲醇的YPD平板上,实验组(SynV&X + pCRE4)可见稀疏且相对较大的单菌落,而对照平板(SynV&X + pRS413)几乎无单菌落生长。因此,潜在重排可加速SynV&X菌株甲醇耐受性的进化。从实验组YPD+10%甲醇平板上超过8,000个菌落中,挑选69个相对较大的菌落进行初筛。结果显示,SynV&X-7、SynV&X-18、SynV&X-39和SynV&X-51四株菌较亲本SynV&X表现出生长优势(图S2b)。对这4个候选株进一步复筛,SynV&X-18表现出显著的甲醇耐受性(图S2c)。
【数据】重排时长:6 h;筛选压力:10%甲醇;实验组菌落:>8,000个;初筛菌落:69个;候选株:SynV&X-7、-18、-39、-51;复筛最优:SynV&X-18
为评估SynV&X-18菌株的表型稳定性,将其每日传代,即取5 μL培养物转入5 mL新鲜YPD液体培养基,并点样于YPD固体培养基(图S3)。为进一步表征重排菌株SynV&X-18的生长性能与甲醇耐受性,在YPD液体培养基及补充YPD + 10%甲醇的YPD液体培养基中监测其生长。每3小时取样100 μL测定600 nm光密度(OD600),根据测定数据绘制生长曲线。在YPD培养基中,SynV&X-18的生长适应度略低于SynV&X菌株(图S4a)。但两株菌到达稳定期时水平相当,表明潜在重排对SynV&X-18在YPD培养基中的生长影响很小。随后以亲本SynV&X为对照,在补充YPD + 10%甲醇的YPD液体培养基中评估SynV&X-18的生长。每12小时取样100 μL测定OD600,据此绘制YPD+10%甲醇发酵液中的生长曲线。在生长早期,SynV&X-18生长略低于SynV&X,与其在YPD培养基中的生长曲线一致(图S4b)。但在中后期其生长优势逐渐显现,显著优于SynV&X。72小时时,SynV&X-18的OD600为对照组的1.6倍。
【数据】传代:5 μL转入5 mL YPD;生长监测取样:100 μL/3 h(YPD)、100 μL/12 h(YPD+10%甲醇);72 h OD600:SynV&X-18为对照的1.6倍(即提高0.6倍);稳定期:两株相当
在酿酒酵母构建过程中插入了基因工程PCR标签,用于PCR分析以区分野生型与合成DNA。合成染色体V含339对PCR标签,合成染色体X含245对。为初步检测SynV&X-18菌株中SCRaMbLE诱导的基因组变异,从每条染色体各选10对PCRTags进行PCR验证。以SynV&X为对照组、SynV&X-18为实验组(图S5)。每对引物在SynV&X与SynV&X-18中均产生清晰条带,且条带大小一致。PCRTag分析未能检测到遗传变异。此外,其他复杂遗传变异无法用PCRTags验证。因此,全基因组测序更适合进一步研究潜在重排引起的遗传变异。
【数据】染色体V PCR标签:339对;染色体X PCR标签:245对;验证选取:每条染色体10对;结果:条带大小一致、未检出变异;原文未详述PCR扩增条件
3.3 比较基因组学与甲醇耐受靶点分析
提取甲醇耐受性增强的SCRaMbLE重排菌株SynV&X-18的基因组DNA,交由诺禾致源有限公司测序进行基因组分析(图S6)。SynV&X-18菌株测序结果分析显示,合成V和X染色体上存在基因组变异。在SynV染色体上观察到一段2300 bp缺失(原文此处节选结束,后续分析内容原文未详述)。
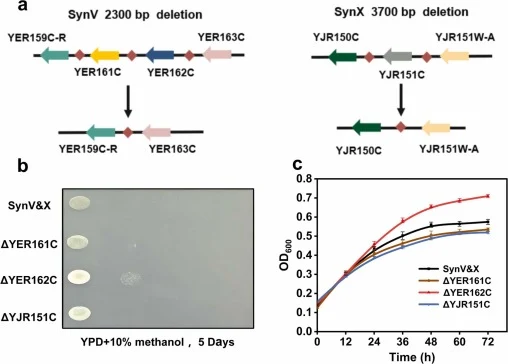
【数据】缺失片段:2300 bp;位置:SynV染色体;测序服务:诺禾致源;其余变异数据原文未详述
3.4 转录组测序分析
对SynV&X-18进行转录组测序分析,包括RNA-Seq相关性检验、PCA主成分分析、差异基因聚类分析与差异基因火山图(图3)。
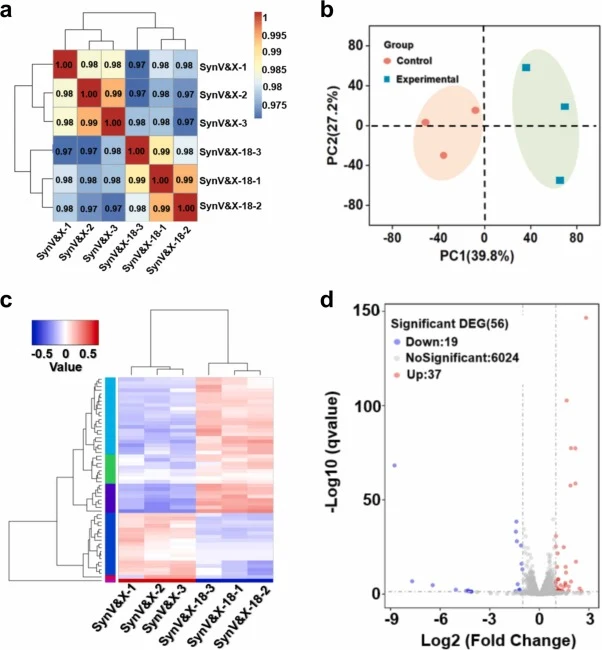
【数据】分析内容:RNA-Seq相关性检验、PCA、差异基因聚类、火山图;其余数值原文未详述
3.5 外源氨基酸添加对甲醇耐受性的影响
考察不同氨基酸种类对甲醇耐受性的影响(图4a)、不同脯氨酸浓度的影响(图4b)、不同精氨酸浓度的影响(图4c)以及不同丝氨酸浓度的影响(图4d)。
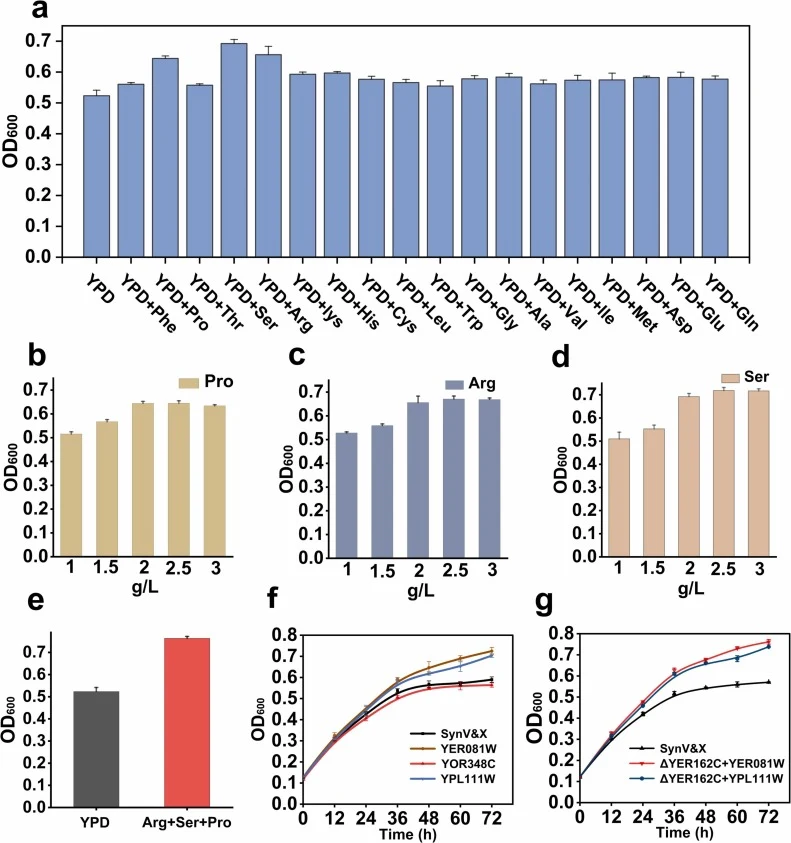
【数据】考察因素:氨基酸种类、脯氨酸浓度、精氨酸浓度、丝氨酸浓度;其余数值原文未详述
3.6 甲醇同化途径的构建与利用测定
在酿酒酵母中构建甲醇同化途径(图5a),PRS416-XuMP代谢途径的基因连接序列见图5b;测定SynV&X、SynV&X-XuMP与SynV&X-18-XuMP在YPD + 甲醇条件下的甲醇浓度(图5c)。
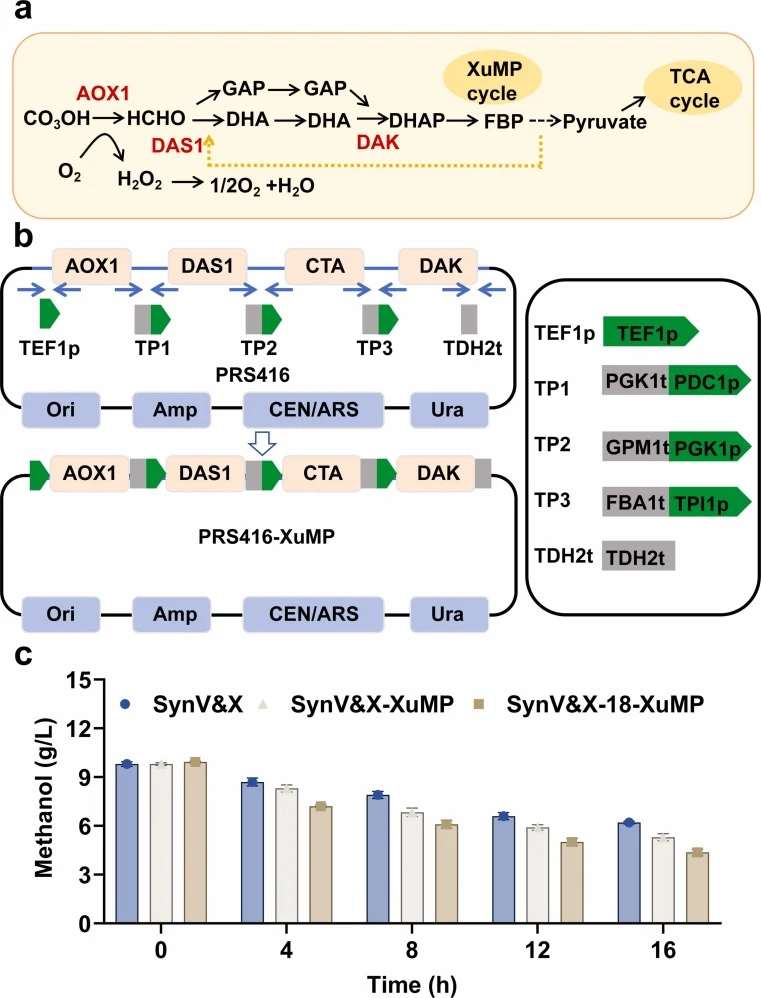
【数据】菌株:SynV&X、SynV&X-XuMP、SynV&X-18-XuMP;途径:XuMP;载体:PRS416;甲醇利用率:SynV&X-18-XuMP较对照SynV&X-XuMP提高0.73倍(摘要/结论数据);其余数值原文未详述
讨论与解读
本研究通过合成潜在重排在酿酒酵母中研究甲醇耐受性。在SynV&X菌株中构建了潜在重排系统,并用"与门"开关PCRE4精确调控,获得遗传稳定的菌株SynV&X-18,其在补充YPD + 10%甲醇的YPD液体培养基中培养72小时后,较对照提高0.6倍。对耐受菌株SynV&X-18进行基因组与转录组测序,揭示RAD4缺失增强甲醇耐受性。转录组分析表明氨基酸代谢参与甲醇耐受,并通过外源补充丝氨酸、精氨酸和脯氨酸得到验证。在显著上调的氨基酸相关基因中,过表达SER3与CAR1通过调节丝氨酸与精氨酸代谢提高甲醇耐受性,生物量分别提高0.23倍与0.19倍。为评估提高的甲醇耐受性能否改善甲醇利用,通过同源重组将甲醇同化的XuMP途径整合进SynV&X-18,所得菌株SynV&X-18-XuMP的甲醇利用率较对照SynV&X-XuMP提高0.73倍,表明增强甲醇耐受性可促进合成甲醇同化酵母的甲醇消耗。
编译者解读:该工作把SCRaMbLE这种"基因组级随机扰动"当作耐受性进化的加速器,再用"与门"开关把重排限定在半乳糖+β-雌二醇双信号下,控制逻辑清晰,6小时诱导窗口兼顾变异库容量与存活率。RAD4缺失与丝氨酸/精氨酸代谢两条线索,为耐受机制提供了可检验的靶点。局限在于筛选仍依赖10%甲醇平板这类经验阈值,重排带来的多位点变异与表型之间的因果拆解尚不彻底,XuMP途径的甲醇同化效率距工业指标仍有距离。
参考来源
期刊:Biochemical Engineering Journal, 2026
DOI: 10.1016/j.bej.2026.110459
DOI: 10.1016/j.bej.2026.110459