来源:Physics-informed neural network for analyzing Michaelis–Menten and non-Michaelis–Menten kinetics in amperometric biosensor(Electrochimica Acta)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
酶电极的稳态响应由反应–扩散方程控制,米氏动力学尚可用半解析方法近似求解,但底物抑制、产物抑制等非米氏机制使方程强非线性化,传统近似方法精度下降。Mallikarjuna 将物理信息神经网络(PINN)引入这一经典问题,用同一套无量纲框架统一处理三种动力学,并把电极表面污染写进边界条件。PINN 解与高精度数值参考解的相对误差低至 0.09%,优于 HPM、TSM、ADM 等半解析方法;作者还从污染电极的电流中提取出产物抑制的"诊断指纹",并用逆问题反演三种模型的动力学参数。
研究背景
生物传感器把生物识别元件与换能器结合,无需多步样品处理即可给出定量或半定量结果。安培型生物传感器以电极捕获生化反应中氧化还原产生的电流变化,灵敏度高、响应快、结构简单,通常由电极、固定化酶层和信号转换器组成;在正常动态范围内,电流与分析物浓度成正比。
基于反应–扩散方程与米氏动力学的酶电极模型由来已久:Clark 与 Lyons 提出酶电极构想,Updike 与 Hicks 首次实现。此后,求解非线性动力学方程主要依靠近似解析手段——同伦摄动法(HPM)、泰勒级数法(TSM)、Adomian 分解法(ADM)、Akbari-Ganji 法(AGM)、拉普拉斯同伦摄动法(LHPM)等。这些方法对非线性微分方程的精度不及数值方法。作者据此转向物理信息神经网络:把控制方程与初边值条件直接嵌入学习过程,用网络架构加嵌入物理定律的损失函数求解。该构造源于 Lagaris 等,经 Raissi 等发展为现今形式,Karniadakis 等对框架及其变体作了综述。
研究方法
3.1 方法论 本研究将 PINN 方法与用于求解非线性反应–扩散动力学的传统半解析方法进行比较。此前已有多种半解析方法被用于求解非线性米氏与非米氏动力学方程,即同伦摄动法(HPM)[15]、泰勒级数法(TSM)[6,15]、Adomian 分解法(ADM)[6]、Akbari-Ganji 法(AGM)[29]、拉普拉斯同伦摄动法(LHPM)[7]。对于非线性微分方程,这些近似解析方法给出的结果精度低于数值方法。因此我们实现了称为物理信息神经网络的人工神经网络方法,该方法将系统的控制物理定律以及初始条件和边界条件直接纳入学习过程,把神经网络架构与嵌入这些定律的损失函数结合起来。本问题所用的架构及由其组装的损失函数分别在第 3 节图 1 和图 2 中给出。网络通过最小化复合损失进行训练,该损失由一组内部配点上控制方程的残差与边界条件的残差组装而成。这一构造源自 Lagaris 等 [30],并由 Raissi 等 [17] 发展为现今形式;Karniadakis 等 [31] 对该框架及其变体作了综述。
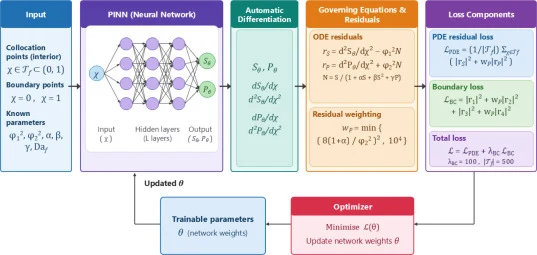
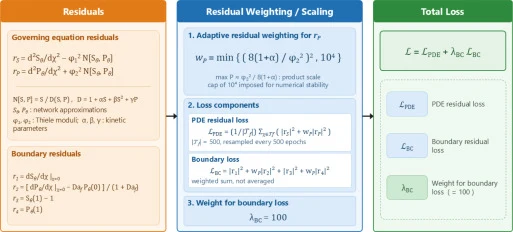
【数据】方法类型:PINN 与 HPM、TSM、ADM、AGM、LHPM 半解析法对比;网络输入:无量纲距离 χ;网络输出:底物场 Sθ 与产物场 Pθ;损失组成:控制方程残差 + 边界条件残差;配点:内部配点集;原文未详述:网络层数、神经元数、学习率、训练轮数、优化器
研究结果
5 结果与讨论 图 4 给出 PINN 算法在无量纲空间坐标 χ 与 Thiele 模量 φ1、φ2 上得到的浓度分布,系在稠密 (χ, φi) 网格上评估参数化网络所得。这种等值线表示把整族边值解压缩为每个场一张曲面,使反应–扩散竞争直接可见。
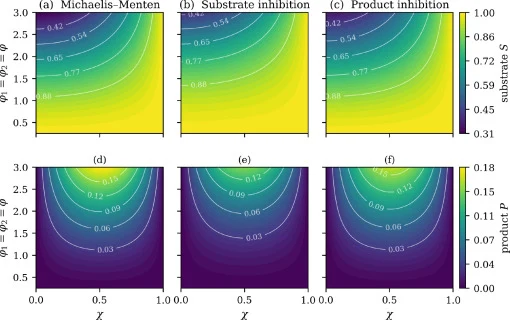
【数据】场变量:无量纲底物浓度 S、产物浓度 P;自变量:χ、φ1、φ2;网格:稠密 (χ, φi) 网格;原文未详述:网格点数
图 5 给出清洁电极表面(Daf → ∞)上三种动力学模型的无量纲底物与产物浓度随无量纲距离 χ 和 Thiele 模量 φ 的变化。以米氏场为基线,两个非米氏模型以其偏离量绘制,从而直接画出待比较的量,而不是从三张视觉相似曲面去推断。在三种动力学模型中,底物浓度均在本体浓度边界 χ = 1 处最高、在 Thiele 模量最小时最高,并随活化能增大、底物开始与酶反应转化为产物而向电极表面边界 χ = 0 平滑降低。这一行为是扩散–反应平衡的预期结果。低 φ1 时酶消耗相对扩散较弱,底物穿透整个酶层,S(χ) ≈ 1;较高 φ1 时反应快,底物在扩散到电极前即被消耗,形成耗尽梯度,并在图谱左上区域(χ → 0,φ1 → 3)出现最小值。边界 χ = 0 处的无通量条件 dS/dχ = 0 表现为场在电极边界处的特征性平坦化。
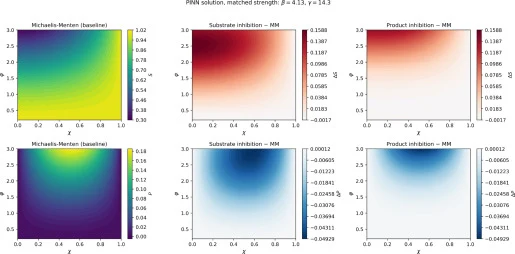
【数据】米氏动力学最小表面值:Smin ≈ 0.30;底物抑制动力学:Smin ≈ 0.41;产物抑制动力学:Smin ≈ 0.35;φ = 0.5 时表面值:S(0) = 0.975;φ = 3 时表面值:S(0) = 0.309;边界条件:dS/dχ = 0(χ = 0)
由图中可见,局部反应速率 r = S/(1 + αS) 随 S 单调增大并在 1/α 处饱和,因此转化速率在本体边界最快,底物场向电极平滑单调下降。表面值从 φ = 0.5 时的 S(0) = 0.975 降至 φ = 3 时的 S(0) = 0.309,无通量条件 dS/dχ = 0 表现为场在 χ = 0 处的平坦化。
底物抑制模型行为不同,差异源于动力学而非抑制幅度。对 r = S/(1 + αS + βS²),导数 (22) ∂r/∂S = (1 − βS²)/(1 + αS + βS²)² 在 Sc = 1/√β 处变号,故速率在 Sc 以下随底物增大、在 Sc 以上随底物减小。由 Haldane 速率定律 v = VmaxC/(Km + C + C²/KI),令 α = C∞/Km、β = C∞²/(KmKI) 即得式 (6),对应有量纲浓度为 (23) Cc = C∞Sc = √(KmKI),即底物抑制酶最大周转时的底物浓度,故 Sc 是本模型无量纲变量下经典 Haldane 最优值。由于本体浓度固定 S(1) = 1 > Sc,酶层外部始终工作在抑制支,底物浓度越大转化速率越小。
【数据】速率方程:r = S/(1 + αS + βS²);导数变号点:Sc = 1/√β;有量纲最优浓度:Cc = √(KmKI);Haldane 参数:α = C∞/Km,β = C∞²/(KmKI)
由底物抑制各图可见,φ ≲ 2.88 时耗尽不足以使 S(0) 降到 Sc 以下,整个酶层保持自抑制,局部速率因而向电极方向增大:φ = 1 时 χ = 0 处 r = 0.1116,而 χ = 1 处 r = 0.1095。φ ≳ 2.88 时表面值越过 Sc,酶层分为外部抑制区与内部非抑制区,反应速率在 S = Sc 处出现内部极大;φ = 3 时该极大位于 χ = 0.283,r = 0.1240,而本体边界处 r = 0.1095。
产物抑制模型中速率 r = S/(1 + αS + γP) 满足 ∂r/∂S = (1 + γP)/(1 + αS + γP)² > 0,故对 S 保持单调,极大在本体边界,与米氏情形相同。浓度受抑制源于产物抑制:产物在两边界处均为零并在内部取极大,因此反应在酶层中部受阻最强。偏离量 ΔS 相应较小,为 0.139,且移入层内 χ = 0.13 处,而非压向电极。同一论证解释了为何 φ = 3 时电极附近局部速率高于米氏模型:r(0) = 0.160 对 0.138——抑制性产物在 χ = 0 处不存在,而该处底物浓度仍较高。
【数据】产物抑制速率方程:r = S/(1 + αS + γP);∂r/∂S = (1 + γP)/(1 + αS + γP)² > 0;偏离量:ΔS = 0.139(位于 χ = 0.13);φ = 3 时电极处局部速率:产物抑制 r(0) = 0.160,米氏 r(0) = 0.138
三种模型的产物场按积分转化量排序:φ = 3 时米氏、底物抑制、产物抑制模型的 Pmax 分别为 0.185、0.137、0.135,极大位置几乎不变,分别为 χ* = 0.519、0.496、0.519。位置由 P 的两个 Dirichlet 条件固定,故对动力学不敏感;幅度则由动力学决定。其后果是两处偏离 ΔP 几乎相等——底物抑制 0.0489、产物抑制 0.0494——两种机制在产物场上不可区分。由于安培响应取自产物通量,两种抑制机制无法由单一电极的稳态电流辨识,区分它们需要瞬态测量或独立测定底物分布。
【数据】φ = 3 时 Pmax:米氏 0.185、底物抑制 0.137、产物抑制 0.135;极大位置:χ* = 0.519、0.496、0.519;偏离 ΔP:底物抑制 0.0489、产物抑制 0.0494
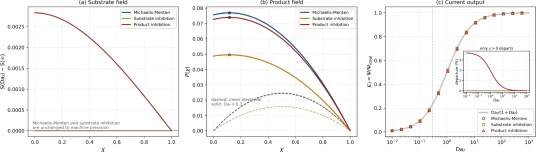
5.1 电极表面污染的影响 电极污染的核心效应不是降低测量信号,而是重构产生信号的浓度场;下文先确立这一点,再考察其对电流的后果。图 7 给出 φ = 1、部分阻塞表面 Daf = 0.3 时式 (19) 所描述的电极表面状况对三种动力学模型底物浓度、产物浓度与电流响应的影响。由图 7(a) 可见,米氏与底物抑制模型的底物浓度不变,仅产物抑制模型有响应,max|ΔS| = 2.8 × 10⁻³。这源于控制方程结构:γ = 0 时产物不进入式 (4),底物场与 P 无关,施加于 χ = 0 处 P 的条件无法影响它。因此底物场仅通过产物抑制项引入的双向耦合才对电极污染敏感。
【数据】条件:φ = 1,Daf = 0.3;底物浓度最大变化:max|ΔS| = 2.8 × 10⁻³(仅产物抑制模型);γ = 0 时产物不进入式 (4)
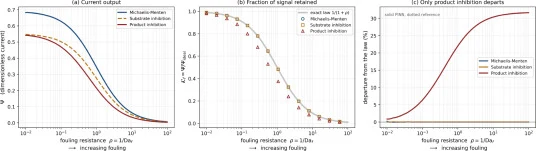
图 7(b) 显示污染并不重新标度产物分布,而是重构它。电极处产物浓度由零升至米氏、底物抑制、产物抑制模型的 0.076、0.049、0.073,内部极大增大约三倍,分别由 0.0246 升至 0.0769、由 0.0158 升至 0.0495、由 0.0243 升至 0.0739,且三种模型中其位置均由 χ = 0.500 迁移至 χ = 0.117。物理上,污染膜限制产物在电极处移出,却不限制其在酶层内生成,产物因而在酶活性最高区域累积。图 7(c) 给出保留电流分数 Kf = Ψ/Ψideal 随 Daf 的变化。米氏与底物抑制模型在 Daf = 0.3 时给出 Kf = 0.2308,与命题 2 的 Daf/(1 + Daf) 吻合至四位小数,而……
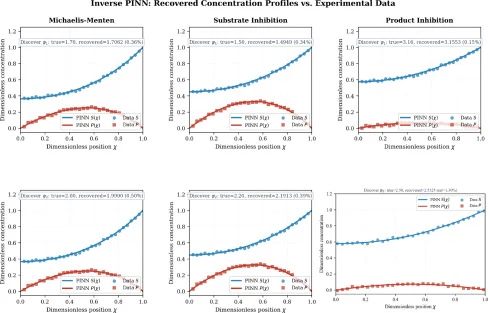
【数据】电极处产物浓度:米氏 0.076、底物抑制 0.049、产物抑制 0.073;内部极大:0.0246→0.0769、0.0158→0.0495、0.0243→0.0739(约 3 倍);极大位置:χ* = 0.500→0.117;Daf = 0.3 时 Kf = 0.2308(米氏与底物抑制),与 Daf/(1 + Daf) 吻合至四位小数
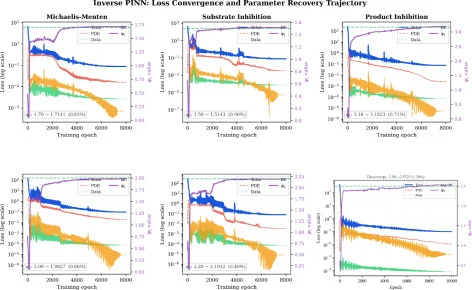
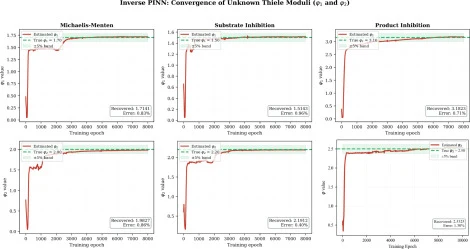
【数据】图 11:损失收敛与参数恢复历史;图 12:φ1、φ2 估计值随训练轮次的收敛(米氏与非米氏模型);原文未详述:具体损失值、训练轮次数
讨论与解读
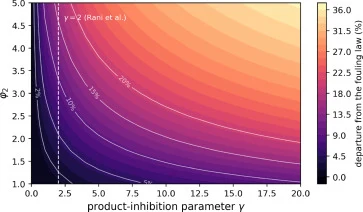
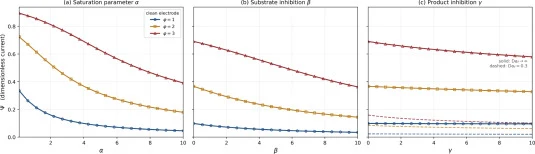
作者在结论中给出精度账目:PINN 与参考解在全部列表点上的平均相对误差为 0.09%,在半解析方法列表所用站点上为 0.12%;同一批站点上 NHPM 为 1.61%、TSM 为 1.38%、ADM 为 1.49%。在 φ2 与 α 各跨三个数量级、三个随机种子的条件下,生物传感器电流的平均相对误差为 0.062 ± 0.062%,并确认强扩散限制区 φ2 ≳ 50 是当前网络配置的适用极限。PINN 结果遵循安培型生物传感器动力学反应的预期物理:随 Thiele 模量 φ1 增大,底物在电极附近耗尽;产物形成随 φ2 增大的内部极大。稳态电流由 PINN 训练的产物浓度结果取得,即电极处的产物通量,并把电极表面污染这一实际重要效应纳入其中。
编译者解读:把 PINN 用作"统一求解器"是本文最聪明的取舍——三种动力学共用一套无量纲方程与损失函数,换模型只需改残差项,省去逐模型推导半解析解的人力。污染边界条件的引入让模型更贴近真实电极,而"产物抑制偏离精确饱和律"这一发现具有诊断价值。局限也明显:φ2 ≳ 50 的强扩散限制区失效,逆问题依赖浓度数据质量。对合成生物学而言,这类正逆双向框架可用于固定化酶反应器的在线参数辨识。
参考来源
期刊:Electrochimica Acta, 2026
DOI: 10.1016/j.electacta.2026.150121
DOI: 10.1016/j.electacta.2026.150121