来源:Bacillus subtilis controls mycotoxigenic coffee pathogens by volatile-mediated long-range chemical signaling and contact-dependent lipopeptide antagonism(Microbiological Research)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
咖啡产业长期受镰刀菌等真菌病原及霉菌毒素污染困扰。本研究从健康咖啡植株中分离出枯草芽孢杆菌34a,先通过全基因组测序与基因组挖掘预测其抗真菌潜力,再用低温等离子体质谱(LTP-MS)与直接进样电喷雾质谱(DLI-ESI-MS)分别追踪挥发性与可扩散代谢物在八组细菌—真菌对峙中的动态变化。结果显示,34a对真菌的径向生长抑制率介于15.2%–54.1%,共培养可下调 beauvericin、fumonisin、enniatin 等霉菌毒素相关信号,同时诱导表面活性素等细菌脂肽,并出现仅在互作中富集的环孢菌素类化合物,说明其生防活性来自病原特异性的化学重塑而非组成型抗菌产物。
研究背景
咖啡是全球经济价值最高的农产品之一,年产量超过1000万吨,约1.25亿人(以小农为主)依赖其生计。真菌病原持续威胁咖啡生产:镰刀菌属可定殖根、茎和果实,引起枯萎与根腐,造成减产并损害豆粒品质。更棘手的是,这些真菌还能合成霉菌毒素。对商品咖啡的LC-MS/MS调查已在烘焙与冲泡产品中检出伏马菌素、白僵菌素、恩镰孢菌素、赭曲霉毒素A和黄曲霉毒素,说明田间阶段的污染可一路传递到消费者。白僵菌素与恩镰孢菌素是环状六酯肽类霉菌毒素,具有细胞毒性、基因毒性和免疫抑制活性。在此背景下,利用具有安全资格认定(QPS)地位的枯草芽孢杆菌进行生物防治,成为兼顾品质与安全的可行方向。但细菌与真菌对峙时的化学对话究竟如何展开、是否具有病原特异性,仍缺乏直接的原位质谱证据。
研究方法
2.1 微生物分离
真菌与细菌菌株分离自咖啡(Coffea arabica,品种 Garnica 及杂交品种 Sarchimor、Heisha、Costa Rica)的寄主组织,植株健康状态不一(有症状或无症状),采样点位于墨西哥两地:圣路易斯波托西州 Aquismón 的咖啡种植园(“Huasteca Potosina”地区;21°37'56.5“N 99°00'00.3”W),以及圣地亚哥-德克雷塔罗的一处温室(20°36'13.7“N 100°24'26.0”W)。每株植物采集叶片、茎、根及周围落叶层组织样品,置于冰上运回实验室。组织表面消毒采用顺序浸洗:70%乙醇1 min,随后2%次氯酸钠2 min,再用无菌蒸馏水冲洗三次。切取约5 mm²的叶、茎、根片段,置于马铃薯葡萄糖琼脂(PDA;Difco)上进行真菌分离。细菌分离则将消毒后的叶片片段置于 LB:YEB 50:50 液体培养基中,28 °C培养24 h;取生长物中的细菌在LB琼脂平板上分离。消毒效果通过将最终冲洗水接种LB琼脂并确认无微生物生长来保证(Pacheco-Ramírez et al., 2025)。真菌平板于28 °C培养5–10天,通过分离孢子或菌丝尖端获得纯培养物。细菌菌落转接至LB琼脂纯化。
【数据】培养基:PDA(Difco)、LB:YEB 50:50液体、LB琼脂;消毒:70%乙醇1 min、2%次氯酸钠2 min、无菌水冲洗3次;组织片段:约5 mm²;细菌培养温度:28°C;时间:24h;真菌培养温度:28°C;时间:5–10天;采样坐标:21°37'56.5“N 99°00'00.3”W、20°36'13.7“N 100°24'26.0”W
2.2 生防菌株筛选
在PDA上以双培养对峙实验系统筛选45株细菌分离物对10株真菌分离物的拮抗作用,以寻找候选生防菌。每个平板中央接种一株真菌分离物,细菌候选菌株点接于平板外周,从而可对同一真菌靶标集合同时进行抑菌圈的可视化比较。对多种真菌产生可见抑菌圈的细菌分离物保留为候选,其抑制活性随后在单独实验中确认。菌株34a依据表型标准的组合被选中:产生最大且重复性最好的抑菌圈、对所试镰刀菌类分离物具有广谱抑制、且来源于无症状植株(符合内生起源)。
【数据】筛选规模:45株细菌 × 10株真菌;培养基:PDA;接种方式:真菌中央、细菌外周;筛选标准:抑菌圈最大且可重复、广谱抑制、来源无症状植株
2.3 菌株保藏
真菌培养物维持于PDA、28 °C,每2–3周转接一次,并以50%(v/v)甘油于−20 °C保存。长期保存时,枯草芽孢杆菌34a在LB培养基中于28 °C、200 rpm振荡过夜培养,以25%甘油菌种于−80 °C保存。后续实验中,34a维持于LB琼脂、28 °C,每两周转接一次。
【数据】真菌保藏:PDA、28°C、每2–3周转接、50%甘油、−20°C;细菌培养:LB、28°C、200 rpm、过夜;长期保藏:25%甘油、−80°C;常规维持:LB琼脂、28°C、每两周转接
2.4 真菌菌株的分子鉴定与系统发育分析
真菌分离物的分子鉴定通过内转录间隔区(ITS)测序完成。基因组DNA提取时,以LB培养基中培养12 h的细菌分离物生长物和PDA上培养7天的真菌菌丝体为起始材料。细菌与真菌细胞用TES缓冲液和蛋白酶K于65 °C裂解,随后用乙酸铵沉淀蛋白,并以异丙醇和乙醇洗涤,按Mahuku(2004)方案执行。DNA定量使用Nanodrop 1000(Thermo Fisher)。PCR产物经纯化后用相同引物双向测序。正向与反向序列用BioEdit(Hall, 1999)组装并编辑。共识序列用BLASTn算法(Altschul et al., 1990)与NCBI GenBank数据库(https://blast.ncbi.nlm.nih.gov)比对;ITS序列比对NCBI ITS RefSeq Fungi数据库。系统发育分析时,八株真菌的ITS序列与代表近缘种的GenBank参考序列用MUSCLE(Edgar, 2004)在MEGA12(Tamura et al., 2021)中比对。比对结果经人工检查并修剪去除模糊区域。系统发育关系采用最大似然法与Tamura-Nei核苷酸替换模型(Tamura, Nei, 1993)推断。进化分析在MEGA12中进行,树编辑使用交互式Tree of Life iTOL v5(Letunic and Bork, 2021)。ITS序列以BioProject登录号PRJNA1284953存入GenBank。
【数据】细菌DNA提取起始培养:LB、12h;真菌菌丝培养:PDA、7天;裂解温度:65°C;DNA定量仪器:Nanodrop 1000;比对软件:MUSCLE、MEGA12;替换模型:Tamura-Nei;树编辑:iTOL v5;登录号:PRJNA1284953
2.5 菌株34a的基因组系统发育表征与基因组挖掘
为获得确定的种级鉴定,采用Oxford Nanopore Technologies(ONT)长读长测序对菌株34a进行全基因组测序。文库按制造商说明用ONT Rapid Sequencing Kit V14(货号SQK-RAD114)制备,随后在MinION设备上以24 h循环、默认参数、经MinKNOW v25.05平台测序。所得长读长拼接为单个FASTQ文件,用Flye v2.9.1-b1780进行从头基因组组装。组装器以未校正长读长模式运行,目标基因组大小设为5.0 Mb。为提高组装准确性,草图组装随后用Racon v1.5.0进行两轮迭代式组装后抛光,每轮迭代后将原始长读长回贴至共识序列。组装质量指标与连续性统计用QUAST v5.2.0评估。最终基因组组装用于下游注释、基因组系统发育分析与基因组挖掘。组装基因组(4.02 Mb,24个contig;NCBI BioProject PRJNA1284953;BioSample:SAMN49742882;SRA:SRP596505)用两种互补的基因组系统发育方法分析。首先,种级鉴定使用Type Strain Genome Server(TYGS;https://tygs.dsmz.de;Meier-Kolthoff and Göker, 2019;Freese et al., 2026),采用Genome BLAST Distance Phylogeny(GBDP)方法与推荐设置(公式d4)。数字DNA-DNA杂交(dDDH)值针对最接近的模式菌株计算,采用公认的70%物种界定阈值。TYGS分析将菌株34a归入枯草芽孢杆菌种内(与模式菌株ATCC 6051的dDDH = 88.3%)。其次,该归属用AutoMLST2(Pourmohsenin et al., 2025)独立确认,该基因组系统发育流程整合了针对Genome Taxonomy Database(GTDB)的Mash-based ANI估计(Ondov et al., 2016)与最大似然系统发育重建。AutoMLST2报告菌株34a与枯草芽孢杆菌模式菌株(GCF_000009045)之间的估计ANI为98.5%,远高于95%的物种阈值(Goris et al., 2007),并在所得最大似然系统发育树中将菌株34a置于枯草芽孢杆菌模式菌株最近的姐妹谱系(图1)。两项分析收敛于相同的种级归属,确认并细化了基于16S rRNA基因的初步鉴定。生物合成基因簇(BGC)用antiSMASH 8.0.4版(Blin et al., 2025)预测,采用细菌参数与“relaxed”检测严格度。启用全部附加功能,包括针对MIBiG数据库的KnownClusterBlast比较(Terlouw et al., 2023)、ClusterBlast、ActiveSiteFinder、RREFinder以及基于Pfam的GO术语注释。簇身份依据与MIBiG中经实验表征的参考簇的氨基酸相似性确定,并在适用时由NRPS底物预测支持。所得BGC谱随后作为基因组挖掘框架,用于指导代谢物注释与细菌—真菌互作谱的解读。
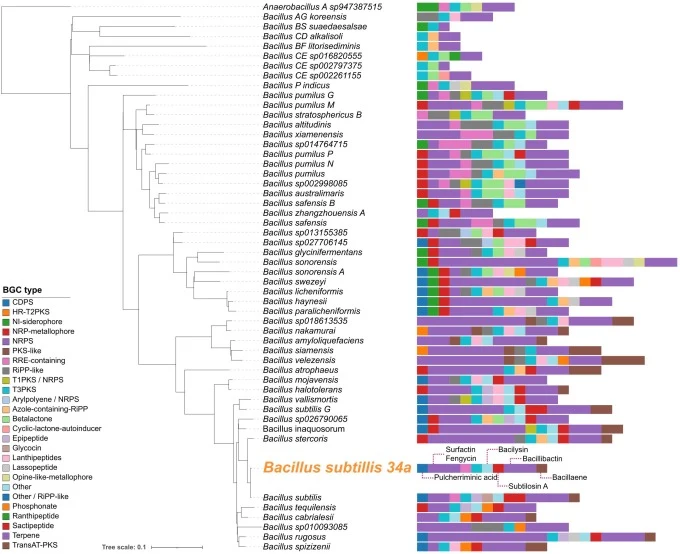
【数据】测序平台:ONT MinION、MinKNOW v25.05;建库试剂盒:SQK-RAD114;测序循环:24h;组装软件:Flye v2.9.1-b1780;目标基因组大小:5.0 Mb;抛光:Racon v1.5.0、2轮;质量评估:QUAST v5.2.0;基因组大小:4.02 Mb;contig数:24;dDDH:88.3%(vs ATCC 6051);ANI:98.5%(vs GCF_000009045);物种阈值:70% dDDH、95% ANI;BGC预测:antiSMASH 8.0.4、relaxed严格度;登录号:PRJNA1284953、SAMN49742882、SRP596505
2.6 质谱分析的平板格式与采样时间
(原文该节在此处截断,节选未包含后续内容,故不译。)
研究结果
3.1 真菌分离物的分子鉴定与34a细菌的基因组系统发育表征
真菌分离物基于其ITS序列的BLASTn分析进行鉴定(补充图1A)。为获得菌株34a的种级分辨率,随后进行了全基因组测序(图1)。基于基因组的分类归属采用平均核苷酸一致性(ANI)确认菌株34a为枯草芽孢杆菌(表1)。对于用ITS测序鉴定的真菌菌株,菌株B、E、F、F1和GM的测序一致性与查询覆盖度均超过95%。该区域的系统发育分析揭示了镰刀菌属真菌基于序列相似性与覆盖度的聚类(补充图1B),包括一株同心镰刀菌(B)、一株藤仓镰刀菌(F)、一株胡颓子镰刀菌(F1)和一株层生镰刀菌(GM)。唯一的伞霉属分离物被暂定为U. brunnea(E)。然而,尽管菌株A、D和GV显示超过99%的序列一致性,查询覆盖度仅约30%,无法仅凭ITS数据作出可靠的种级归属。其序列一致性的相似性与一致的系统发育分组支持将其暂归入镰刀菌复合种。其独特的形态特征以及不同的地理(包括海拔差异)与组织来源,支持将其归类为不同菌株而非克隆。所有序列以登录号PRJNA1284953存入GenBank。
【数据】ITS一致性/覆盖度:B、E、F、F1、GM >95%;A、D、GV一致性>99%、覆盖度约30%;真菌鉴定:F. concentricum(B)、F. fujikuroi(F)、F. elaeagni(F1)、F. subglutinans(GM)、U. brunnea(E);登录号:PRJNA1284953
3.2 基因组证据支持枯草芽孢杆菌34a产抗菌代谢物的生物合成能力
基因组挖掘分析揭示了生防相关芽孢杆菌典型的多条高置信度生物合成基因簇(BGC)。这些簇与已表征的、涉及表面活性素、丰原素/普利帕斯汀、杆状烯、杆菌铁载体、杆菌溶素、枯草菌素A和普切明酸生物合成的BGC高度相似(图1)。这些代谢物被广泛报道为枯草芽孢杆菌群成员抗真菌活性、铁竞争与微生物拮抗的重要贡献者(Zeng et al., 2025)。这些生物合成途径的基因组鉴定为解读下述真菌—细菌互作实验中观察到的代谢组模式提供了功能框架,尤其是与抗菌及铁螯合代谢物产生相关的模式。
【数据】BGC类型:表面活性素、丰原素/普利帕斯汀、杆状烯、杆菌铁载体、杆菌溶素、枯草菌素A、普切明酸;预测工具:antiSMASH 8.0.4;原文未详述各簇具体长度与相似度百分比
3.3 枯草芽孢杆菌34a对咖啡相关真菌具有菌株依赖的抗真菌活性
在八株真菌分离物与枯草芽孢杆菌34a的共培养中,于72、144和216 h测定径向生长抑制率(PRGI)。34a对不同真菌表现出差异化抗真菌活性,说明界面附近区域真菌生长具有特异性(图2)。对F. falciforme(GV)和Umbelopsis brunnea(E)观察到最强抑制。E菌株随时间呈渐进性抑制,PRGI从72 h到216 h几乎翻倍,提示累积性生防效应。对F. subglutinans(GM)、F. concentricum(B)和Fusarium elaeagni(F1)观察到中度至强抑制。F. fujikuroi(F)呈中度抑制。相反,F. falciforme(A)和(D)的生防迹象明显较弱,其PRGI值到144 h才变得可观,并持续显著至216 h(补充表S1)。双培养平板的形态学检查揭示了不同的互作表型(图2B)。真菌分离物(E、GV和GM)在细菌菌落附近表现出清晰的抑菌带与改变的菌丝形态,其特征为菌丝密度降低、菌丝膨大和色素沉着增加。相反,弱抑制的分离物(A、D)尽管存在细菌,仍表现出相对正常的菌丝生长模式,真菌菌丝偶尔过度生长覆盖细菌菌落。34a菌落在PDA单培养中近乎白色,仅带微弱红橙色色调,归因于普切明(pulcherrimin),一种由基因组中鉴定到的完整BGC编码的红色铁(III)-普切明酸复合物(图1A)。该色素沉着在对峙实验中显著增强,包括仅由挥发性化合物介导的互作。这表明普切明的产生响应真菌化学信号而增加。这些结果表明,枯草芽孢杆菌34a对咖啡相关真菌具有分离物依赖的抗真菌活性。近缘F. falciforme分离物(A、D和GV)间的差异响应表明,对细菌拮抗的敏感性存在显著的种内变异(补充表S1)。
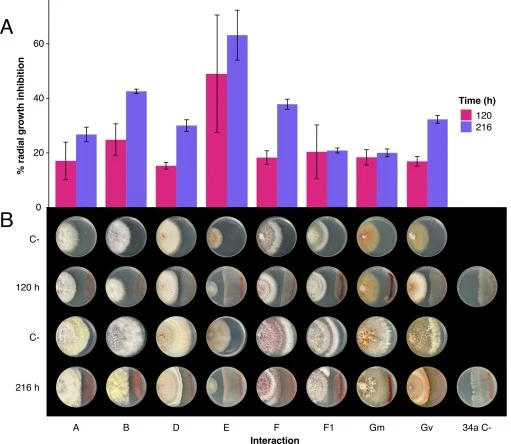
【数据】PRGI测定时间点:72、144、216h;抑制范围:15.2%–54.1%;最强抑制:F. falciforme(GV)、U. brunnea(E);E菌株PRGI:72→216h几乎翻倍;弱抑制:F. falciforme(A)、(D),144h才显著;平板:PDA;色素:普切明(铁(III)-普切明酸复合物)
3.4 挥发性与可扩散化合物的差异分析揭示互作相关化学模式
为探究双培养实验中观察到的可变生防表型的化学基础(图2),我们整合了两种互补的直接质谱方法,可在微生物对峙期间对挥发性与可扩散谱学特征进行非靶向检测。低温等离子体质谱(LTP-MS)直接分析培养平板挥发出的挥发性与半挥发性物质,直接进样电喷雾质谱(DLI-ESI-MS)则捕获从互作区提取的可扩散及较高质量代谢物。该方法允许对单培养与共培养相关的可重复谱学模式进行比较分析。共培养谱显示出衍生自两种生物的特征,以及两种单培养中均未观察到的额外信号,表明对峙诱导的化学重塑超出了个体代谢谱的简单叠加。可扩散代谢物呈现相似趋势,且条件特异性变化更为明显。为识别共培养期间被诱导和被抑制的特征,我们使用limma包进行差异分析,将每个互作分别与相应真菌单培养(I–F)和枯草芽孢杆菌单培养(I–Bc)比较。约100个挥发性特征和数量显著更多的可扩散质谱特征在条件间显示出统计学显著的强度差异(P值 < 0.05且FDR < 0.05)(补充图2和3)。由于I–F对比可能将真菌单培养中缺失或接近背景的细菌相关特征标记为“诱导”,我们使用Venn集合运算联合解读互作vs.真菌(I–F)与互作vs.细菌(I–Bc)两个对比中的差异模式(图3A)。在两个对比中,特征在FDR校正P值 < 0.05时被视为显著增加或减少;满足该标准且|log₂FC| > 0.01的特征用于Venn集合运算,如材料与方法所述。相对于产生该特征的单培养在共培养中减少的特征被归类为“细菌受抑”(I)或“真菌受抑”(II)。同时,当特征在共培养中的丰度超过对侧伙伴单培养基线时,将其归类为细菌主导或真菌主导:“细菌主导”(III)若在(I–F)中增加;“真菌主导”(IV)若在(I–Bc)中增加。需要强调的是,“主导”指相对于对侧伙伴的富集,而非相对于产生菌单培养的稳定性;因此,一个特征可以是细菌受抑的(在I–Bc中降低)同时仍是细菌主导的(高于I–F)。相对于两种单培养均在共培养中显著富集的特征被归类为“互作增效”(V)候选。代表性行为……(原文该段在此处截断)。
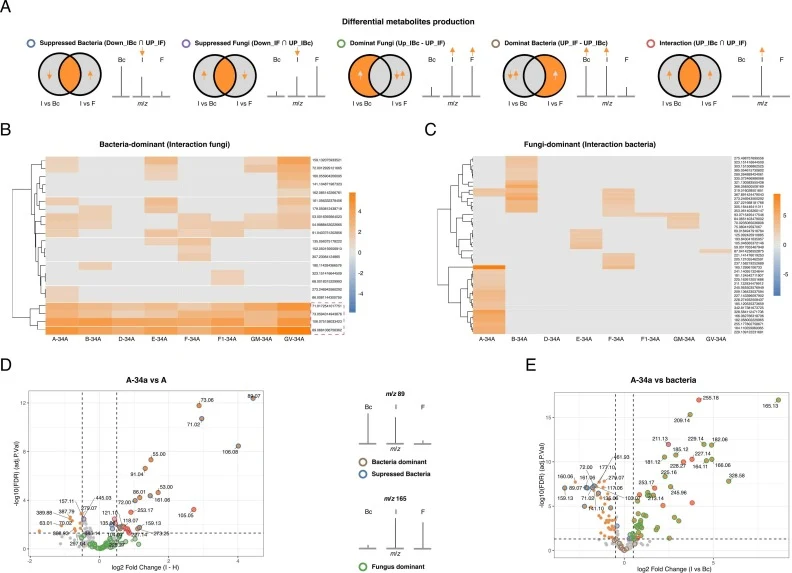
【数据】质谱方法:LTP-MS(挥发性/半挥发性)、DLI-ESI-MS(可扩散/较高质量);差异分析:limma包;显著性阈值:P < 0.05、FDR < 0.05;Venn运算阈值:|log₂FC| > 0.01;挥发性差异特征:约100个;分类:I细菌受抑、II真菌受抑、III细菌主导、IV真菌主导、V互作增效
讨论与解读
本研究指向一个核心判断:34a的拮抗并非组成型抗菌产物输出,而是互作依赖的代谢重塑。代谢组与基因组证据共同表明,不同的互作真菌分离物差异化地激活细菌生物合成途径,形成与拮抗活性相关联的独特化学环境,凸显了双向微生物互作在生物防治中的意义。全基因组测序将34a的物种身份确定为枯草芽孢杆菌(ANI = 98.5%),为解读其拮抗表型提供了基因组框架。基因组挖掘揭示了一批编码环状脂肽及其他次级代谢产物的BGC,包括表面活性素、丰原素、杆状烯、杆菌铁载体、杆菌溶素、普切明酸和枯草菌素A。值得注意的是,未鉴定到伊枯草菌素或杆菌霉素生物合成簇,这与DLI-ESI-MS谱中表面活性素同系物成为对峙期间诱导的最丰富脂肽相一致。然而,代谢组谱显示,这些生物合成途径的存在并不必然转化为组成型的代谢物产物(原文该段在此处截断)。
编译者解读:该研究的方法学亮点在于用两种原位质谱把“挥发长程信号”与“接触依赖扩散物”拆开观察,避免了传统平板对峙只能看抑菌圈的盲区。对合成生物学而言,其价值在于把BGC预测与互作代谢组对接,提示异源表达或共培养诱导可作为唤醒沉默簇的切入口。局限也明显:节选未给出具体产量与定量效价,互作增效化合物的结构鉴定仍待完成,离工程化菌剂还有距离。
参考来源
期刊:Microbiological Research, 2027
DOI: 10.1016/j.micres.2026.128777
DOI: 10.1016/j.micres.2026.128777