来源:A new insight into galactomannan as a prebiotic: Modulating Clostridium butyricum metabolism to enhance serotonin biosynthesis in RIN14B cells(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
5-羟色胺(5-HT)是连接肠道与大脑的关键信号分子,而益生元能否通过调控肠道菌群代谢来促进其合成,此前缺乏直接证据。本研究以半乳甘露聚糖类益生元PHGG与产丁酸菌Clostridium butyricum为对象,发现单独使用PHGG或菌体均不影响5-HT生成,但二者发酵后的无细胞上清液使RIN14B细胞的5-HTP和5-HT水平显著升高,TPH1 mRNA上调39.6倍。研究进一步通过代谢组学与靶向短链脂肪酸定量,锁定丁酸与乙酸为关键效应分子,为肠道靶向合生元干预提供了机制依据。
研究背景
5-HT是一种进化上高度保守的单胺类神经递质,从单细胞生物到脊椎动物中均有分布。在哺乳动物体内,5-HT广为人知的功能包括情绪调节、情感平衡、认知功能以及睡眠-觉醒周期调控。近年来,其生物学功能不断被拓展:研究显示5-HT可通过影响巨噬细胞极化、树突状细胞功能、T细胞活性以及程序性死亡配体1的表达,在肿瘤免疫微环境中发挥重要调控作用。与此同时,5-HT系统失调与抑郁症、肠易激综合征、神经退行性疾病、代谢综合征及癌症等多种疾病密切相关。正因5-HT参与如此广泛的生理与病理过程,解析其调控机制已成为生命科学与医学研究的前沿议题。
5-HT由色氨酸经两步连续酶促反应合成:色氨酸首先被色氨酸羟化酶羟化为5-HTP,随后由多巴脱羧酶(Ddc)脱羧生成5-HT。5-HT的代谢周转……(原文此处节选结束)
部分水解瓜尔胶(PHGG)是一种半乳甘露聚糖类益生元,可调节肠道菌群、改善肠道功能。已知PHGG有利于丁酸产生菌(如C. butyricum)的生长,但PHGG是否通过调控肠道微生物代谢来促进5-HT产生,尚未见研究报道。
研究方法
2.1 材料
Clostridium butyricum ATCC 19398(CB)由中国海洋大学应用微生物实验室(中国青岛)提供。分子量为1–10 kDa、半乳糖/甘露糖比例为1:1.65的PHGG,参照本团队此前报道的方法(Fu et al., 2020),通过离心与超滤联合处理获得。短链脂肪酸标准品(琥珀酸、甲酸、乳酸、乙酸、丙酸、异丁酸、正丁酸)购自Sigma-Aldrich有限公司。其他化学试剂均为分析纯。
【数据】菌株:C. butyricum ATCC 19398;PHGG分子量:1–10 kDa;半乳糖/甘露糖比:1:1.65;SCFAs标准品:7种(琥珀酸、甲酸、乳酸、乙酸、丙酸、异丁酸、正丁酸);其他试剂:分析纯;其余原文未详述
2.2 丁酸梭菌培养与发酵上清液制备
C. butyricum在添加0.05%(w/v)L-半胱氨酸的强化梭菌培养基(RCM)肉汤中于37°C厌氧培养,直至达到对数生长后期。充分活化后,将RCM培养基中的培养物调整至10⁷–10⁸ CFU/mL浓度。收集菌体(5000 × g,4°C,10 min),用磷酸盐缓冲液(PBS)洗涤两次,并重悬于模拟肠道培养基中。发酵在100 mL血清瓶中进行,工作体积为50 mL。C. butyricum种子悬液按2%(v/v)接种。培养在填充混合气体(85% N₂、10% CO₂、5% H₂)的厌氧工作站内进行,37°C、36 h、静置条件下不摇动、不搅拌。每个发酵组设n = 3个独立生物学重复。PHGG水溶液经0.22 μm膜过滤除菌,在无菌厌氧条件下补充至经高压灭菌的模拟肠道培养基中。基于既往体外发酵研究,选择10 mg/mL PHGG作为外加碳源,并以不添加碳水化合物的培养基孵育作为对照组。模拟肠道培养基配方基于Ren等(2025)的方法改良(Ren et al., 2025)。培养基由以下组分构成:酪蛋白(10 g/L)、酵母提取物(2.5 g/L)、NaCl(1.782 g/L)、KH₂PO₄(0.891 g/L)、CaCl₂(0.0528 g/L)、MgCl₂·6H₂O(0.0396 g/L)、MnCl₂·4H₂O(0.0198 g/L)、CoCl₂·6H₂O(0.0198 g/L)、(NH₄)₂SO₄(1.782 g/L)、K₂HPO₄(0.89 g/L)、EDTA二钠(C₁₀H₁₄N₂Na₂O₈·2H₂O,5 mg/L)、FeSO₄·7H₂O(2 mg/L)、H₃PO₄(0.3 mg/L)、CuCl₂·2H₂O(0.01 mg/L)、NiCl₂·6H₂O(0.02 mg/L)、Na₂MoO₄·2H₂O(0.03 mg/L)、半胱氨酸-HCl(1 g/L)、刃天青(1 mL/L)、维生素B1(2 mg/L)、维生素B2(0.05 mg/L)、维生素B3(2 mg/L)、维生素B5(2 mg/L)、吡哆醇(维生素B6,2 mg/L)、维生素B12(0.005 mg/L)、对氨基苯甲酸(0.1 mg/L)和氯化血红素(1.25 mg/L)。模拟肠道培养基pH调节至6.5–7.0。孵育结束后,培养液离心(12000 × g,4°C,10 min)。菌体沉淀重悬于无菌Hank's平衡盐溶液(HBSS)中。无细胞发酵上清液经0.22 μm膜过滤,于−80°C保存,最长不超过2周。
【数据】L-半胱氨酸:0.05%(w/v);接种浓度:10⁷–10⁸ CFU/mL;菌体收集:5000 × g、4°C、10 min;工作体积:50 mL;接种量:2%(v/v);气相:85% N₂、10% CO₂、5% H₂;温度:37°C;时间:36 h;PHGG浓度:10 mg/mL;培养基pH:6.5–7.0;上清离心:12000 × g、4°C、10 min;保存:−80°C、≤2周;生物学重复:n = 3
2.3 丁酸梭菌培养过程中OD600与pH变化的测定
分别于0、6、12、24和36 h收集发酵产物。通过测定600 nm吸光度(OD600)监测发酵液中的细菌群落。pH值使用Mettler Toledo pH计Five Easy Plus FE28(Greifensee,瑞士)测定。
【数据】取样时间点:0、6、12、24、36 h;检测波长:600 nm;pH计型号:Mettler Toledo Five Easy Plus FE28;其余原文未详述
2.4 RIN14B细胞培养与细胞毒性测定
RIN14B细胞(上海雅吉生物科技有限公司提供)为大鼠胰岛肿瘤细胞系,于含10% FBS的RPMI-1640中、37°C、5% CO₂加湿 atmosphere 条件下培养。用于5-HT分泌检测时,细胞先用含0.1%牛血清白蛋白和2 μmol/L盐酸氟西汀的低浓度洗涤缓冲液短暂洗涤。这一标准化的低剂量氟西汀预处理是RIN14B 5-HT分泌测定的已验证方案(Tian et al., 2021)。超低浓度氟西汀特异性抑制SERT介导的5-HT再摄取,而不影响细胞活力、基础基因表达或固有的5-HT生物合成功能,从而避免内源性5-HT再摄取导致的细胞分泌能力被低估。所有发酵上清液在刺激细胞前均严格进行pH中和与渗透压平衡,以消除组间离子与渗透压差异。F-PHGG上清液原始pH约为4.6,用800 μL 0.1 mol/L NaOH调节至6.86。F-CK上清液(初始pH ≈ 6.0)用300 μL 0.1 mol/L NaOH滴定至6.8–6.9。为消除不同体积NaOH造成的钠浓度与渗透压差异,向F-CK组补充500 μL 0.1 mol/L NaCl。该补偿使两组外源引入的总钠含量相等,F-PHGG与F-CK均补充相同体积的800 μL 0.1 mol/L含钠溶液,从而实现完全一致的离子强度与渗透压。严格统一pH与渗透压后,进行后续细胞孵育与代谢物检测。随后加入1 mL pH 6.8–7.0的发酵上清液,细胞于37°C孵育6 h。共孵育后收集上清液,于4°C、12000 × g(管底最大g力)离心10 min获得待测上清;贴壁细胞用PBS洗涤三次,随后于Trizol中裂解用于RNA提取与PCR(Tian et al., 2021)。RIN14B细胞分别用不同浓度PHGG溶液(1000、500、100、50和20 μg/mL)处理6 h,以及C. butyricum(10⁸、10⁷、10⁶、10⁵和10⁴ CFU/mL)处理2 h。此外,细胞用PHGG发酵上清液处理6 h,以未加PHGG孵育的C. butyricum无细胞发酵上清液(F-CK)作为对照。细胞培养基与CCK-8溶液按9:1体积比混合,孵育30 min。于450 nm波长测定各处理吸光度。RIN14B细胞分别暴露于丁酸(1105.59 μg/mL)、乙酸(541.71 μg/mL)、3-甲基戊二酸(100 μmol/L)、反式肉桂酸(50 μmol/L)和α-羟基异丁酸(20 μmol/L),上述浓度分别定义为这五种代谢物的1×浓度。纯代谢物工作液经系列稀释并于HBSS缓冲液中配制,而非用NaOH中和。所有配制的工作液在细胞处理前均调节并验证pH为6.8–7.0。设置三个浓度水平(0.1×、1×和10×),以表征代谢物对RIN14B细胞5-HT代谢的剂量-效应关系。
【数据】FBS:10%;CO₂:5%;氟西汀:2 μmol/L;BSA:0.1%;F-PHGG原始pH:约4.6;NaOH:800 μL、0.1 mol/L;F-CK初始pH:约6.0;NaOH:300 μL、0.1 mol/L;NaCl补偿:500 μL、0.1 mol/L;总补钠体积:800 μL;孵育:37°C、6 h;离心:12000 × g、4°C、10 min;PHGG浓度梯度:1000、500、100、50、20 μg/mL;菌浓度梯度:10⁸、10⁷、10⁶、10⁵、10⁴ CFU/mL;CCK-8比例:9:1;孵育:30 min;检测波长:450 nm;丁酸:1105.59 μg/mL;乙酸:541.71 μg/mL;3-甲基戊二酸:100 μmol/L;反式肉桂酸:50 μmol/L;α-羟基异丁酸:20 μmol/L;浓度水平:0.1×、1×、10×
2.5 LC-MS/MS定量Trp、5-HTP与5-HT
无细胞发酵上清液中色氨酸(Trp)、5-HTP和5-HT的浓度采用液相色谱-串联质谱(LC-MS/MS)测定(Xie et al., 2024)。简言之,无细胞发酵上清液以1:3的上清/乙腈比例用乙腈去蛋白,随后冻干。冻干样品进样前复溶用于LC-MS/MS分析。色谱分离在ACQUITY UPLC HSS T3柱(2.1 mm × 100 mm,1.8 μm)上进行。流动相A为含0.1%甲酸的水,流动相B为含0.1%甲酸的乙腈。所有分析物在正离子多反应监测模式下检测。色谱分离采用如下线性梯度:0–4 min,5%–40% B;4–6 min,40%–80% B;6–8 min,80% B;8.1–13 min,80%–5% B。LC-MS/MS系统操作控制使用Analyst(版本1.6.2),定量分析使用MultiQuant软件(版本3.0.1)(原文此处节选结束)。
【数据】去蛋白比例:上清:乙腈 = 1:3;色谱柱:ACQUITY UPLC HSS T3(2.1 mm × 100 mm,1.8 μm);流动相A:0.1%甲酸水;流动相B:0.1%甲酸乙腈;离子模式:正离子MRM;梯度:0–4 min 5%–40% B、4–6 min 40%–80% B、6–8 min 80% B、8.1–13 min 80%–5% B;软件:Analyst 1.6.2、MultiQuant 3.0.1
研究结果
3.1 丁酸梭菌、PHGG及丁酸梭菌发酵产物对RIN14B细胞活力的调控作用
在评估促5-HT生成调控作用之前,先通过细胞活力实验评估PHGG与C. butyricum对RIN14B细胞的毒性。PHGG在所有测试浓度下均促进细胞活力,500 μg/mL时达到最大活力125%(图S1A)。同样,C. butyricum在10⁴至10⁸ CFU/mL的所有测试浓度下,细胞活力均保持在100%以上(图S1B)。为验证PHGG能否被C. butyricum代谢以增强5-HT相关效应,本研究进行了单菌发酵(图S2A)。前12 h内OD值从0.15升至0.45(图S2B),pH显著下降(图S2C)。在6 h内评估了PHGG与C. butyricum共孵育的无细胞发酵上清液(F-PHGG)对RIN14B细胞的细胞毒性(图S2D)。F-PHGG与F-CK处理下细胞活力均保持在90%以上。
【数据】PHGG最大活力:125%(500 μg/mL);菌浓度范围:10⁴–10⁸ CFU/mL,活力>100%;OD:0.15→0.45(12 h内);细胞活力:>90%(F-PHGG、F-CK,6 h)
3.2 丁酸梭菌发酵PHGG对RIN14B细胞5-HT合成的影响
RIN14B细胞系已被公认为肠嗜铬(EC)细胞的功能替代模型,并在多项研究中得到广泛记载,是研究EC细胞功能的合适模型(Nozawa et al., 2009; Tian et al., 2021)。为探究C. butyricum、PHGG以及PHGG与C. butyricum发酵产物是否促进5-HT合成,使用RIN14B细胞进行体外实验。5-HT代谢通路如图1A所示。Trp首先由TPH1羟化为5-HTP,再由Ddc脱羧生成5-HT,5-HT可进一步被MAOA降解。在PHGG、未加PHGG孵育的C. butyricum菌体(CB-CK)及HBSS对照刺激后,检测RIN14B细胞中5-HT代谢相关基因的表达谱。就5-HT合成而言,PHGG与CB-CK下调了TPH1和Ddc的mRNA表达(图1E和F)。对于5-HT降解基因MAOA,CB-CK相对于PHGG和HBSS组诱导显著上调(p < 0.001)(图1G)。与这些基因表达结果一致,LC-MS分析在PHGG与CB-CK细胞培养中未观察到可检测的5-HT分泌。为阐明发酵上清液对5-HT合成的影响,用F-PHGG、F-CK及PHGG孵育的C. butyricum洗涤菌体(CB-PHGG)处理RIN14B细胞6 h,培养上清液经LC-MS分析。同时进行平行无细胞对照孵育,即F-PHGG与F-CK发酵上清液在37°C、无RIN14B细胞条件下孵育6 h,以定量来源于发酵液的内在代谢物背景。原始总代谢物浓度见图1B–D。净值为每个RIN14B共孵育样品的实测值减去相应无细胞对照,以区分RIN14B细胞新产生或消耗的代谢物与发酵来源的残留代谢物。如图1B所示,F-PHGG与RIN14B细胞共孵育后残留色氨酸(Trp)浓度下降,表明细胞对该5-HT前体进行了摄取与消耗。F-PHGG代谢物显著增强了5-HTP和5-HT的产生。5-HTP是Trp经限速酶TPH1生成的代谢物,是5-HT合成的直接前体(Nonogaki & Kaji, 2025)。与RIN14B细胞孵育后,F-PHGG组5-HTP进一步显著升高(图1C),较F-CK对照高2.03倍(p < 0.001)。值得注意的是,无细胞发酵上清液中5-HT几乎检测不到。F-PHGG代谢物强烈刺激RIN14B细胞分泌5-HT(图1D),较F-CK对照增加3.6倍,达到16.4 ng/mL(p < 0.001)。相比之下,CB-PHGG处理未引起Trp、5-HTP或5-HT水平的明显变化。从转录水平限速基因表达结果看,与HBSS对照相比,F-PHGG使TPH1 mRNA表达显著上调约39.6倍(图1E,p < 0.001)。然而,CB-PHGG处理未使TPH1和Ddc基因表达明显增加(图1E和F)。F-PHGG与CB-PHGG均诱导降解基因MAOA中度上调(图1G)。LC-MS与qRT-PCR数据的一致性提示,F-PHGG通过增强关键生物合成酶的转录来促进5-HT合成。
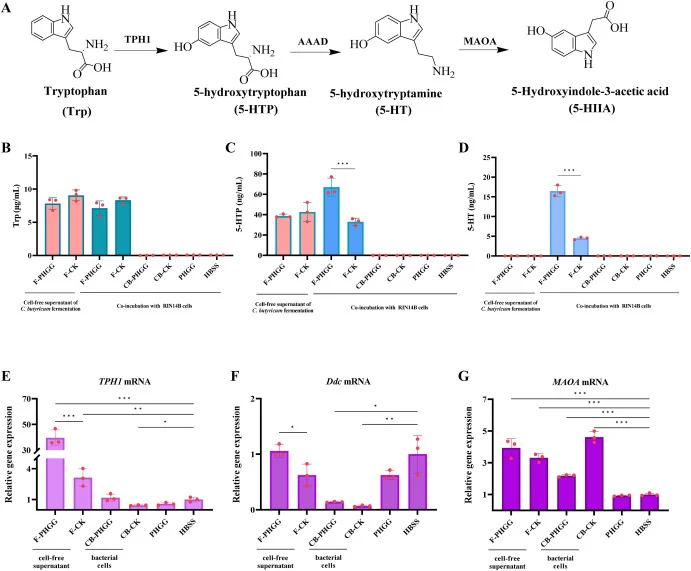
应承认RIN14B肿瘤来源模型的重要固有局限。第一,RIN14B源自胰腺神经内分泌肿瘤,缺乏天然肠道上皮微环境以及原代肠道EC细胞、肠神经元、免疫细胞和上皮细胞之间存在的生理性细胞间通讯(Tian et al., 2021)。第二,与原发性未转化肠嗜铬细胞相比,肿瘤来源细胞系在细胞内信号传导和代谢谱方面存在固有改变(Yano et al., 2015)。第三,这一简化体外系统无法重现肠道内发生的复杂宿主-微生物群互作(Qi et al., 2023)。因此,RIN14B获得的结果不能不加谨慎地直接外推至完整结肠黏膜。该细胞实验数据仅作为支持性体外证据。不能仅凭这些细胞培养观察推断关于肠-脑轴调控的结论。因此,未来生理学研究需要使用原代肠道肠嗜铬细胞或肠道类器官模型进一步验证。Liu等(2023)发现,仅解淀粉芽孢杆菌上清液显著上调RIN14B细胞中TPH1表达,而不添加任何细菌发酵上清液时未观察到效应(Liu et al., 2023)。类似地,短双歧杆菌CCFM1025的无细胞上清液被证明可增加肠道类器官中TPH1转录,乙酸为关键效应分子(Tian et al., 2025)。5-HT被认为是重要的神经递质,近年来人们越来越关注促进5-HT产生的微生物代谢物。同样,本研究表明PHGG经C. butyricum发酵后的上清液可增加RIN14B细胞5-HT产生,而单独PHGG或C. butyricum无此效应。因此,需进一步研究阐明发酵上清液中的关键代谢物。
【数据】5-HTP:较F-CK高2.03倍(p < 0.001);5-HT:16.4 ng/mL,较F-CK高3.6倍(p < 0.001);TPH1 mRNA:上调约39.6倍(p < 0.001);MAOA:CB-CK组显著上调(p < 0.001);CB-PHGG:Trp/5-HTP/5-HT无明显变化;孵育时间:6 h;孵育温度:37°C
3.3 丁酸梭菌发酵PHGG的非靶向代谢组学轮廓
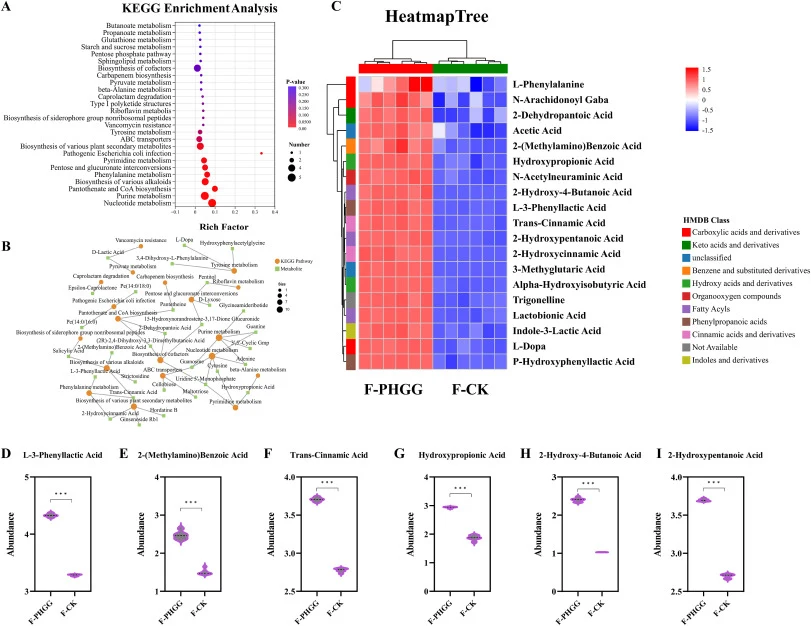
为探究C. butyricum中与5-HT生物合成相关的关键代谢物,对36 h发酵上清液进行非靶向代谢组学分析。图2A显示样品间相关矩阵。F-PHGG与F-CK组内所有生物学重复均表现出高相关系数(>0.85)。应用主坐标分析(PCA)可视化代谢差异。如图2B所示,PC1和PC2分别解释总方差的83.20%和4.47%。F-PHGG与F-CK组沿PC1明显分离,表明PHGG发酵诱导了C. butyricum代谢组的深刻改变。为进一步最大化组间区分,进行偏最小二乘判别分析(PLS-DA)。PLS-DA得分图显示两组明显分离且无重叠(图2C)。该结果与既往关于产丁酸菌发酵不可消化碳水化合物的研究一致。Fu等(2020)报道猪粪便微生物群的代谢特征显著……(原文此处节选结束)
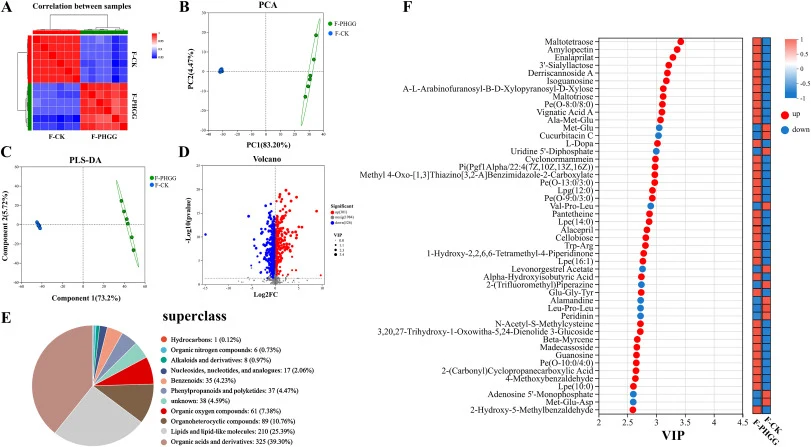
【数据】相关系数:>0.85;PC1:83.20%;PC2:4.47%;发酵时间:36 h;分组:F-PHGG vs F-CK;其余原文未详述
讨论与解读
本研究揭示了一个新观点:源自PHGG的半乳甘露聚糖可调控C. butyricum的代谢谱,从而促进RIN14B细胞的5-HT生物合成。单独使用PHGG或C. butyricum处理RIN14B细胞时,均未观察到促5-HT生成效应;而PHGG经C. butyricum发酵后,促进效应显著增强。与对照组相比,PHGG发酵C. butyricum上清液处理使RIN14B细胞5-HTP(28.2 ng/mL)和5-HT(16.4 ng/mL)分泌明显增加,同时TPH1 mRNA增强39.6倍。代谢组学分析显示,PHGG经C. butyricum发酵诱导了广泛的代谢改变,短链脂肪酸靶向定量进一步证实SCFAs产量显著增加,丁酸升至1105.59 μg/mL、乙酸升至541.71 μg/mL。在测试的代谢物中,丁酸和乙酸分别将5-HT分泌促进至0.584 ng/mL和0.580 ng/mL,并相对于HBSS空白对照分别上调TPH1 mRNA 4.2倍和4.0倍。免疫荧光染色进一步证实两种酸均增强TPH1蛋白表达。该研究为将PHGG开发为调节肠道来源5-HT产生的益生元候选物提供了新视角。但需注意,本研究仅在细胞水平开展,任何……(原文此处节选结束)
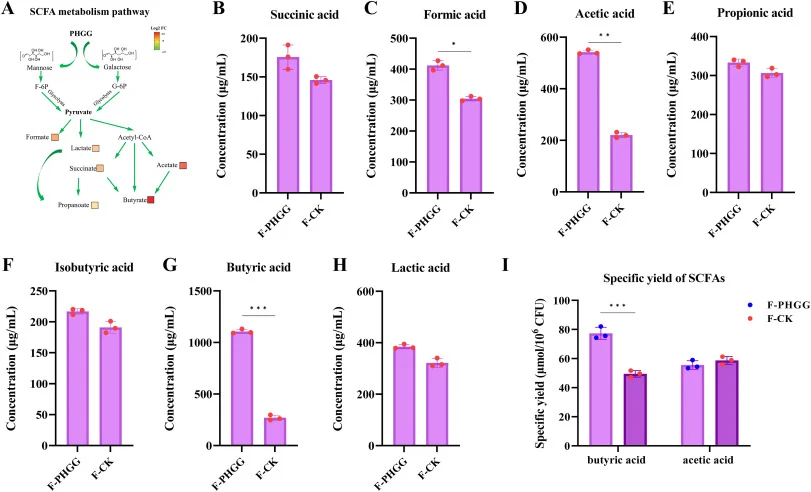
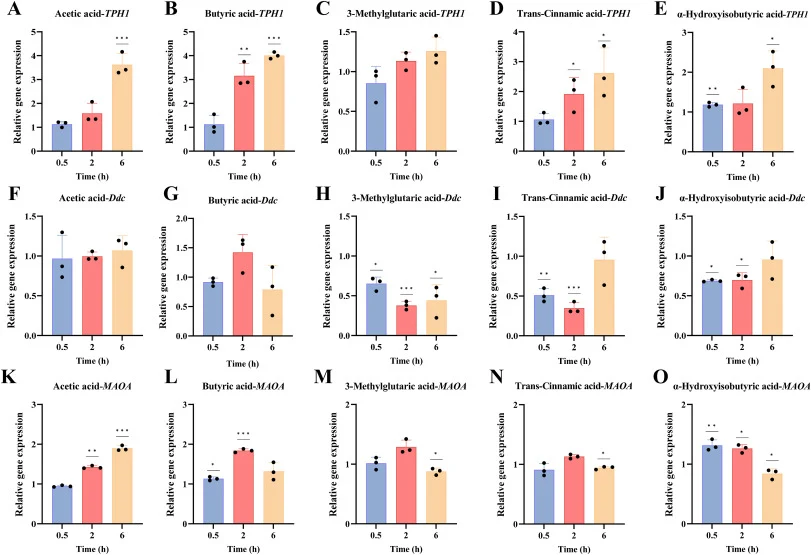
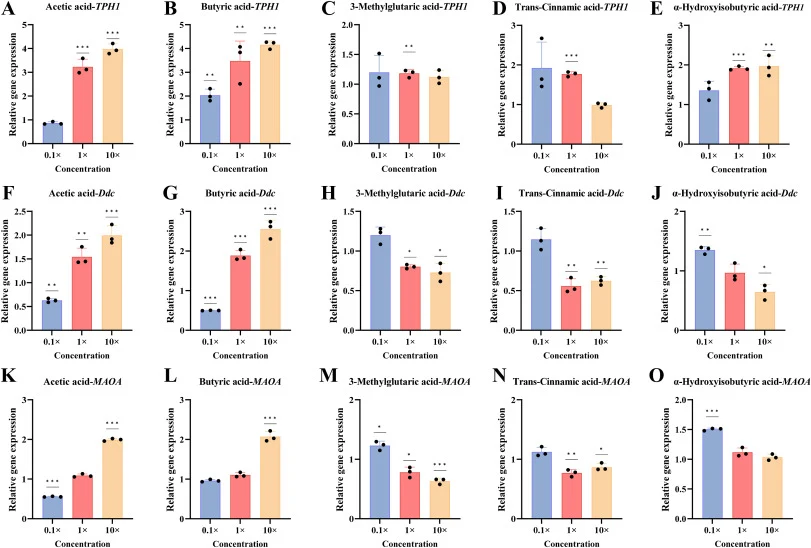
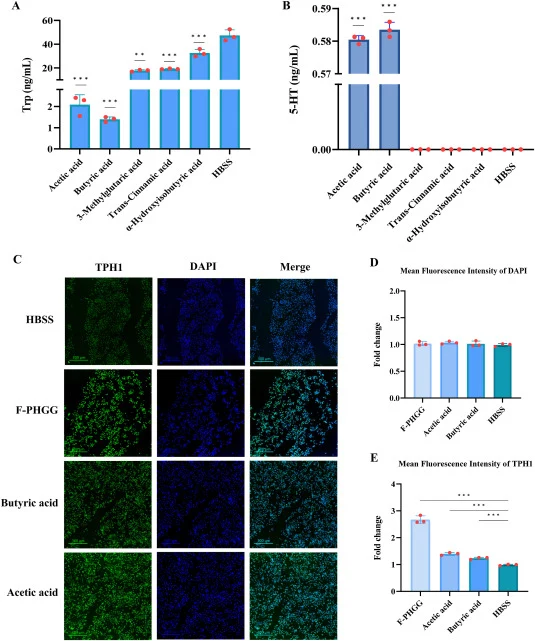
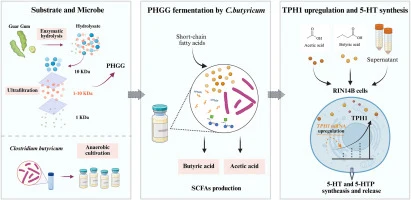
编译者解读:该研究的方法学亮点在于用"发酵上清 vs 单菌 vs 单糖"的三分设计干净地拆解了益生元-菌-代谢物-宿主细胞的因果链,并以无细胞对照扣除发酵本底,避免了把培养基残留误读为细胞合成。局限同样明显:RIN14B是胰腺肿瘤来源的替代模型,缺乏原代EC细胞的微环境;且丁酸、乙酸在1×浓度下的直接效应(0.58 ng/mL级)远低于发酵上清的整体效应(16.4 ng/mL级),提示上清中其他代谢物或协同作用尚未解析。对合成生物学而言,这提示未来可构建可控释放SCFAs的工程菌株,在肠道原位复现这一"益生元-菌群-宿主"代谢回路。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110278
DOI: 10.1016/j.fbio.2026.110278