来源:Engineered Pseudomonas putida reconfigures metabolic fluxes during muconate bioproduction from lignin-related aromatics(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
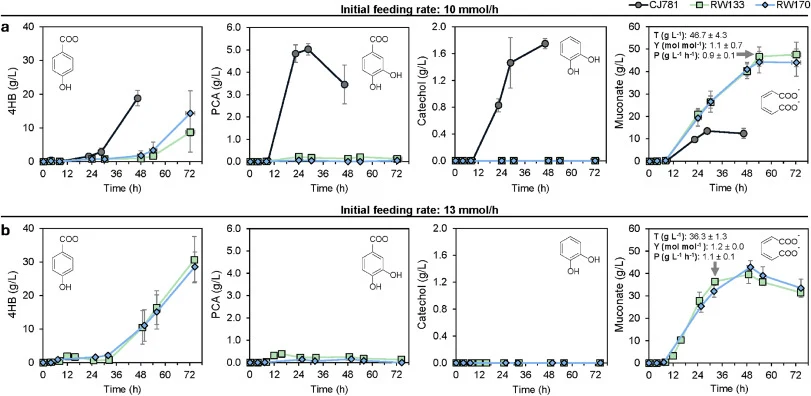
粘康酸是可由木质纤维素(含木质素相关芳香族化合物)生物法生产的平台化学品。恶臭假单胞菌KT2440经改造后能以定量摩尔产率将芳香族化合物转化为粘康酸,但这一高原子效率过程需要补充碳源和能源以支撑菌体生长,其中心碳代谢效率及与芳香族分解代谢的互作尚未被充分解析。本研究整合蛋白质组学、代谢组学和13C代谢通量分析,定量比较了野生型KT2440与产粘康酸菌株CJ781的中心碳与能量代谢,揭示了葡萄糖摄取增强、通量重排、有机酸外排增加以及ATP/NADPH供给过剩的代谢特征,并通过柠檬酸合酶过表达与儿茶酚双加氧酶、原儿茶酸脱羧酶的表达调控,将粘康酸产量提升至36.3 g L-1(1.1 g L-1 h-1)。
研究背景
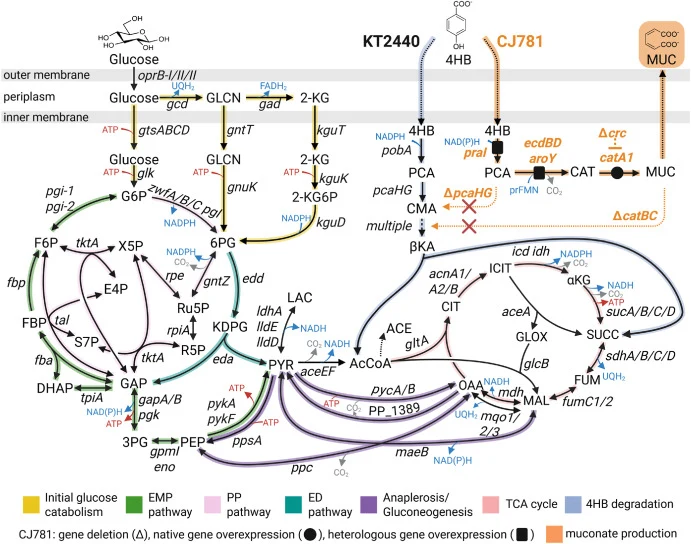
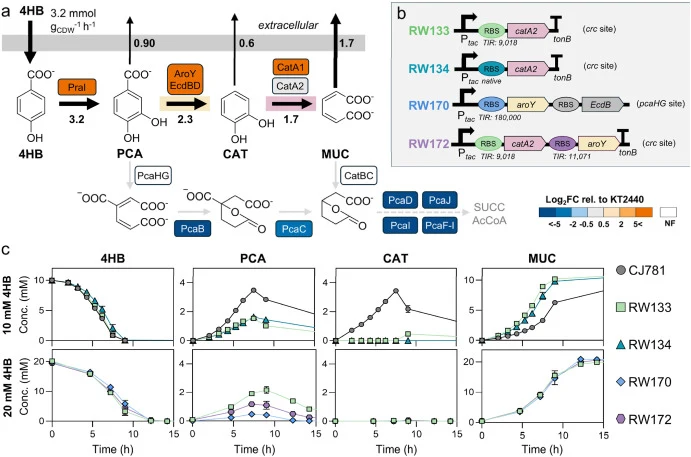
木质素相关芳香族化合物可经原子经济性路线转化为多种生物产品,包括顺,顺-粘康酸(下称粘康酸)、β-酮己二酸和2-吡喃酮-4,6-二羧酸。粘康酸因可直接替代己二酸等石化产品、或转化为性能优势生物产品而备受关注,被视为"生物特权"分子。木质素相关的羟基苯甲酸类(如4-羟基苯甲酸4HB和香草酸)可经AroY介导的原儿茶酸(PCA)脱羧生成儿茶酚,再由儿茶酚1,2-双加氧酶CatA开环生成粘康酸(图1)。敲除pcaHG与catBC可阻断芳香碳流向琥珀酸和乙酰辅酶A、进而进入生物质与能量代谢。恶臭假单胞菌KT2440因遗传操作工具成熟、分解代谢谱广、耐受性强、产物滴度高,已成为芳香族生物转化的平台菌株。过去十年,该团队通过敲除crc分解代谢阻遏蛋白、过表达vanAB编码的香草酸单加氧酶、过表达与AroY辅因子异戊烯化黄素单核苷酸(prFMN)生成相关的ecdBD等策略,持续提升KT2440从羟基苯甲酸生产粘康酸的效率。
研究方法
菌株构建
恶臭假单胞菌KT2440衍生菌株按此前所述方法构建,具体细节见表S3–S5。简言之,无标记基因缺失与插入使用pK18sB载体完成,同源臂长1000碱基对,采用sacB/KanR反向筛选。gltA的过表达通过丝氨酸重组酶辅助基因组工程(SAGE)实现,使用pJH0419载体靶向RW147(含BxB1_RV_phi370盒的CJ781衍生菌株)中的BxB1位点。对于过表达靶标,各基因序列的核糖体结合位点按此前所述使用Salis优化工具进行优化。所有质粒订购自TWIST Biosciences,或按表S4所述使用New England Biolabs HiFi Gibson组装混合液组装。转化子经菌落聚合酶链反应筛选,并在Plasmidsaurus通过Oxford Nanopore测序确认。正确的菌落转化子在30 °C于Luria-Bertani(LB)培养基(Lennox)中过夜培养,并以20%(v/v)甘油菌形式保存于−80 °C。
【数据】同源臂长度:1000 bp;培养基:LB(Lennox);温度:30°C;保存浓度:20%(v/v)甘油;培养时间:过夜;抗性标记:KanR;反筛标记:sacB
培养基与细菌培养
细胞在LB培养基或改良M9基本培养基(6.78 g L−1 Na2HPO4、3 g L−1 KH2PO4、0.5 g L−1 NaCl、1 g L−1 NH4Cl、2 mM MgSO4、100 μM CaCl2、18 μM FeSO4)中培养,培养基含20 mM葡萄糖,或20 mM葡萄糖加不同浓度的4HB。葡萄糖以无菌2 M母液补加至M9基本培养基中,终浓度20 mM。4HB添加时,先配制100 mM母液:用水溶解并用5 M NaOH滴定增溶和中和该芳香族化合物,再加入葡萄糖和M9基本培养基组分,配制成含20 mM葡萄糖的M9基本培养基中4HB终浓度分别为5 mM、10 mM或20 mM。对于13C示踪实验,培养基含5 mM未标记4HB和20 mM葡萄糖,其中葡萄糖为100% [1-13C]-葡萄糖、100% [6-13C]-葡萄糖,或[U-13C6]-葡萄糖与未标记葡萄糖的等摩尔混合物(50:50)。培养基用于细菌培养前均经0.2 μm孔径过滤除菌。培养基组分化学品购自Millipore Sigma,同位素示踪剂购自Cambridge Isotopes。所有实验中,甘油菌划线于LB琼脂平板,30 °C过夜培养。挑取单菌落(三重复)接种至含5 mL LB培养基的14 mL圆底Falcon®管中,30 °C、225 rpm培养12–15 h。这些LB种子培养液用M9盐溶液(6.78 g L−1 Na2HPO4、3 g L−1 KH2PO4、0.5 g L−1 NaCl、1 g L−1 NH4Cl)洗涤两次,然后接种至25 mL或5 mL实验培养基(仅含葡萄糖或葡萄糖加4HB的M9基本培养基)中,置于125 mL挡板瓶或14 mL管中,初始OD600为0.07。这些二级种子培养液再次转接至125 mL挡板瓶中的25 mL相同实验培养基,初始OD600为0.07,用于实验测定(图S22)。对于含20 mM葡萄糖与20 mM 4HB的培养物,在每个采样时间点用迷你pH计(HORIBA LAQUAtwin pH-33)监测瓶内pH,并用1 N NaOH调至pH 7。此外,在12 h时向这些培养物补加无菌2 M葡萄糖至终浓度20 mM,以确保有足够葡萄糖支撑20 mM 4HB向粘康酸的转化。所有培养物均在30 °C、225 rpm振荡条件下培养。
【数据】Na2HPO4:6.78 g L−1;KH2PO4:3 g L−1;NaCl:0.5 g L−1;NH4Cl:1 g L−1;MgSO4:2 mM;CaCl2:100 μM;FeSO4:18 μM;葡萄糖:20 mM;4HB:5/10/20 mM;初始OD600:0.07;LB种子培养:12–15 h、30°C、225 rpm;pH调节:1 N NaOH至pH 7;12 h补加葡萄糖至20 mM
生理表征
随时间收集细胞悬液样品,监测600 nm光密度(OD600)下的生长并定量胞外代谢物。代谢物定量样品经>10,000g离心5 min,上清通过0.22 μm尼龙Costar® Spin-X®离心管过滤器(Corning)过滤。所有过滤后的胞外样品保存于−20 °C待分析。测定OD与gCDW转换因子时,将对数生长期各细胞沉淀样品于−20 °C保存过夜,冻干24 h后称量干重生物质。生长速率通过将指数期时间点拟合至此前提及的生长模型确定。OD与gCDW转换因子通过对OD与gCDW之间线性拟合的回归分析确定(R2系数大于0.96)(表S1)。同样使用线性拟合,基于底物消耗和产物生成随时间变化的定量胞外曲线确定消耗与分泌速率。这些速率随后对生长速率和gCDW归一化。
【数据】离心:>10,000g、5 min;过滤孔径:0.22 μm;样品保存:−20°C;冻干:24 h;R2:>0.96;OD监测波长:600 nm
NAD+/NADH与ATP/ADP池测定
KT2440与CJ781细胞按上述方法培养并转接至仅含20 mM葡萄糖或20 mM葡萄糖加5 mM 4HB的培养基中。在对数生长期(OD600约0.5),从三个独立摇瓶中各取三个技术重复,每菌株每培养条件共九个1 mL样品。每个样品分装用于OD600测定、ATP/ADP测定(MAK135,Millipore Sigma)和NAD+/NADH测定(MAK468,Millipore Sigma)。两种测定中,细胞悬液均于室温5,000 g离心10 min,然后用磷酸盐缓冲液(PBS)洗涤。ATP/ADP测定中,洗涤后的细胞沉淀重悬于等体积PBS;NAD+/NADH测定中,洗涤后的细胞沉淀重悬于配套提取缓冲液。两种测定的提取与测定均按制造商说明进行。
【数据】OD600:约0.5;技术重复:3;生物学重复:3;每菌株样品数:9×1 mL;离心:5,000 g、10 min、室温;试剂盒:MAK135(ATP/ADP)、MAK468(NAD+/NADH)
胞内代谢物提取
在对数生长期(OD600约0.4–0.5),细胞按此前所述通过快速过滤和淬灭提取。时间点选择在各菌株葡萄糖与4HB共耗竭期间(图S1)。简言之,细胞过滤至0.45 μm滤膜上,用冷(−20 °C)2:2:1甲醇:乙腈:水溶液提取。裂解的细胞碎片于4 °C、>15,000 g离心1 min沉淀。提取物上清立即保存于−80 °C,或在N2气下吹干后保存于−80 °C直至HPLC-MS分析。
【数据】OD600:约0.4–0.5;滤膜孔径:0.45 μm;提取液:2:2:1甲醇:乙腈:水、−20°C;离心:>15,000 g、1 min、4°C;保存:−80°C
UHPLC-MS胞内与胞外代谢组学分析
胞内代谢物提取物与胞外环境的代谢组学分析按此前所述通过液相色谱-质谱(LC-MS)进行。简言之,Vanquish超高效液相色谱(UHPLC)系统(Thermo Scientific)与配备电喷雾电离、负离子模式运行的混合四极杆-Orbitrap™质谱仪(Q Exactive™;Thermo Scientific)联用。色谱使用2.1 × 100 mm反相C18柱、1.7 μm粒径(Water™;Acquity UHPLC BEH),柱温维持25 °C。流动相A为97:3 H2O:甲醇 + 10 mM三丁胺,流动相B为100%甲醇。分析使用两种色谱梯度。第一种:0–2.5 min,5% B;2.5–17 min,5% B至95% B线性梯度;17–19.5 min,95% B;19.5–20 min,95% B至5% B线性梯度;20–25 min,5% B。第二种:0–2.5 min,5% B;2.5–7.5 min,5% B至20% B线性梯度;7.5–13 min,20% B至55% B;13–18.5 min,55% B至95% B;18.5–19 min,95% B至5% B线性梯度;19–25 min,5% B。两种梯度流速均恒定为0.2 mL min−1。目标分析物基于纯标准品保留时间和单同位素质量,使用Metabolomic Analysis and Visualization Engine(MAVEN)和El-MAVEN软件鉴定。所有同位素体数据中13C天然丰度经手动校正。分析物定量使用商业标准品(Millipore-Sigma或Fishe……原文此处节选结束)获得。
【数据】色谱柱:2.1×100 mm、C18、1.7 μm;柱温:25°C;流动相A:97:3 H2O:甲醇+10 mM三丁胺;流动相B:100%甲醇;流速:0.2 mL min−1;梯度1:0–2.5 min 5%B、2.5–17 min 5→95%B、17–19.5 min 95%B、19.5–20 min 95→5%B、20–25 min 5%B;梯度2:0–2.5 min 5%B、2.5–7.5 min 5→20%B、7.5–13 min 20→55%B、13–18.5 min 55→95%B、18.5–19 min 95→5%B、19–25 min 5%B;电离模式:负离子
研究结果
野生型与产粘康酸菌株的整合13C通量组学、代谢组学与蛋白质组学分析
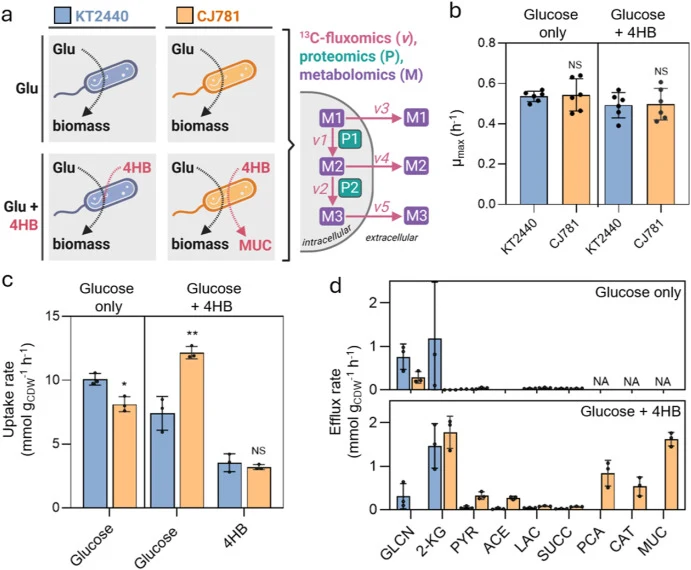
我们首先试图理解工程菌株CJ781(图1、表1)在产粘康酸与不产粘康酸条件下相对于野生型KT2440的代谢重排与能量学。为减轻芳香酸毒性响应、聚焦于异源粘康酸生产特有的变化,我们选择使用浓度最低(5 mM)、毒性最小的相关芳香族化合物4HB。据此,我们将KT2440与CJ781培养于补充20 mM葡萄糖、或20 mM葡萄糖加5 mM 4HB的M9基本培养基中(图2a)。为使细胞适应所用测试条件,种子培养液先在含实验底物的基本培养基中培养10–12 h,再接种实验培养物进行测定。这些比较旨在探究由CJ781基因型、4HB经改变后的芳香族分解代谢(PCA→儿茶酚→粘康酸)通量、以及粘康酸生产胁迫相对于KT2440所引起的代谢变化(图1)。我们注意到,CJ781在葡萄糖加4HB条件下发生的代谢变化,代表了对异源蛋白表达、中间体积累和粘康酸胁迫的综合响应。尽管CJ781不能将4HB转化为生物质,但在有无4HB条件下CJ781与KT2440的生长速率相当(图2b;表S1)。在4HB存在时,CJ781的滞后期比KT2440长约2 h,但在仅含葡萄糖时两菌株滞后期相似(图S1)。此外,各菌株与条件下每克细胞干重(gCDW)的蛋白质质量(g)相当,表明CJ781中五个蛋白编码基因的过表达未改变整体生物质蛋白分配(图S2)。相反,每克消耗葡萄糖对应的生物质克数(Yx/glu)在CJ781与KT2440间存在差异。仅含葡萄糖时,CJ781的Yx/glu比KT2440高25%(p = 0.014;非配对双尾t检验);而4HB存在时,CJ781的Yx/glu比KT2440低40%(p = 0.025;非配对双尾t检验)(表S1),表明产粘康酸期间葡萄糖向生物质转化存在差异。然而,每摩尔净消耗碳对应的生物质克数(计入分泌造成的碳损失与4HB碳向生物质的转化)在两菌株间相当:仅葡萄糖时约11.6 g mol carbon-1,葡萄糖加4HB时约8.8 g mol carbon-1,表明各生长条件下对生物质的投入相似,但代谢状态与溢流代谢存在差异。为探究这些葡萄糖代谢差异,我们在两种条件下对两菌株进行了13C代谢通量分析(通量组学)、代谢组学和蛋白质组学(图2a、表1)。三项分析均在葡萄糖与4HB同时耗竭的对数生长期收获细胞(图S3)。两菌株与生长条件蛋白质组的主成分分析显示生物学重复间高度一致,数据变异由基因型和底物组成驱动(图S4)。对于高分辨率13C通量组学,对两菌株与培养基组成平行开展100% [1-13C]、100% [6-13C]和50:50% [U-13C6]与未标记葡萄糖的示踪实验。在每个菌株与底物组成配对的高分辨率通量分析中,分析了中心碳代谢物与氨基酸的标记模式,总计多达321个质量同位素体(Excel文件1)。整个时程中每1–3 h测定生物质与胞外代谢物,以计算用于约束模型的摄取与外排速率(图2b–d;Excel文件1)。所有条件下,代谢通量分析的模型估计均达到统计学显著的模型拟合,且对外排与13C标记数据的加权残差平方和较低(表S2;图S5)。
【数据】4HB浓度:5 mM;葡萄糖:20 mM;种子预培养:10–12 h;滞后期差:约2 h;Yx/glu差异:+25%(p=0.014)、−40%(p=0.025);每摩尔碳生物质:约11.6 g mol carbon-1(仅葡萄糖)、约8.8 g mol carbon-1(葡萄糖+4HB);质量同位素体:最多321个;采样间隔:1–3 h;示踪剂:[1-13C]、[6-13C]、[U-13C6]葡萄糖
产粘康酸期间葡萄糖摄取与氧化为2-酮葡萄糖酸的速率增加
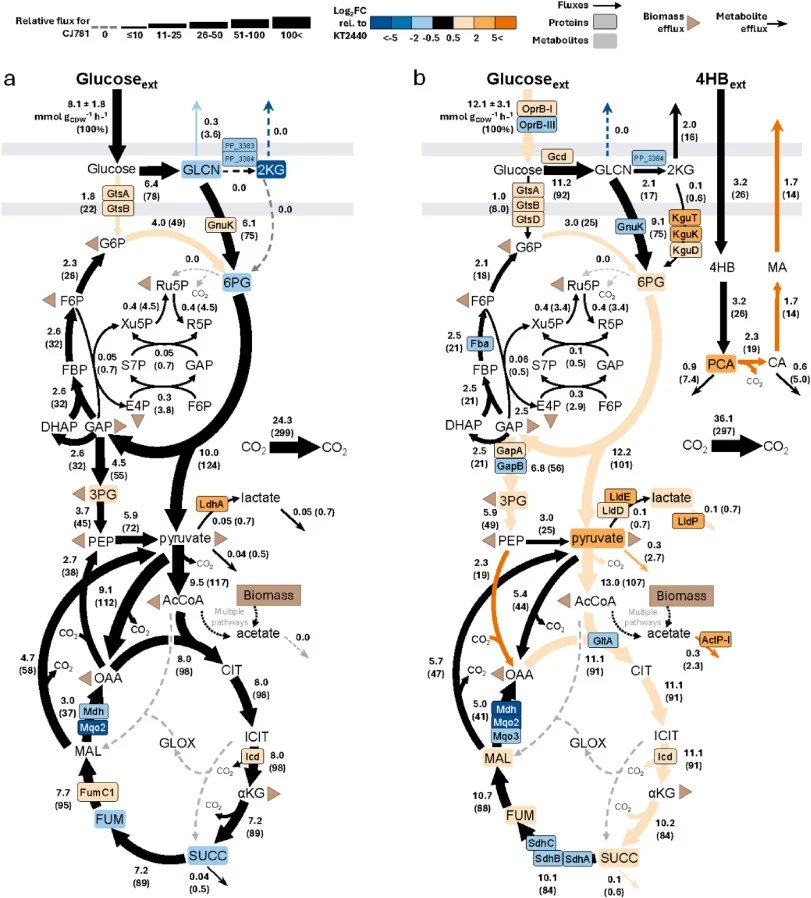
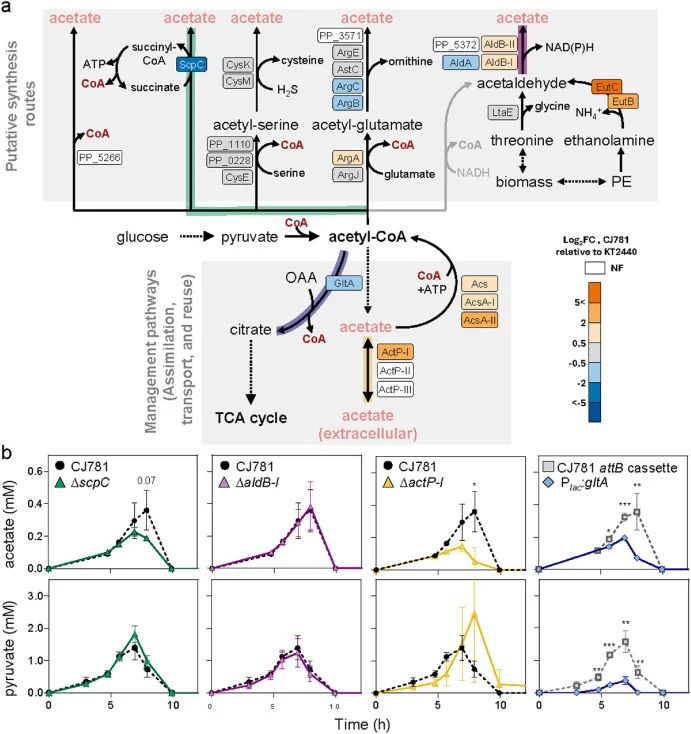
我们首先比较葡萄糖与4HB摄取速率。在葡萄糖加4HB培养时,CJ781的4HB摄取速率与KT2440相似,但葡萄糖摄取速率比KT2440高64%(图2c)。将葡萄糖转运至周质的通透酶OprB-I丰度同时增加2.2倍(图3b)。有趣的是,CJ781仅葡萄糖摄取速率(以碳当量计,72.9 ± 12.5 mM carbon gCDW -1 h-1)与KT2440葡萄糖与4HB累计碳摄取速率(69.2 ± 11.3 mM carbon gCDW -1 h-1)相近(图S6),提示CJ781可能存在代谢再平衡以补偿4HB不能同化进入生物质。反之,仅含葡萄糖时,CJ781的葡萄糖摄取速率比KT2440低20%(图2c)。因此,CJ781在葡萄糖与4HB共喂时观察到的摄取速率增加不能仅归因于基因型,而是环境响应与遗传背景互作的结果。我们接着考察周质葡萄糖氧化及葡萄糖酸与2-酮葡萄糖酸(2-KG)分泌的变化,因为经这些氧化与磷酸化途径的葡萄糖代谢差异可快速产生不同的能量与氧化还原化学计量(图1)。需注意,葡萄糖酸与2-KG通量精度较低,因其仅由葡萄糖酸与2-KG分泌约束(Excel文件1),故结合蛋白质、代谢物与通量数据考察这些途径(图2d、图3)。仅含葡萄糖时,CJ781表现出较低的葡萄糖酸分泌速率(占葡萄糖摄取速率的3.0 ± 1.6%),且无可测的2-KG分泌(图2d)。CJ781经葡萄糖磷酸化向胞质分流葡萄糖增加,这与转运蛋白(GtsA、GtsB;>1.8倍增加)和葡萄糖向葡萄糖-6-磷酸(G6P)通量(3.8倍增加)升高相印证(图3a)。此外,GnuK增加1.5倍,可支持经葡萄糖酸磷酸化途径的活性;同时周质葡萄糖酸脱氢酶PP_3383和PP_2284降低(分别降低2.6倍和3.4倍),胞内葡萄糖酸与2-KG池耗竭(分别降低3.9倍和>1,000倍),葡萄糖酸分泌降低(降低2.7倍)(图3a)。因此,仅含葡萄糖时CJ781经周质氧化反应流向2-KG的通量较少,经葡萄糖磷酸化的摄取升高,可能抵消了相对于KT2440较低的葡萄糖摄取速率(图2c)。相反,4HB存在时CJ781相对于KT2440的部分变化发生逆转。在葡萄糖与4HB培养时,CJ781以占葡萄糖摄取速率14.6 ± 3.0%的速率分泌2-KG,且无可测的葡萄糖酸分泌速率(图2d)。尽管GtsA与GtsB仍如仅葡萄糖时一样升高,但启动周质氧化生成葡萄糖酸的葡萄糖脱氢酶(Gcd)在葡萄糖与4HB条件下CJ781相对于KT2440增加1.7倍(图3a–b)。2-KG importer(KguT,增加25倍)及将2-KG转化为6-磷酸葡萄糖酸(6PG)的酶(KguK与KguD;分别增加6.3倍和3.8倍)蛋白丰度亦升高,6PG池增加2.2倍(图3)。在4HB存在时,CJ781的KguT、KguK与KguD相对于仅葡萄糖时亦升高达3.4倍(图S7)。这些蛋白水平与代谢物水平变化提示,CJ781在产粘康酸期间很可能表现出向2-KG通量增加,可能通过产生UQH2和FADH2的周质氧化反应支持快速能量生成。
【数据】葡萄糖摄取速率:+64%(葡萄糖+4HB)、−20%(仅葡萄糖);OprB-I:2.2倍;CJ781葡萄糖摄取:72.9 ± 12.5 mM carbon gCDW -1 h-1;KT2440累计碳摄取:69.2 ± 11.3 mM carbon gCDW -1 h-1;葡萄糖酸分泌:3.0 ± 1.6%(仅葡萄糖);GtsA/GtsB:>1.8倍;G6P通量:3.8倍;GnuK:1.5倍;PP_3383/PP_2284:降低2.6/3.4倍;胞内葡萄糖酸/2-KG:降低3.9/>1,000倍;葡萄糖酸分泌:降低2.7倍;2-KG分泌:14.6 ± 3.0%(葡萄糖+4HB);Gcd:1.7倍;KguT:25倍;KguK/KguD:6.3/3.8倍;6PG池:2.2倍;4HB条件下KguT/KguK/KguD:达3.4倍
粘康酸生产伴随中心碳代谢物积累与分泌
KT2440处理葡萄糖……(原文此处节选结束)
讨论与解读
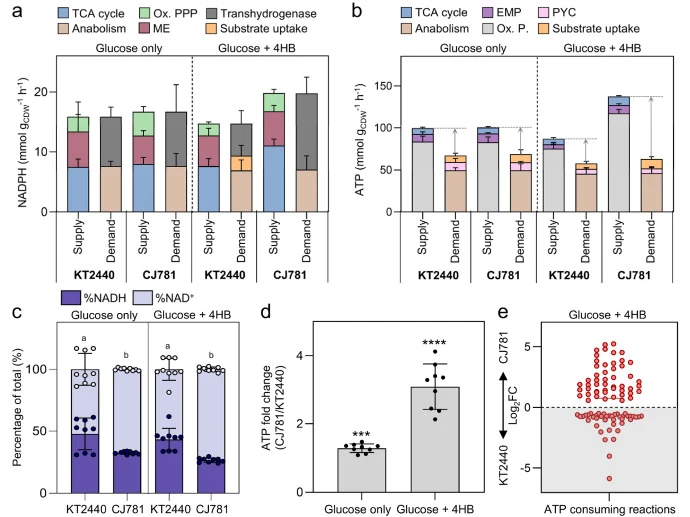
从木质素相关芳香族化合物生产粘康酸等芳香族分解代谢中间体,需要补充葡萄糖或乙酸等替代碳源以支撑生长。对于产物生成与生长解耦的分区途径菌株,优化关键在于理解产物合成与支配能量和生物质生成的细胞网络之间的代谢互作。本研究评估了此前构建的产粘康酸菌株CJ781,通过喂给含或不含4HB的葡萄糖,确定碳与能量代谢的重排并识别代谢瓶颈。野生型与工程化KT2440中心碳代谢的动态重塑此前已有报道,涉及对芳香族化合物、儿茶酚胁迫、氧化胁迫、苯甲酸到粘康酸生产以及异源蛋白生产的响应。与以儿茶酚为底物生产粘康酸不同,CJ781中异源4HB到粘康酸的生产触发了葡萄糖摄取增加、周质流向2-KG通量升高、氧化TCA循环通量增加,支撑了更高的总产量以及NADPH和ATP的表观过剩(图2–4),这更类似于异源蛋白生产或苯甲酸到粘康酸生产的通量重组。胁迫期间NADPH生成升高……(原文此处节选结束)
编译者解读
该研究把"产率已近理论极限"的粘康酸途径推进到"能量与辅因子层面"的再优化:用13C通量组学定位到TCA入口与周质氧化这两个可调节点,再以柠檬酸合酶过表达和儿茶酚双加氧酶/原儿茶酸脱羧酶表达调控实现36.3 g L-1、1.1 g L-1 h-1的滴度与速率。其价值在于证明分区途径菌株的瓶颈常不在途径本身,而在供给模块的氧化还原与能量平衡;局限是摇瓶与fed-batch规模、单一4HB底物,向真实木质素水解液与放大工艺外推仍需验证。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102573
DOI: 10.1016/j.ymben.2026.102573