来源:Trehalose biosynthesis mediated by PeTPS2 alleviates postharvest senescence of Pleurotus eryngii by maintaining cell wall structural homeostasis(Postharvest Biology and Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
杏鲍菇采后品质劣变快,低温贮藏虽能延缓衰老,却会引发冷胁迫。本研究从海藻糖代谢切入,鉴定出关键响应基因PeTPS2——一个兼具TPS与TPP双结构域的双功能酶。过表达PeTPS2使海藻糖含量提升近一倍,几丁质和β-1,3-葡聚糖含量同步上升,菌株对细胞壁胁迫和低温的耐受性显著增强。外源10 mM海藻糖处理则有效延缓了杏鲍菇采后褐变、失水与软化。研究为食用菌保鲜提供了代谢导向的新策略。
研究背景
杏鲍菇质地厚实、风味良好,富含优质蛋白、膳食纤维、B族维生素和必需矿物质,是广泛消费的食用菌。但其采后品质下降迅速,成为产业难题。采收后呼吸与蒸腾作用增强,导致失水、酶促褐变、组织软化和微生物腐败,货架期明显缩短。
低温贮藏(0–4°C)是常用手段,但杏鲍菇在长期低温下仍会遭受冷胁迫,表现为褐变、组织韧化、软化和风味损失。其中菌柄韧化是杏鲍菇区别于双孢蘑菇等食用菌的显著特征,与细胞壁组分改变和木质素沉积密切相关。生理层面,低温首先触发膜脂相变与过氧化,引起电解质泄漏和丙二醛大量积累。
海藻糖作为应激响应代谢物,在真菌、植物和昆虫中可稳定蛋白质与生物膜、防止分子聚集。然而,海藻糖代谢在杏鲍菇采后冷胁迫中的调控机制尚不清楚。本研究旨在鉴定海藻糖合成关键基因,通过过表达与外源处理两条路径,解析海藻糖缓解采后衰老的细胞壁相关机制。
研究方法
2.1 菌株材料
杏鲍菇菌株GIM5.344购自广东省微生物研究所,保存于马铃薯葡萄糖琼脂(PDA)培养基。载体pBHg-BCA1由福建农林大学微生物研究中心提供。遗传操作中,大肠杆菌DH5α用于质粒扩增,培养于LB培养基(含50 mg L⁻¹卡那霉素);根癌农杆菌GV3101用于杏鲍菇转化,培养于含50 mg L⁻¹卡那霉素和20 mg L⁻¹利福平的LB培养基。
【数据】菌株:P. eryngii GIM5.344、E. coli DH5α、A. tumefaciens GV3101;抗生素浓度:卡那霉素50 mg L⁻¹、利福平20 mg L⁻¹;培养基:PDA、LB
2.2 海藻糖含量测定
取500 mg菌丝体或子实体粉末,与5 mL 80%乙醇混合,于60 °C、20 kHz条件下超声提取1 h,每20 min间歇振荡一次。离心后收集上清,真空浓缩至干。残渣溶于600 μL双蒸水。取40 μL样品溶液稀释5–10倍,经0.22 μm水相膜过滤后HPLC分析。分离使用ZORBAX Carbohydrate色谱柱(5 μm,4.6 mm × 250 mm),流动相为70%乙腈,流速1.0 mL/min。进样量20 μL,示差折光检测器检测。海藻糖采用外标法定量:配制系列不同浓度海藻糖标准溶液,过滤后于相同色谱条件下分析,以峰面积对标准浓度作图建立校准曲线。
【数据】样品量:500 mg;提取液:5 mL 80%乙醇;超声温度:60 °C;频率:20 kHz;时间:1 h;复溶体积:600 μL;稀释倍数:5–10倍;滤膜孔径:0.22 μm;色谱柱:ZORBAX Carbohydrate(5 μm,4.6 mm × 250 mm);流动相:70%乙腈;流速:1.0 mL/min;进样量:20 μL
2.3 序列分析与克隆
杏鲍菇海藻糖代谢基因序列从Joint Genome Institute(JGI)数据库检索。杏鲍菇、肺形侧耳、灰树花和酿酒酵母(NCBI数据库检索)的TPS家族蛋白序列用ClustalW进行多序列比对。随后用MEGA(11.0版)以最大似然法(ML)构建系统发育树,采用Poisson模型/Jones-Taylor-Thornton(JTT)模型,1000次bootstrap重复。PeTPSs的保守蛋白结构域用InterPro在线工具(InterProScan,https://www.ebi.ac.uk/interpro/)鉴定,并与NCBI保守结构域数据库(CDD,https://www.ncbi.nlm.nih.gov/Structure/cdd/cdd.shtml)交叉比对。以杏鲍菇cDNA为模板扩增PeTPS2编码序列,引物列于表S1。保守结构域和序列特征用SMART在线生物信息学工具预测。
【数据】数据库:JGI、NCBI、InterPro、CDD;软件:ClustalW、MEGA 11.0、SMART;模型:Poisson/JTT;bootstrap:1000次;模板:杏鲍菇cDNA;引物:见表S1
2.4 质粒构建与真菌转化
PeTPS2过表达载体基于改造的双元载体pBHg-BCA1构建,该载体含甘油醛-3-磷酸脱氢酶(gpd)启动子,是担子菌转化系统中广泛使用的强组成型驱动元件。将PeTPS2全长编码序列插入pBHg-BCA1载体,随后通过PEG介导转化导入杏鲍菇菌株GIM5.344。转化子在含30 mg L⁻¹和60 mg L⁻¹潮霉素B的再生培养基上经多轮筛选。通过PCR扩增含潮霉素抗性基因和PeTPS2编码序列的嵌合片段,确认构建体成功整合。质粒构建和转化子验证所用引物列于表S1。过表达效率依据转化子中PeTPS2基因的转录水平评估。
【数据】载体:pBHg-BCA1;启动子:gpd;转化方法:PEG介导;潮霉素B筛选浓度:30 mg L⁻¹和60 mg L⁻¹;验证方法:PCR;引物:见表S1
2.5 非生物胁迫处理
为评估细胞壁完整性,使用刚果红(CR,干扰β-1,3-葡聚糖组装)和卡尔科弗卢白(CFW,结合几丁质并破坏微纤丝),检验PeTPS2过表达是否赋予增强的细胞壁胁迫抗性。WT和PeTPS2过表达菌株培养于含1 mg/mL CR或300 μg/mL CFW的PDA培养基,25 °C培养7天,评估细胞壁胁迫下的生长表现。冷胁迫处理:菌株先在PDA培养基上25 °C培养3天,再转至4 °C培养5天。通过测量菌落直径监测菌丝生长。每个菌落用数显游标卡尺测量两条垂直直径,每次测量减去原始接种块直径,最终菌落直径取平均值。
【数据】CR浓度:1 mg/mL;CFW浓度:300 μg/mL;细胞壁胁迫培养温度:25 °C;时间:7天;冷胁迫:25 °C预培养3天→4 °C处理5天;测量工具:数显游标卡尺
2.6 蘑菇处理
成熟杏鲍菇子实体(70–80%成熟度)由韶关星威生物科技有限公司(广东,中国)提供,立即运至实验室。预实验确定最佳海藻糖处理浓度。选取大小外观均匀、无可见机械损伤的蘑菇,随机分组。样品分别浸入5、10、20、50、100和200 mM海藻糖溶液各5 min。处理后轻轻去除表面残留液。对照样品在相同条件下浸入无菌水5 min。处理后所有样品密封于聚乙烯袋,4 °C、相对湿度90–95%贮藏12天。贮藏0、3、6、9、12天随机采集6个生物学重复。采集后立即液氮速冻,−80 °C保存待分析。
【数据】成熟度:70–80%;海藻糖浓度梯度:5、10、20、50、100、200 mM;浸渍时间:5 min;贮藏温度:4 °C;相对湿度:90–95%;贮藏时间:12天;采样时间点:0、3、6、9、12天;生物学重复:6个;保存温度:−80 °C
2.7 色泽(L*、ΔE)、褐变指数和硬度测定
色泽参数(L、a、b)用色差计(CR-400,Konica Minolta Sensing Inc.,日本)测定。褐变指数(BI)和总色差(ΔE)按Oms-Oliu等(2008)方法计算。BI = 100 × (X−0.31/0.17),其中X = (a+1.75 L) / (5.645 L+ a−3.012 b)。ΔE = [ΔL² + Δa² + Δb²]^1/2,其中ΔL=L0−Lt,Δa=a0−at,Δb=b0−bt(t代表贮藏时间点:1、2、3、4、5,对应测量天数)。L值表示亮度,a表示红绿 chromaticity,b*表示黄蓝 chromaticity。蘑菇硬度用TA.XT Plus质构仪(Stable Micro Systems,Surrey,英国)按Wang等(2019)压缩法测定。硬度由力-时间曲线获得,以牛顿(N)表示。
【数据】仪器:CR-400色差计、TA.XT Plus质构仪;参数:L、a、b、BI、ΔE;硬度单位:N;计算式:BI = 100 × (X−0.31/0.17);ΔE = [ΔL² + Δa² + Δb²]^1/2
2.8 失重率、电解质泄漏率和丙二醛(MDA)含量测定
贮藏期间每3天测定失重,以相对于初始重量的减少百分比表示。电解质泄漏按Li等(2016)方法测定:取2 g切成均匀块的蘑菇组织,浸入25 mL无菌水,25 °C孵育30 min,记录初始电导率(P0)。随后水浴煮沸30 min释放总电解质,测定最终电导率(P1)。电解质泄漏率按公式(P0/P1) × 100%计算。MDA测定:样品(2.0 g)在5%(w/v)三氯乙酸(TCA)中匀浆,离心后上清与0.67%(w/v)TCA煮沸反应30 min。于450、532和600 nm测定吸光度,结果以mmol·kg⁻¹表示。
【数据】失重测定间隔:3天;组织量:2 g;浸泡体积:25 mL无菌水;孵育温度:25 °C;时间:30 min;煮沸时间:30 min;TCA浓度:5%(w/v)匀浆、0.67%(w/v)反应;检测波长:450、532、600 nm;MDA单位:mmol·kg⁻¹
2.9 还原糖、总糖和总可溶性多糖含量分析
还原糖和总糖含量采用3,5-二硝基水杨酸(DNS)法测定,以葡萄糖为标准品。
【数据】方法:DNS法;标准品:葡萄糖;原文节选至此截止,后续步骤原文未详述
研究结果
3.1 采后贮藏期间海藻糖及基因表达变化
海藻糖作为重要应激响应代谢物,在非生物胁迫下常被诱导积累。与此一致,本结果显示采后低温贮藏触发了杏鲍菇显著的海藻糖代谢响应。如图1A所示,子实体中海藻糖含量呈先积累后逐渐下降的特征趋势。贮藏早期(0–9天)海藻糖水平显著上升,第9天达最大值,较第0天高约70.46%。此后海藻糖含量逐渐下降,至第12天回落至接近初始水平。海藻糖积累的变化与海藻糖生物合成关键基因的转录调控密切相关。qRT-PCR分析显示,海藻糖-6-磷酸合成酶基因PeTPS1和PeTPS2在冷藏期间表达显著诱导(图1B)。其中PeTPS2在前6天内快速响应,第6天表达达峰,较初始水平增加约2.58倍。PeTPS1表达模式相似,但整个贮藏期转录丰度略低于PeTPS2。两基因表达谱与海藻糖积累阶段高度一致,提示低温胁迫激活了杏鲍菇内源海藻糖生物合成。相反,PeTPS3表达在冷暴露后立即被强烈抑制,整个贮藏期维持低水平。同时,海藻糖降解与代谢基因转录在冷藏期间显著下调。海藻糖磷酸化酶(PeTreP)表达在第3天大幅下降并持续受抑。PeNTH1和PeNTH2转录随时间逐步下降,第12天降至最低。综上,低温贮藏通过协同激活特定生物合成基因(尤其是PeTPS1和PeTPS2)并抑制海藻糖降解途径,触发内源海藻糖积累。
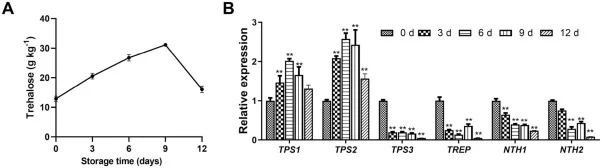
【数据】海藻糖峰值:第9天,较第0天高70.46%;PeTPS2表达峰值:第6天,较初始增加2.58倍;PeTPS1表达略低于PeTPS2;PeTPS3:冷暴露后立即抑制并维持低水平;PeTreP:第3天大幅下降;PeNTH1/PeNTH2:第12天降至最低;贮藏时间:0–12天
3.2 PeTPS蛋白的系统发育与保守结构域分析
为阐明PeTPS蛋白的进化关系与结构特征,构建了包含杏鲍菇、肺形侧耳、灰树花和酿酒酵母TPS序列的系统发育树,并通过InterPro进行结构域架构分析(图S1)。系统发育分类将TPS蛋白归为两大分支。Class I包括PeTPS1、PpTPS1、GfTPS1和典型酵母合成酶ScTPS1。与InterPro结构域注释一致,该分支所有成员均含单个TPS结构域(IPR001830或IPR012766)。Class II包括PeTPS2和PeTPS3。PeTPS2与GfTPS2和PpTPS2进化亲缘关系近,而PeTPS3与ScTPS2和GfTPS3形成亚分支。InterPro预测证实Class II成员含双分TPS-TPP结构域架构(IPR001830、IPR003337和IPR003332)。尽管杏鲍菇中鉴定到多个TPS基因,PeTPS2在低温胁迫下转录诱导最显著,暗示其在冷介导海藻糖积累中的关键作用。因此选取PeTPS2进行进一步功能表征。PeTPS2全长CDS为2886 bp,编码961个氨基酸蛋白(107.54 kDa)。结构分析证实PeTPS2含N端糖基转移酶家族20结构域(TPS)和C端海藻糖-磷酸酶结构域(TPP)(图S2A)。机制上,TPS结构域(α,α-海藻糖-磷酸合成酶,EC 2.4.1.15)催化UDP-葡萄糖和6-磷酸葡萄糖合成海藻糖-6-磷酸(T6P),而TPP结构域(海藻糖-6-磷酸酶,EC 3.1.3.12)介导T6P后续去磷酸化生成游离海藻糖。双功能结构域的存在提示PeTPS2是杏鲍菇胁迫诱导海藻糖生物合成所必需的。
【数据】PeTPS2 CDS长度:2886 bp;编码蛋白:961个氨基酸;分子量:107.54 kDa;结构域:N端TPS(IPR001830等)、C端TPP(IPR003337、IPR003332);酶EC号:TPS EC 2.4.1.15、TPP EC 3.1.3.12;系统发育bootstrap:1000次
3.3 PeTPS2过表达增强胁迫下菌丝生长与细胞壁完整性
为进一步验证PeTPS2生物学功能,构建了过表达菌株。选取PeTPS2表达分别增加4.04倍和3.96倍的两个转化子用于后续实验,命名为OEPeTPS2–15和OEPeTPS2–16(图S2B和C)。PeTPS2过表达导致海藻糖积累显著增加。与WT相比,OEPeTPS2–15和OEPeTPS2–16海藻糖含量分别增加92.59%和96.62%(图2A),表明PeTPS2过表达显著增强海藻糖生物合成。鉴于海藻糖是抵御环境胁迫的重要保护剂,进一步评估了OEPeTPS2菌株在非生物胁迫和细胞壁破坏胁迫下的生长表现。如图2B和C所示,PeTPS2过表达菌株基础菌丝生长速率显著高于WT。在刚果红(CR)和卡尔科弗卢白(CFW)诱导的细胞壁胁迫下,OEPeTPS2–15和OEPeTPS2–16生长速率仍显著高于WT,分别增加67.28%和30.51%。这些结果提示PeTPS2过表达部分缓解了细胞壁完整性受损引起的生长抑制。低温胁迫下,过表达菌株生长速率较WT高19.63%,表明PeTPS2也参与冷胁迫适应响应。基于对细胞壁靶向剂的耐受性,推测PeTPS2介导的海藻糖代谢激活直接改变细胞壁组成。为验证此假设,进一步分析细胞壁组成,确定海藻糖积累是否促进结构强化。与增强的抗逆性一致,过表达菌株几丁质和β-1,3-葡聚糖含量均显著高于WT(图2D和E)。OEPeTPS2–15和OEPeTPS2–16中几丁质含量分别增加92.14%和78.46%,β-1,3-葡聚糖含量分别增加104.07%和77.66%。由于几丁质和β-1,3-葡聚糖构成真菌细胞壁的基础骨架结构,其水平升高为更坚硬稳定的细胞壁基质提供了具体生化基础,支撑了观察到的CR、CFW和冷胁迫抗性。
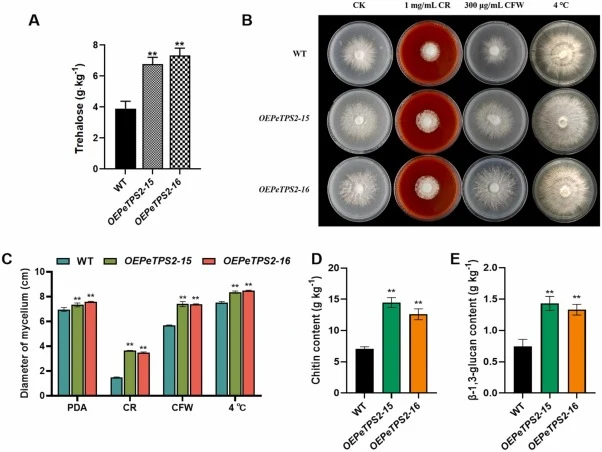
【数据】转化子表达倍数:OEPeTPS2–15为4.04倍、OEPeTPS2–16为3.96倍;海藻糖增幅:92.59%、96.62%;CR/CFW胁迫下生长速率增幅:67.28%、30.51%;低温生长速率增幅:19.63%;几丁质增幅:92.14%、78.46%;β-1,3-葡聚糖增幅:104.07%、77.66%;培养条件:PDA,25 °C,7天(细胞壁胁迫);4 °C 5天(冷胁迫)
3.4 海藻糖处理改善采后杏鲍菇品质
为评估海藻糖对采后杏鲍菇的保鲜效果,用不同浓度海藻糖溶液预处理后于4 °C贮藏。视觉评估显示,对照组在贮藏前6天维持可接受的外观品质(图3A)。至第9天,对照组蘑菇出现明显脱水、表面皱缩和局部褐变。第12天,子实体整体严重褐变,尤其切口基部区域出现明显萎缩。相比之下,海藻糖处理组整体品质显著改善,以10 mM和20 mM效果最佳。整个贮藏期,这些处理组蘑菇脱水皱缩轻微,褐变症状大幅减轻。其他处理组至第12天菌褶和切面出现局部褐变。褐变和硬度的定量分析进一步证实了……
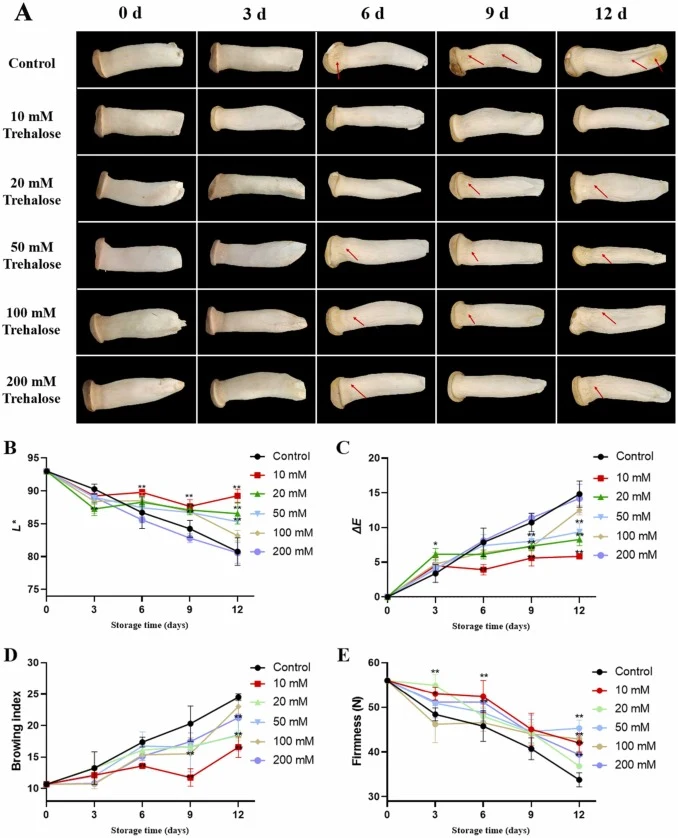
【数据】海藻糖处理浓度:5、10、20、50、100、200 mM;最佳浓度:10 mM和20 mM;贮藏温度:4 °C;贮藏时间:12天;对照劣变时间点:第9天脱水皱缩、第12天严重褐变;原文节选至此截止,定量数据原文未详述
3.5 海藻糖处理维持采后杏鲍菇营养品质
(原文节选未包含此节文字,图4对应内容原文未详述)
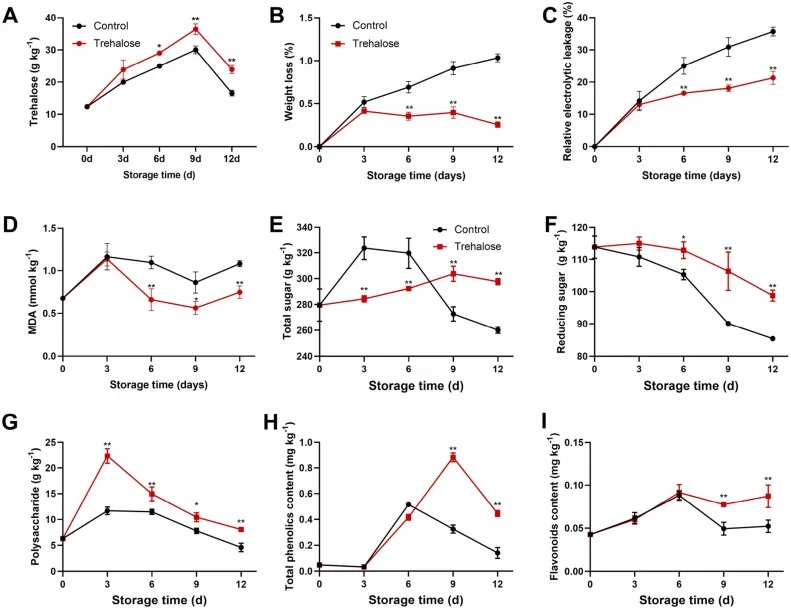
【数据】原文未详述
3.6 采后贮藏期间微观与超微结构变化
(原文节选未包含此节文字,图5对应内容原文未详述)
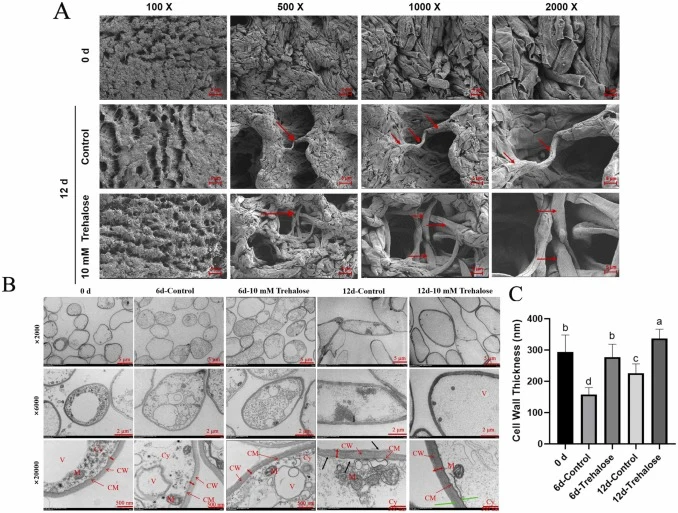
【数据】原文未详述
3.7 外源海藻糖对细胞壁组分及降解酶活性的影响
(原文节选未包含此节文字,图6对应内容原文未详述)
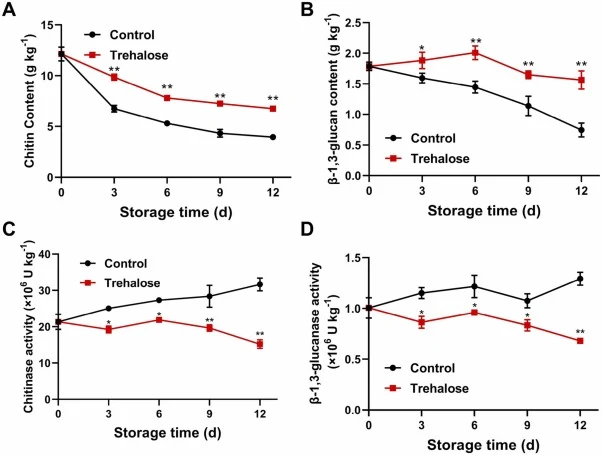
【数据】原文未详述
3.8 海藻糖合成与细胞壁相关基因转录谱
(原文节选未包含此节文字,图7对应内容原文未详述)
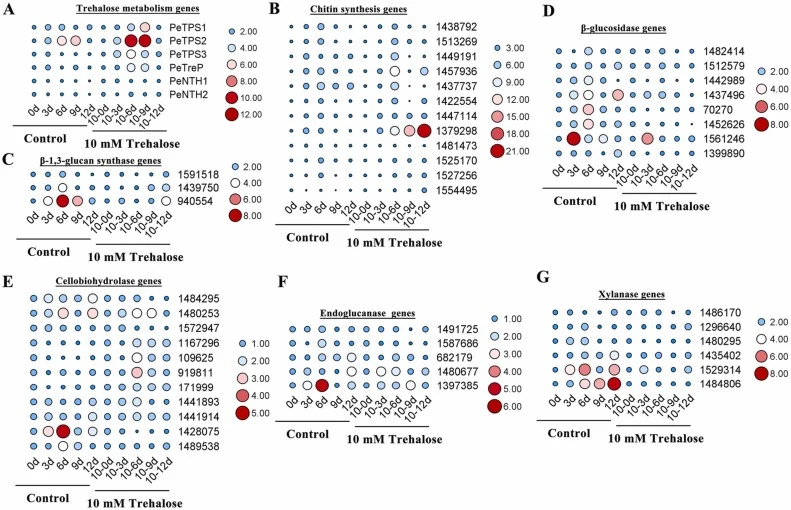
【数据】原文未详述
讨论与解读
低温贮藏广泛用于延长货架期,但同时也施加冷胁迫,诱发一系列生理代谢响应。本研究中,冷藏期间海藻糖含量显著升高、海藻糖合成基因显著诱导,这与海藻糖作为应激响应代谢物在广泛生物中的既定角色一致。在真菌、植物和昆虫中,海藻糖可稳定蛋白质和生物膜,防止脱水胁迫下的分子聚集。海藻糖是公认的胁迫保护性代谢物,在不利条件下稳定生物分子和细胞。本研究结果提示,内源海藻糖生物合成构成杏鲍菇对采后冷胁迫的重要适应响应。内源海藻糖积累可能作为多重保护策略:既作为结构稳定剂维持膜和细胞壁完整性,又作为潜在碳/能量缓冲,在不利冷藏条件下提供细胞保护。此外,Class I TPS被广泛认为是海藻糖代谢的限速酶,在……中起关键作用(原文节选至此截止)。
编译者解读:该研究以PeTPS2为枢纽,把海藻糖代谢与细胞壁结构稳态联系起来,思路清晰:先找冷响应基因,再做过表达功能验证,最后用外源处理落地保鲜。双功能TPS-TPP结构域的鉴定为后续酶工程改造提供了明确靶点。局限在于过表达株仅在菌丝水平验证,子实体阶段的遗传效应尚未呈现;外源处理浓度窗口较窄(10–20 mM),工业化浸泡的成本与残留问题也需评估。总体而言,代谢导向的保鲜策略在食用菌中值得推进。
参考来源
期刊:Postharvest Biology and Technology, 2027
DOI: 10.1016/j.postharvbio.2026.114775
DOI: 10.1016/j.postharvbio.2026.114775