来源:Root-secreted leucine is associated with the recruitment of Bacillus subtilis HJ1-29 and contributes to tobacco resistance against Fusarium root rot(Biological Control)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
烟草根腐病由镰刀菌等土传病原真菌引起,化学防治残留问题突出,而生防菌田间定殖不稳、防效波动大。本研究从烟草根际分离筛选到一株拮抗性枯草芽孢杆菌HJ1-29,通过分裂根水培体系收集接种与未接种植株根系分泌物,用非靶向代谢组学锁定接种后显著上调的亮氨酸,并验证其作为"益生元"促进菌株趋化、生物膜形成与根际定殖,最终在盆栽试验中获得97.8%的防效。研究为"功能合生元"调控植物—微生物互作提供了可操作的分子靶点。
研究背景
根腐病由镰刀菌(Fusarium sp.)引起,症状包括根系腐烂、叶片萎蔫与黄化,对全球农业生产构成威胁,造成产量与品质双重损失。烟草是茄科烟草属的重要经济作物,但河南漯河地区'中烟100'的种植受连作、化肥过量与种植面积扩张影响,根腐病日益加重,重病区发病率可达30%。当前土传病害防控主要依赖生物防治、轮作与抗病品种选育、化学防治等手段。化学农药效果确切但残留问题突出,微生物菌剂则常因定殖环境适应性差而防效不稳定。根系分泌物代谢物被认为是增强有益微生物定殖的关键媒介,但代谢组驱动的益生菌定殖如何具体决定植物抗土传病害能力,仍缺乏深入认识。本研究即围绕这一缺口,从菌株分离鉴定、根系分泌物益生元筛选、定殖机制解析到盆栽防效验证逐层展开。
研究方法
2.1 生防菌株、培养基与培养条件
本研究所用生防菌株为枯草芽孢杆菌(Bacillus subtilis)HJ1-29。HJ1-29分离自烟草根际土壤。该菌株在37 °C下于Luria-Bertani培养基(1%胰蛋白胨、0.5% NaCl、0.3%酵母提取物)中培养,常规生长时以2%琼脂固化。
【数据】菌株:B. subtilis HJ1-29;培养基:LB(1%胰蛋白胨、0.5% NaCl、0.3%酵母提取物);琼脂:2%;温度:37°C;来源:烟草根际土壤
2.2 病原真菌(镰刀菌)、培养基与培养条件
病原真菌分离自烟草植株根际土壤,于28 °C下在马铃薯葡萄糖肉汤(PDB)中培养。依据PDA上的菌落与分生孢子形态,结合内转录间隔区(ITS)序列分析,该分离物被鉴定为尖孢镰刀菌(Fusarium oxysporum)。F. oxysporum是河南省主要烟区烟草镰刀菌根腐病已充分记载的病原菌。
【数据】菌株:F. oxysporum;培养基:PDB/PDA;温度:28°C;鉴定方法:菌落与分生孢子形态+ITS序列分析;病原性依据:河南省主要烟区已记载
2.3 植物材料与无菌植株培养条件
烟草品种'中烟100'种子以3%(w/v)NaClO表面消毒15 min,随后用无菌蒸馏水冲洗三次,然后置于装有蛭石的无菌组织培养瓶中进行萌发。在28 °C、光周期16 h光照/8 h黑暗的生长箱中培养四天后,将萌发幼苗移栽至含40 mL经2%琼脂固化的无蔗糖Murashige Skoog(MS)培养基的50 mL培养瓶中。含烟草幼苗的培养瓶置于28 °C、光周期16 h光照/8 h黑暗的光照生长箱中继续培养以供后续研究。
【数据】品种:'中烟100';表面消毒:3%(w/v)NaClO、15 min、无菌水冲洗3次;萌发基质:蛭石;萌发条件:28°C、16 h光/8 h暗、4天;移栽培养基:40 mL无蔗糖MS+2%琼脂;培养瓶:50 mL;培养条件:28°C、16 h光/8 h暗
2.4 烟草根系分泌物收集
在烟草幼苗2个月龄时收集烟草植株根系分泌物。将HJ1-29菌悬液接种至分裂根系统的左侧并与培养基混合。分裂根系统继续培养两天,以使植株预先接触接种物,并检查右侧是否污染。随后弃去腔室右侧(未接种侧)的培养基,替换为无菌双蒸水。在接下来的四天中,系统于28 °C、16 h光照/8 h黑暗光周期下培养,每天收集并更换水以收集根系分泌物。处理重复四次,每个重复包括十二株植物。根系分泌物丰度以标准化植株数(每重复十二株)和固定收集时长(连续四天)为基础表示;未以根系生物量作为归一化基础。未接种烟草的常规根系分泌物作为CK收集。根系分泌物溶液用0.45 μm截留膜(Millipore)过滤,冻干并以粉末形式于−80 °C保存供后续研究。
【数据】收集时期:幼苗2月龄;接种侧:分裂根系统左侧;预接触:2天;收集期:4天;温度:28°C;光周期:16 h光/8 h暗;重复:4次;每重复植株数:12株;过滤膜:0.45 μm;保存:冻干、−80°C;对照:未接种根系分泌物(CK)
2.5 根系分泌物分析
收集的根系分泌物在中国上海百趣生物科技有限公司使用UHPLC–QTOF–MS进行分析。质谱原始数据(.wiff)文件使用ProteoWizard转换为mzXML格式,并由Co-authored R包处理。预处理结果生成包含保留时间(RT)、质荷比(m/z)值和峰强度的数据矩阵。XCMS数据处理后使用R包CAMERA进行峰注释。代谢物鉴定使用BiotreeDB(V3.0)完成。色谱分离在C18柱(2.1 mm × 100 mm,1.7 μm)上进行,柱温维持40 °C,以含0.1%甲酸的水(溶剂A)和含0.1%甲酸的乙腈(溶剂B)为流动相。电喷雾电离在正、负两种模式下运行,质量范围50–1,000 m/z。混合质量控制(QC)样品通过混合所有样品的等量 aliquot 制备,每十个样品进样一次以监测分析重现性,并纳入空白样品以识别和去除背景特征。峰强度归一化至总离子流,QC样品中相对标准偏差(RSD)> 30%的特征在统计分析前被剔除。代谢物依据精确质量、保留时间和与BiotreeDB(V3.0)匹配的MS/MS谱,按代谢组学标准倡议(MSI)Level 2置信度注释。
【数据】平台:UHPLC–QTOF–MS;色谱柱:C18(2.1 mm × 100 mm,1.7 μm);柱温:40°C;流动相A:0.1%甲酸水;流动相B:0.1%甲酸乙腈;质量范围:50–1,000 m/z;电离模式:正负双模式;QC:每10个样品进样1次;剔除标准:QC样品RSD>30%;数据库:BiotreeDB V3.0;置信度:MSI Level 2
2.6 根系定殖定量
将B. subtilis HJ1-29菌悬液制备于LB培养基中,于37 °C、200 rpm振荡培养12 h。细胞经10,000 g离心10 min沉淀,重悬于1/4浓度无蔗糖液体Murashige Skoog培养基中,OD600约为1.0。取5 mL所得细胞悬液接种至含50 mL MS培养基的无菌锥形瓶中,最终细胞浓度约为1 × 10⁷ CFUs/mL。随后向瓶中加入5 mL无菌水(对照)或5 mL含下列化合物之一的无菌水:亮氨酸、黄嘌呤、十八烷二酸、甘草酸二铵、苯丙氨酸、亚油酸或异亮氨酸(终浓度均为1 mM)、根系分泌物混合物,或cyclo(L-Phe-L-Pro)或brevianamide F(终浓度均为0.1 mM)。在上述条件下培养三天后,剪取烟草根系并用无菌蒸馏水短暂冲洗。随后,收集的根样称重并在无菌蒸馏水中用研钵研磨。所得悬液稀释后涂布于LB琼脂培养基。于37 °C培养24 h后通过计数细菌菌落实现细胞定量。数据以根鲜重归一化。
【数据】菌株培养:LB、37°C、200 rpm、12 h;离心:10,000 g、10 min;重悬液:1/4无蔗糖MS、OD600≈1.0;接种量:5 mL至50 mL MS;终浓度:约1×10⁷ CFUs/mL;添加物终浓度:亮氨酸/黄嘌呤/十八烷二酸/甘草酸二铵/苯丙氨酸/亚油酸/异亮氨酸各1 mM,cyclo(L-Phe-L-Pro)/brevianamide F各0.1 mM;共培养:3天;涂布培养:37°C、24 h;归一化:根鲜重
2.7 菌株HJ1-29单用及与亮氨酸联用对尖孢镰刀菌的拮抗效果
采用三点法,将3 μL HJ1-29细胞悬液(1.0 × 10⁸ CFUs/mL)及HJ1-29与亮氨酸混合培养的细胞悬液(1.0 × 10⁸ CFUs/mL与1 mM亮氨酸)接种于距平板中心等距2 cm处。平板倒置,于28 °C培养约5天,拍照并记录抑制效果。每个处理设三个生物学重复。
【数据】方法:三点法;接种量:3 μL;菌浓度:1.0×10⁸ CFUs/mL;亮氨酸:1 mM;接种距离:距中心2 cm;温度:28°C;时间:约5天;重复:3个生物学重复
2.8 趋化性测定
收集50 mL对数生长期细菌培养物,于4 °C、5000 rpm离心收获细菌细胞。细胞沉淀重悬于12 mL趋化缓冲液(8.83 g/L K₂HPO₄·3H₂O、8.34 g/L KH₂PO₄、20 μM EDTA,pH 7.0)。向细菌悬液中加入4 mL 1%羟丙基甲基纤维素钠以限制趋化效应物的扩散。取4 mL上述细菌悬液转移至直径60 mm培养皿中。待细菌悬液均匀铺展后,向培养皿中心滴加10 μL 1 mM亮氨酸溶液。室温静置孵育30 min后,观察培养皿中心形成的趋化环的形态与大小变化。每个处理设三个生物学重复,以等体积趋化缓冲液代替亮氨酸溶液作为空白对照。采用改良毛细管法对HJ1-29对亮氨酸的趋化响应进行定量测定。菌株在LB培养基中培养至对数期(OD600 = 1.0)。离心收集的细胞用趋化缓冲液洗涤两次并重悬于同一缓冲液。以1 mL注射器作为趋化测定毛细管,分别吸取100 μL系列浓度梯度(1000 μM、100 μM、10 μM、1 μM、0.1 μM)的亮氨酸溶液注入注射器。将注射器针头插入含细菌悬液的移液器吸头窄端,使亮氨酸溶液与细菌悬液充分接触。
【数据】培养物体积:50 mL;离心:5000 rpm、4°C;重悬缓冲液:12 mL(8.83 g/L K₂HPO₄·3H₂O、8.34 g/L KH₂PO₄、20 μM EDTA,pH 7.0);扩散限制剂:4 mL 1%羟丙基甲基纤维素钠;培养皿:60 mm;滴加量:10 μL 1 mM亮氨酸;静置:室温、30 min;重复:3个生物学重复;毛细管法:1 mL注射器、100 μL、浓度梯度1000/100/10/1/0.1 μM;菌液OD600=1.0
2.9 生物膜形成测定
(原文节选至此,后续步骤原文未详述。)
【数据】原文未详述
研究结果
3.1 枯草芽孢杆菌HJ1-29全基因组测序与功能特征分析
为阐明菌株HJ1-29的分类地位与潜在功能特征,我们利用PacBio单分子实时(SMRT)测序构建了完整基因组图谱,并进行了系统的生物信息学分析。分类鉴定采用多证据策略:首先基于16S rRNA基因序列同源性(>98.7%)、持家基因序列相似性(>98.7%)和全基因组Mash距离(<0.05)筛选近缘种。进一步的ANI分析显示,菌株HJ1-29与Bacillus subtilis 168共享最高的ANI值(>95%),确认二者属于同一物种(图S1、表S1)。菌株HJ1-29的完整基因组由一条单一环状染色体组成,无质粒序列。基因组总大小为4 215 635 bp(约4.22 Mb),GC含量43.51%,平均测序深度达269 ×。共预测到4 215个蛋白编码基因,以及30个rRNA操纵子、85个tRNA基因和全基因组甲基化修饰特征(图1)。
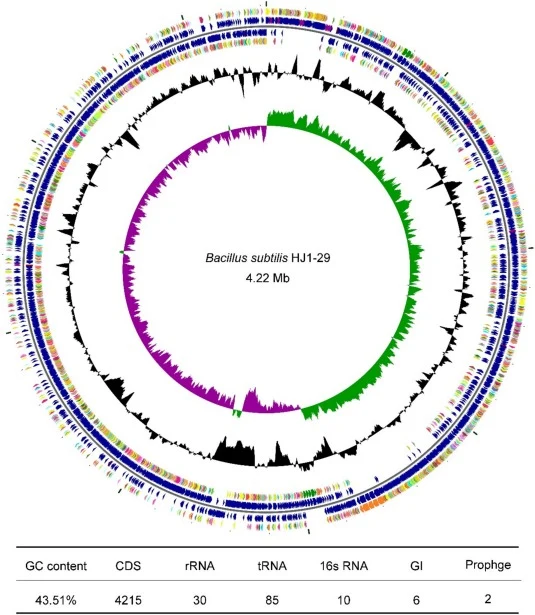
我们从多个维度系统表征了菌株HJ1-29的遗传背景,包括基本基因组特征、可移动元件、功能注释、抗菌素耐药与毒力潜力以及次级代谢产物生物合成能力,为后续功能开发和机制解析提供了完整的分子基础。编码基因的功能注释针对多个数据库进行,以实现多维功能挖掘:分别有4 209、3 671、3 312和3 043个基因在NR、Pfam、COG和KEGG数据库中得到注释(表S2、表S3)。功能富集分析显示,菌株HJ1-29拥有完整的脂肽类抗生素生物合成途径、完整的双组分信号转导系统以及多条完整的碳水化合物降解途径(图S2、图S3),为其生防功能和益生元利用潜力提供了遗传学证据。
【数据】测序平台:PacBio SMRT;基因组大小:4 215 635 bp(约4.22 Mb);GC含量:43.51%;测序深度:269×;染色体:单一环状、无质粒;蛋白编码基因:4 215个;rRNA操纵子:30个;tRNA基因:85个;16S rRNA同源性:>98.7%;持家基因相似性:>98.7%;Mash距离:<0.05;与B. subtilis 168的ANI:>95%;NR注释:4 209个;Pfam注释:3 671个;COG注释:3 312个;KEGG注释:3 043个
3.2 枯草芽孢杆菌HJ1-29诱导的烟草根系分泌物代谢谱改变及候选益生元筛选
为探究接种B. subtilis HJ1-29对烟草根系分泌物代谢谱的调控作用,我们采用分裂根水培系统收集接种与未接种烟草植株的根系分泌物。利用液相色谱-串联质谱(LC-MS)进行非靶向代谢组学分析,共检测到10 223个代谢特征。PCA显示前两个主成分(PC1和PC2)分别解释总方差的19.72%和12.68%,累积解释方差为32.40%。同一处理组样品紧密聚类,表明代谢组学数据具有较高的生物学重现性。接种组形成与对照组明显分离的独立聚类,表明B. subtilis HJ1-29接种显著改变了烟草根系分泌物的整体代谢组成(图2A)。
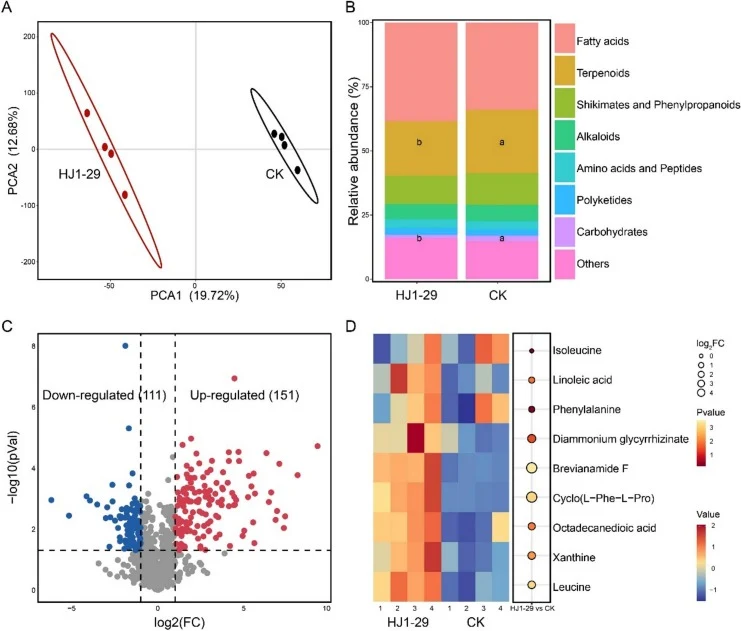
共鉴定出1 508种代谢物,分为8个主要化学类别:氨基酸与肽类、聚酮类、莽草酸与苯丙烷类、生物碱类、碳水化合物、萜类、脂肪酸类及其他。萜类(347种)、莽草酸与苯丙烷类(284种)、脂肪酸类(236种)和生物碱类(173种)为优势类别,其次为氨基酸与肽类(69种)、聚酮类(67种)和碳水化合物(37种),另有295种代谢物归为其他类(图2B、表S4)。对不同代谢物类别相对丰度的分析显示,脂肪酸类是根系分泌物中丰度最高的类别,接种组与对照组间无显著差异。相比之下,萜类和碳水化合物的相对丰度在两组间差异显著(P < 0.05),其他代谢物类别未观察到显著变化(图2B)。差异代谢物以|log2(倍数变化,FC)| ≥ 1且P < 0.05为阈值筛选。共鉴定出262种差异代谢物:与对照组相比,151种代谢物(10.29%,151/1467)显著上调,111种代谢物(7.57%,111/1467)显著下调,其余1 205种代谢物(82.14%)在接种B. subtilis HJ1-29后丰度无显著变化(图2C)。选取高丰度且具潜在益生元活性的候选代谢物进行热图可视化。结果显示,亮氨酸、黄嘌呤、十八烷二酸、cyclo(L-Phe-L-Pro)、brevianamide F、甘草酸二铵、苯丙氨酸和亚油酸在接种后显著上调,而异亮氨酸丰度无显著变化(图2D)。这九种代谢物被选为候选益生元用于后续功能验证。九种代谢物的筛选标准如下:(i)接种HJ1-29后显著上调(|log2FC| ≥ 1且P < 0.05);(ii)在已鉴定代谢物中丰度相对较高;(iii)归属于已报道具有益生元或信号功能的化学类别(氨基酸、脂肪酸和含氮化合物)。异亮氨酸作为亮氨酸的结构类似物被保留,以检验定殖响应的特异性,尽管其丰度变化不显著。
【数据】检测代谢特征:10 223个;PC1解释方差:19.72%;PC2解释方差:12.68%;累积解释方差:32.40%;鉴定代谢物:1 508种;化学类别:8类;萜类:347种;莽草酸与苯丙烷类:284种;脂肪酸类:236种;生物碱类:173种;氨基酸与肽类:69种;聚酮类:67种;碳水化合物:37种;其他:295种;差异代谢物阈值:|log2FC|≥1且P<0.05;差异代谢物总数:262种;上调:151种(10.29%,151/1467);下调:111种(7.57%,111/1467);无显著变化:1 205种(82.14%);萜类与碳水化合物组间差异:P<0.05
3.3 亮氨酸增强B. subtilis HJ1-29根际定殖及其对尖孢镰刀菌的拮抗活性
采用无菌水培系统评价从根系分泌物中筛选的九种差异代谢物对菌株HJ1-29根际定殖能力的影响。与未添加外源代谢物的空白对照相比,仅亮氨酸和cyclo(L-Phe-L-Pro)显著增强了菌株HJ1-29在烟草根部的根际定殖:亮氨酸处理下定殖丰度增加8.15倍,环二肽处理下增加3.8倍,亮氨酸的促进效果更为明显(图3A)。因此选择亮氨酸作为目标益生元进行后续机制研究。
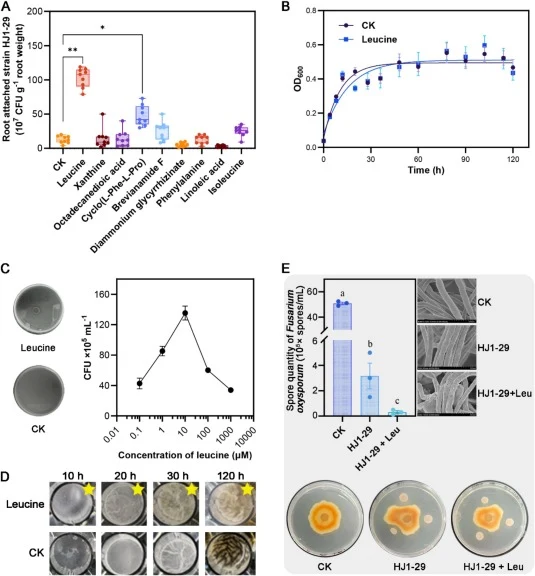
为阐明亮氨酸介导高效定殖的机制,我们研究了亮氨酸对菌株HJ1-29生长能力、趋化响应和生物膜形成能力的调控作用。生长曲线监测显示,外源添加1 mM亮氨酸对菌株HJ1-29的生长速率无显著影响(图3B),表明亮氨酸对定殖的促进作用并非通过增强细菌生长实现。定性与定量结合的滴加法和毛细管法证明,菌株HJ1-29对亮氨酸表现出显著的正趋化响应(图3C),提示趋化是介导亮氨酸诱导细菌定殖的关键机制之一。静态生物膜培养实验显示,添加终浓度100 μM的亮氨酸可明显加速菌株HJ1-29的生物膜形成过程。孵育120 h后,对照组生物膜出现明显解体,而亮氨酸处理组生物膜结构保持致密稳定(图3D),表明亮氨酸可通过提高生物膜稳定性增强菌株HJ1-29的根际定殖能力。平板对峙实验显示,菌株HJ1-29对F. oxysporum表现出显著拮抗活性。在无细胞上清液实验中,F. oxysporum的孢子数量被HJ1-29上清液显著降低,并进一步降低(原文节选至此,后续数据未详述)。
【数据】定殖提升:亮氨酸8.15倍、cyclo(L-Phe-L-Pro) 3.8倍;亮氨酸浓度:1 mM(定殖/生长)、100 μM(生物膜);生长曲线:无显著影响;趋化:显著正响应;生物膜孵育:120 h;对照组生物膜:明显解体;亮氨酸组:致密稳定;对峙实验:显著拮抗F. oxysporum;上清液:孢子数量显著降低
3.4 菌株HJ1-29与亮氨酸联用对尖孢镰刀菌的生防效果验证
(原文节选至此,后续结果原文未详述。)
【数据】原文未详述
讨论与解读
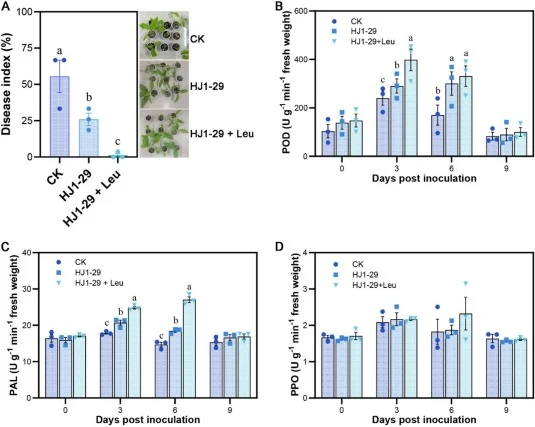
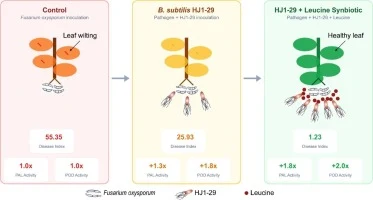
本研究以烟草—镰刀菌根腐病为模式体系,考察益生元在植物—生防菌—病原菌互作中的作用,鉴定出亮氨酸作为候选的多功能天然益生元。全基因组测序在HJ1-29中鉴定出完整的脂肽类抗生素生物合成基因簇与双组分信号转导系统,提示其生防能力的潜在遗传基础。非靶向代谢组学显示接种HJ1-29显著改变烟草根系分泌物谱,其中亮氨酸上调最为明显。功能验证表明,1 mM外源亮氨酸通过增强趋化和生物膜稳定性而非促进生长,使HJ1-29根际定殖提高8.15倍;亮氨酸-HJ1-29联合处理对烟草镰刀菌根腐病防效达97.8%,大幅优于单菌施用。根系分泌物是调控植物—微生物互作的关键信号分子,其介导的有益微生物招募长期是根际微生态研究的核心。已有研究证实植物通过分泌特定代谢物选择性富集有益根际微生物群,苹果酸等物质即参与该过程。本研究将代谢组筛选、定殖机制与田间相关防效串联,为土传病害防控提供了"功能合生元"思路。
编译者解读:该研究的亮点在于用分裂根水培体系把"接种菌—根系分泌物—代谢物"三者的因果关系拆开,再以趋化、生物膜、定殖三级实验锁定亮氨酸的作用环节,逻辑链完整。局限也明显:防效数据来自盆栽,田间根际微生物竞争与土壤吸附会削弱外源亮氨酸的有效浓度;97.8%的防效依赖多次补加,成本与持久性未评估。合成生物学视角下,更可行的方向是把亮氨酸合成或分泌通路导入植物或菌株自身,实现原位持续供给,而非外源添加。
参考来源
期刊:Biological Control, 2026
DOI: 10.1016/j.biocontrol.2026.106166
DOI: 10.1016/j.biocontrol.2026.106166