来源:Genome-wide transcriptomic insights into temperature-driven suppression of violacein biosynthesis in Massilia atriviolacea SODT(Industrial Crops and Products)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
从合肥土壤中分离的新种细菌Massilia atriviolacea SODT能产出深紫色素。经HPLC、NMR与MS鉴定,主产物为紫色杆菌素(violacein),另有少量脱氧紫色杆菌素。该菌株表现出独特的温度调控模式:33 °C下完全不产色素,转回28 °C后色素合成可完全恢复。转录组与qRT-PCR证实,高温并非切断色氨酸供给,而是直接压低vioABCDE操纵子的转录水平。纯化色素对HeLa细胞IC₅₀为1.92 µg/mL。
研究背景
微生物色素具备多样的生理活性。紫色杆菌素是一种深紫色素,已知可由Chromobacterium violaceum、Alteromonas luteoviolacea等多种细菌产生。它对多种菌株显示抗菌活性——包括枯草芽孢杆菌这类常见环境菌,以及结核分枝杆菌、金黄色葡萄球菌、铜绿假单胞菌等致病菌;此外还有抗真菌、抗病毒、抗利什曼原虫、抗纳米鞭毛虫及抗氧化活性。在细胞毒性方面,紫色杆菌素对HL60细胞、人结肠癌细胞、人乳腺癌细胞、Ehrlich腹水肿瘤细胞等肿瘤细胞系均有作用。它还可用于棉纤维染色。这些性质使紫色杆菌素在生物技术与纺织染色领域颇受关注。除已被充分记录的生物活性外,紫色杆菌素还可作为色素型报告分子用于环境毒素检测。本研究以新种M. atriviolacea SODT为对象,从其色素鉴定入手,结合基因组与转录组,解析温度抑制紫色杆菌素合成的分子机制。
研究方法
2.1 菌株、细胞系与培养基
Massilia atriviolacea SODT菌落呈紫黑色,为本课题组前期研究鉴定的新种。所有实验的培养物均通过接种TB培养基(含1%胰蛋白胨,pH 7.2–7.4)制备。人宫颈癌HeLa细胞由安徽农业大学细胞库提供。细胞在含10%胎牛血清的RPMI 1640培养基中、5% CO₂加湿气氛、37 ℃条件下培养。
【数据】培养基:TB(1%胰蛋白胨,pH 7.2–7.4);细胞培养基:RPMI 1640 + 10% FBS;CO₂浓度:5%;温度:37 ℃
2.2 紫色素的提取与分析
紫色素采用超声法以乙醇提取。紫色素提取物经TLC纯化。最终,色素提取物通过薄层色谱(TLC)与高效液相色谱(HPLC)联合分析。紫色素的定量按此前报道的方法进行。
【数据】提取溶剂:乙醇;提取方式:超声;纯化方法:TLC;定量方法:原文未详述具体参数
2.3 紫色素化学结构鉴定
纯化的蓝色组分I用分光光度计(DU-640,Beckman)、1H NMR(二甲基亚砜DMSO,600 MHz,Agilent)、13C NMR(DMSO,600 MHz,Agilent)、MS(QE FOCUS,Thermo Fisher)及HPLC(Waters-600E,Waters,美国)分析。HPLC分析采用C18柱(250 mm × 4.6 mm,5 μm,Kromat-bond Universil),25 ℃,70%甲醇以1 mL/min流速洗脱。柱流出液在576 nm检测。
【数据】色谱柱:C18(250 mm × 4.6 mm,5 μm);柱温:25 ℃;流动相:70%甲醇;流速:1 mL/min;检测波长:576 nm;NMR场强:600 MHz
2.4 培养温度对紫色素产量的影响
培养温度对紫色素产量的影响通过两组实验考察。第一组实验在培养期间维持恒定温度(10、20、28、33、35、37 ℃)。第二组实验为温度切换:细菌先在33 ℃培养3–5天,随后转至28 ℃再培养3–5天。
【数据】恒温组温度:10、20、28、33、35、37 ℃;切换组:33 ℃培养3–5天→28 ℃培养3–5天
2.5 基因组测序、组装与注释
PacBio RSII平台的文库制备按此前描述的方法进行。在166倍基因组覆盖度下,过滤后的subreads(3567,261,541 bp)经分层基因组组装流程(HGAP 3.0)从头组装。编码DNA序列(CDS)预测使用Glimmer 3.02,rRNA与tRNA基因分别通过Barrnap 0.4.2与tRNA scan-SE v1.3.1鉴定。功能基因注释按Aziz的方法通过BLASTP进行,目标数据库包括非冗余GenBank蛋白库、SwissProt、COG与KEGG;另用在线RAST服务器补充注释。基因组环形图用Circos 0.64生成。M. atriviolacea SODT全基因组序列已存入GenBank,登录号CP051166。
【数据】测序平台:PacBio RSII;覆盖度:166×;subreads总量:3567,261,541 bp;组装软件:HGAP 3.0;CDS预测:Glimmer 3.02;登录号:CP051166
2.6 转录组测序与生物信息学分析
培养SODT菌株,收集6个样品用于RNA提取,包括3个L组样品(28 ℃培养12 h)与3个H组样品(33 ℃培养12 h)。细胞于4 ℃、8000 rpm离心10 min收集。RNA用TRIzol试剂(Invitrogen,美国)提取,残留基因组DNA用DNase I(Takara)去除。cDNA文库构建后使用Illumina HiSeq 2000平台测序(上海美吉生物医药科技有限公司)。原始reads用SeqPrep与Sickle修剪,去除接头、模糊碱基(>10% N)及低质量碱基(Q < 20)。干净reads用Bowtie 2比对到参考基因组。基因功能用BLAST(blastx/blastp 2.2.24 +)比对KEGG数据库注释。差异表达基因(DEGs)采用RPKM法鉴定,随后进行多重假设检验与错误发现率(FDR)控制以校正p值。DEG判定标准为两条:FDR值 ≤ 0.05,且log₂倍数变化绝对值(|log₂FC|)≥ 1。基因表达谱的差异分析用R包EdgeR完成。本研究的原始RNA测序数据已存入GenBank数据库,登录号PRJNA768387。
【数据】分组:L组28 ℃/12 h,H组33 ℃/12 h,各3个重复;离心:8000 rpm、10 min、4 ℃;质控:Q < 20剔除、N > 10%剔除;DEG标准:FDR ≤ 0.05且|log₂FC| ≥ 1;登录号:PRJNA768387
2.7 qRT-PCR分析
对M. atriviolacea SODT中高温下表达存在差异的vioABCDE操纵子及MA_4174进行实时定量PCR(qRT-PCR)分析,以验证转录组数据的准确性。细菌分别在28 ℃与33 ℃的TB中培养12、18、24 h后收获。RNA提取与基因组DNA去除按2.6节所述进行。第一链cDNA用PrimeScript RT Reagent Kit(Takara,日本)合成。实时定量PCR在ABI 7500系统(Applied Biosystems)上按厂家说明用SYBR Green进行。相对基因表达用2–ΔΔCt法计算,以16S rRNA基因为内参。每个基因的检测至少重复三次,每次重复设三个技术重复。引物序列见补充表S1。
【数据】取样时间点:12、18、24 h;温度:28 ℃与33 ℃;内参基因:16S rRNA;定量方法:2–ΔΔCt;生物学重复:≥3次;技术重复:3次
2.8 胞内游离氨基酸含量测定
胞内游离氨基酸含量测定按已有方法稍作修改进行:首先,SODT菌株分别在28 ℃与33 ℃培养,于发酵12 h与36 h收获。各时间点细菌细胞经10,000 ×g离心10 min收集,随后用5 mL去离子水快速洗涤三次以去除胞外杂质。洗涤后细胞冻干;准确称取10 mg冻干样品,与1 mL 4%磺基水杨酸溶液混合。用小美一体式超声破碎仪在4 ℃超声提取(参数:25 KHZ频率,60%功率,开3 s/关2.6 s循环)。提取后加入500 mmol/L NaOH调pH至7.0,12,000 ×g离心20 min收集上清。上清中氨基酸含量用HITACHI I-8900全自动氨基酸分析仪分析(检测条件:离子交换色谱,茚三酮柱后衍生,检测波长570 nm/440 nm)。所有测定均设三个重复。
【数据】取样时间:12 h与36 h;离心:10,000 ×g、10 min;冻干样品量:10 mg;提取液:1 mL 4%磺基水杨酸;超声:25 KHZ、60%功率、3 s开/2.6 s关、4 ℃;pH:7.0;二次离心:12,000 ×g、20 min;检测波长:570 nm/440 nm
2.9 色氨酸补加对紫色杆菌素产量的影响
向高氏I号培养基中加入梯度浓度的L-色氨酸(0、0.2、0.4、0.8、1.2、1.6、2.0、4.0、6.0 mM)。种子液(1% v/v接种量)接入补加培养基,在28 ℃与33 ℃、200 rpm培养3–4天。色素提取与定量按2.2节所述进行。
【数据】色氨酸浓度梯度:0、0.2、0.4、0.8、1.2、1.6、2.0、4.0、6.0 mM;接种量:1% v/v;转速:200 rpm;温度:28 ℃与33 ℃;时间:3–4天
2.10 MTT法评估细胞毒性
纯化紫色素(蓝色组分I)对HeLa细胞的细胞毒性用MTT法评估,按此前描述稍作修改。简言之,HeLa细胞以2.0 × 10³个/孔接种于96孔板,在37 ℃、5% CO₂下用系列色素浓度(0、0.5、1.0、2.0、4.0、8.0 μg/mL)处理24 h。孵育后测定细胞活力,在490 nm测吸光度。IC₅₀值由剂量-反应曲线导出。所有实验设三个重复。
【数据】接种密度:2.0 × 10³个/孔;色素浓度:0、0.5、1.0、2.0、4.0、8.0 μg/mL;处理时间:24 h;温度:37 ℃;CO₂:5%;检测波长:490 nm
2.11 凋亡性细胞死亡分析
为探究蓝色组分I的抗癌机制,对HeLa细胞进行凋亡与线粒体膜电位(MMP,ΔΨₘ)检测。HeLa细胞接种于6孔板。
【数据】培养板:6孔板;其余参数原文未详述
研究结果
3.1 M. atriviolacea SODT所产紫色素的化学结构鉴定
SODT菌株是从土壤中分离筛选的Massilia新种。SODT菌落呈现罕见的紫黑色特征。这一独特的表型差异为研究其代谢产物提供了重要切入点。从M. atriviolacea SODT提取的蓝紫色素经TLC与HPLC分析。结果显示,该菌株的色素提取物在氯仿:甲醇(5:1)溶剂系统的SiO₂ TLC上产生两个斑点。两个斑点的Rf值分别为0.28与0.56(图1A-B)。后一组分蓝色更深,浓度显著高于前者(紫色)。色素提取物经HPLC分离为两个明显组分。第一峰鉴定为蓝色组分I,保留时间约7.13 min;第二峰鉴定为紫红色组分II,保留时间约11.61 min。两个色素组分的最大吸收波长分别测定为576.3与562.9 nm(图S1)。蓝色组分I的分子量经质谱(MS)测定为344.35(正离子模式)。蓝色组分I的1H NMR与13C NMR谱与紫色杆菌素比较(表1)。蓝色组分I的主要1H NMR与13C NMR信号归属与紫色杆菌素高度吻合(图S2-3)。组分II因浓度过低无法进行NMR分析。基于上述分析结果并参照此前发表的研究,M. atriviolacea SODT中的色素被鉴定为紫色杆菌素与脱氧紫色杆菌素。紫色杆菌素的化学结构见图1D。
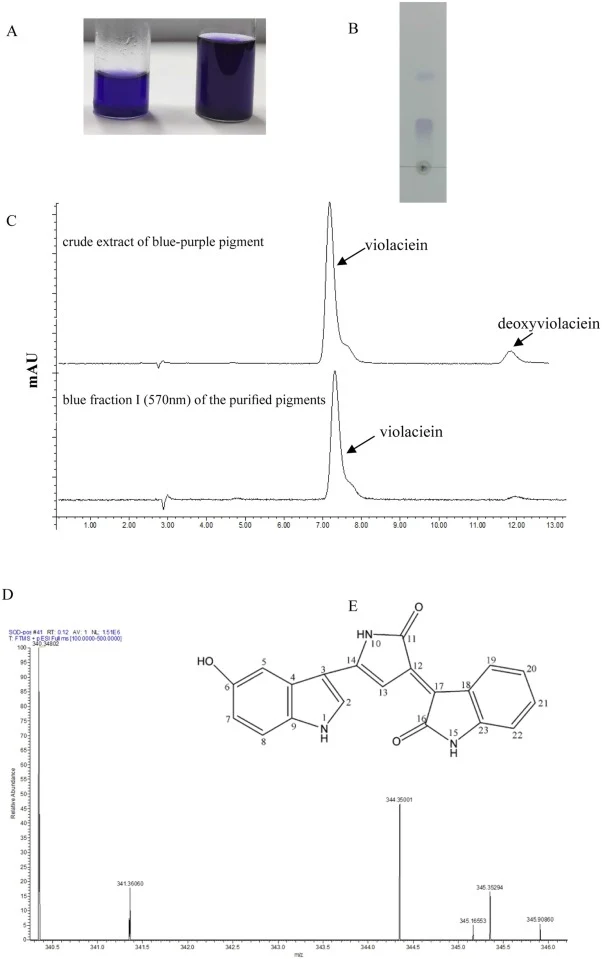
【数据】TLC展开剂:氯仿:甲醇 = 5:1;Rf值:0.28与0.56;HPLC保留时间:7.13 min(组分I)与11.61 min(组分II);最大吸收波长:576.3 nm与562.9 nm;分子量:344.35(正离子)
3.2 培养温度对紫色素产量的影响
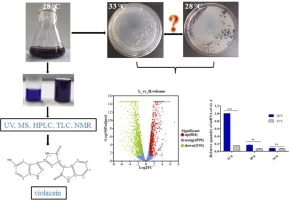
细菌细胞在35 ℃以上无法生长。与28 ℃以下相比,SODT菌株在33 ℃培养时不产生任何色素(图2)。我们观察到,同一平板上的菌落转至28 ℃再培养3–5天后,重新变为紫黑色并恢复产色素。这表明温度可抑制SODT菌株紫色素的形成。然而,温度对M. atriviolacea SODT紫色素产量的影响此前知之甚少。
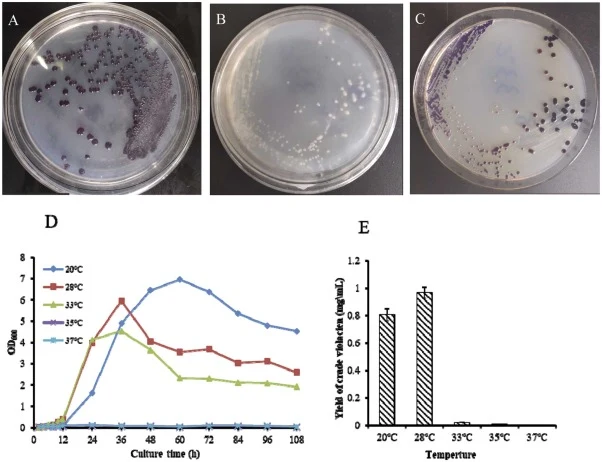
【数据】生长上限温度:>35 ℃不生长;33 ℃:不产色素;28 ℃以下:产色素;温度切换:33 ℃→28 ℃培养3–5天后恢复产色素
3.3 M. atriviolacea SODT的基因组特征
M. atriviolacea SODT基因组由一条7425,094 bp的环状染色体组成,G + C含量65.29 mol%(图3)。主要基因组特征见表2。基因预测显示总基因长度6706,992 bp。基因组含6495个CDS,其中5286个(80.1%)有推定功能注释。基因组中鉴定出14个rRNA操纵子与87个tRNA(表2与图3)。根据COGs数据库,5286个已鉴定基因被归入特定功能类别,包括170个翻译/核糖体功能基因、296个转录基因、224个复制/修复基因、273个细胞壁/膜生物发生基因、125个细胞运动基因、301个氨基酸转运与代谢基因(表S2)。此外,KEGG功能分类展示于图3。基因组分析显示M. atriviolacea SODT具有多种功能。尽管基因组尺寸相对较小,却预测出6495个CDS。M. atriviolacea SODT中与紫色杆菌素合成相关的通路包括星形孢菌素生物合成(KO 00404)与群体感应(KO 02024)。M. atriviolacea SODT中碳代谢与碳水化合物转运蛋白相关基因的存在,可能增强其碳转运能力并促进生长。基于COG功能分类,233个基因与碳水化合物转运及代谢相关。与其他细菌类似,M. atriviolacea SODT通过Embden-Meyerhof-Parnas(EMP)途径或戊糖磷酸(PPP)途径利用糖类。EMP途径通常被认为是葡萄糖分解代谢的经典生化途径。与EMP途径相关的基因,包括葡萄糖-6-磷酸异构酶(MA_5553)与磷酸丙糖异构酶(MA_5082),在M. atriviolacea SODT基因组中检出。此外,M. atriviolacea SODT中PK途径的关键酶,包括磷酸酮醇酶家族蛋白(MA_4690),也已鉴定。在已鉴定的233个基因中,25个编码M. atriviolacea SODT中的转运蛋白,介导多种分子转运,包括氨基酸、ATP结合蛋白与ABC转运蛋白透性酶。这些转运蛋白包括磷酸转移酶系统(PTS;MA_1351、MA_3685、MA_3689、MA_4728)与ATP结合盒(MA_0726、MA_0994、MA_0995、MA_1074、MA_1964、MA_3098、MA_4589、MA_4710、MA_4712、MA_5410、MA_5977)转运系统。研究表明多种菌株能通过碳水化合物PTS将碳水化合物转运进细菌细胞。这些发现为M. atriviolacea SODT菌株在不含色氨酸的高氏I号培养基中高产紫色杆菌素的能力提供了额外证据。值得注意的是,基因组分析还鉴定出一个完整的紫色杆菌素生物合成基因簇(vioA–vioE)及相邻的MFS转运蛋白基因(MA_4174),它们是色素生产的关键。为评估该簇的序列新颖性,我们将vioA–vioE与MA_4174同参考菌株比对(表S3)。在Massilia属内,SODT的vioA–vioE与M. violaceinigra共享高核苷酸(81.97%–85.15%)与氨基酸(76.60%–84.51%)一致性,证实核心生物合成功能的保守性;而与non-Massilia菌株(如C. violaceum)的一致性降至72.22%–79.33%(核苷酸)与53.51%–75.79%(氨基酸),其中vioB查询覆盖度仅48%。值得注意的是,SODT中vio簇与MA_4174物理相邻(距vioE <2 kb),转录组数据证实MA_4174在33 ℃下与vioA–vioE基因显著共下调(表达降低≥4倍)。这些结果表明SODT中的vio簇代表一个属特异性、进化上分化的变体,具有温度响应型生物合物的功能特化。
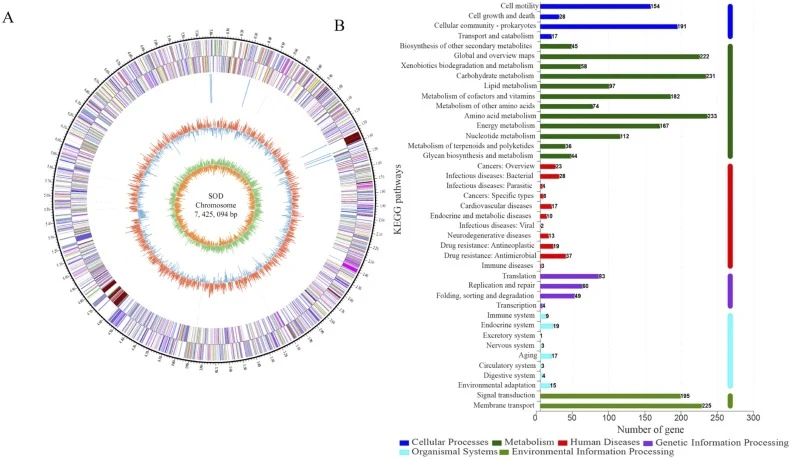
【数据】染色体大小:7425,094 bp;G+C含量:65.29 mol%;基因总长:6706,992 bp;CDS数:6495;功能注释CDS:5286(80.1%);rRNA操纵子:14;tRNA:87;碳水化合物转运/代谢基因:233;转运蛋白基因:25;与M. violaceinigra一致性:核苷酸81.97%–85.15%、氨基酸76.60%–84.51%;与C. violaceum一致性:核苷酸72.22%–79.33%、氨基酸53.51%–75.79%;vioB覆盖度:48%;MA_4174距vioE:<2 kb;33 ℃下MA_4174下调:≥4倍
3.4 M. atriviolacea SODT的转录组分析
为探究温度对紫色杆菌素生物合成的调控机制,对M. atriviolacea SODT在高温(33 ℃:H组)与常温(28 ℃:L组)下进行全基因组转录谱分析。采用RNA-seq量化基因表达谱并鉴定微生物代谢的关键分子机制。6个测序样品共产生超过21 GB干净数据,Q30准确率大于96%。与L组比较,共鉴定出1997个DEGs,其中804个基因转录水平升高、1193个降低(图4)。这些DEGs进一步用KEGG注释进行功能注释与富集分析(图5)。随后用KEGG通路探究特定代谢通路在温度代谢调控中的潜在参与。前20条KEGG通路分析显示,显著富集于代谢通路、鞭毛组装(31个基因)、星形孢菌素生物合成(5个基因)、氮代谢(12个基因)、双组分系统(39个基因)与群体感应(22个基因)。具体而言,编码色氨酸2-单加氧酶(vioA,MA_4169)、聚酮合酶(vioB,MA_4170)与单加氧酶(vioC,MA_4171)的基因被发现主要负责紫色杆菌素的合成。
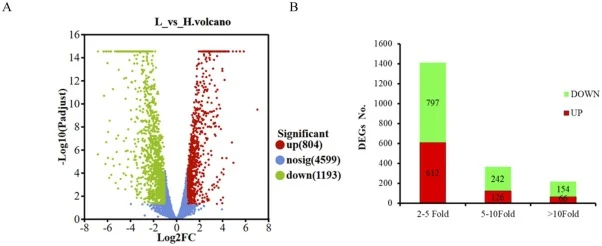
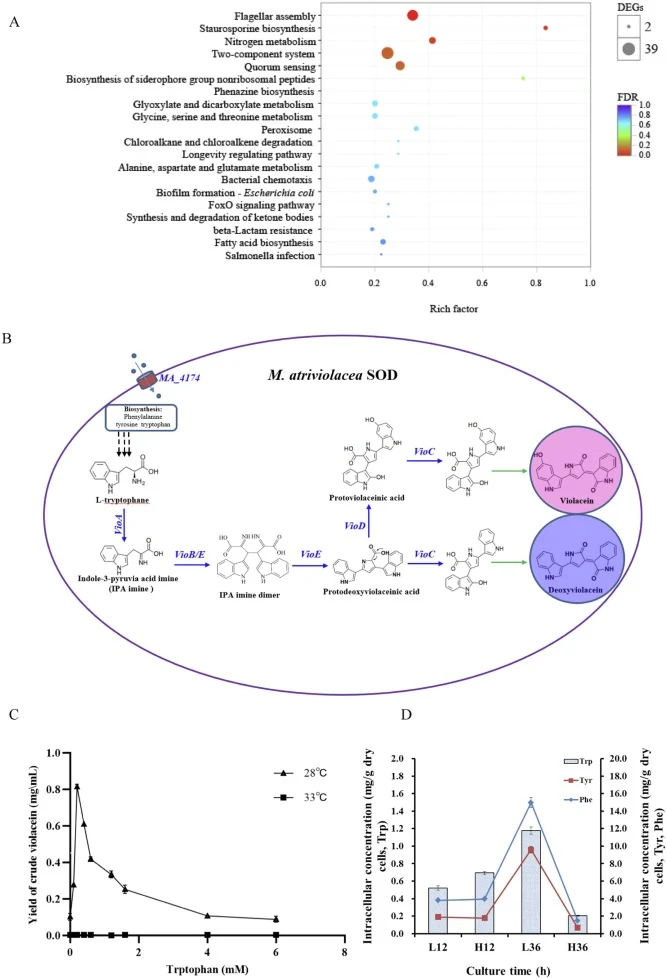
【数据】干净数据量:>21 GB;Q30:>96%;DEG总数:1997(上调804、下调1193);鞭毛组装:31个基因;星形孢菌素生物合成:5个基因;氮代谢:12个基因;双组分系统:39个基因;群体感应:22个基因;关键基因:vioA(MA_4169)、vioB(MA_4170)、vioC(MA_4171)
3.5 温度对紫色杆菌素合成基因表达的影响
为验证转录组数据,用qRT-PCR检测vioABCDE操纵子与MA_4174在28 ℃与33 ℃下12、18、24 h的相对mRNA量。结果显示,高温下vioABCDE簇各基因及MA_4174的转录水平均显著降低,与RNA-seq数据一致(图6)。其中vioA在33 ℃下的下调最为明显。
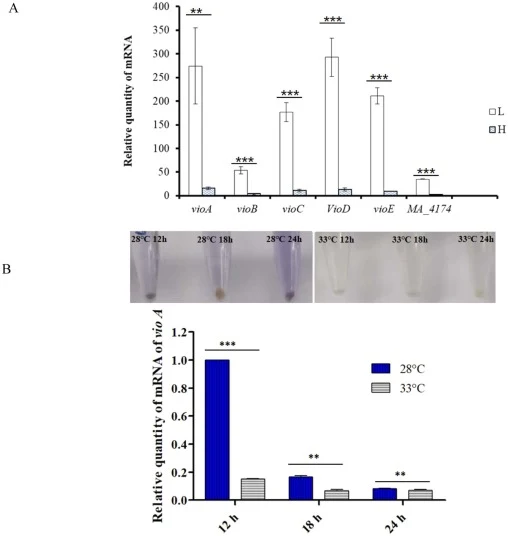
【数据】检测时间点:12、18、24 h;温度:28 ℃与33 ℃;基因:vioABCDE操纵子、MA_4174;显著性水平:p < 0.05()、p < 0.01()、p < 0.001()
3.6 色氨酸补加与胞内游离氨基酸
为检验高温抑制是否源于色氨酸供给不足,在高氏I号培养基中补加0–6.0 mM L-色氨酸,于28 ℃与33 ℃培养。补加色氨酸未能恢复33 ℃下的紫色杆菌素产量(图5C)。转录组数据显示,色氨酸生物合成基因(如trpE、trpG)在33 ℃下仅轻微受抑。胞内游离氨基酸测定进一步支持该结论。
【数据】色氨酸补加浓度:0–6.0 mM;温度:28 ℃与33 ℃;结果:33 ℃下补加色氨酸未恢复产量;trpE、trpG:仅轻微受抑
3.7 蓝色组分I对HeLa细胞的抗癌活性
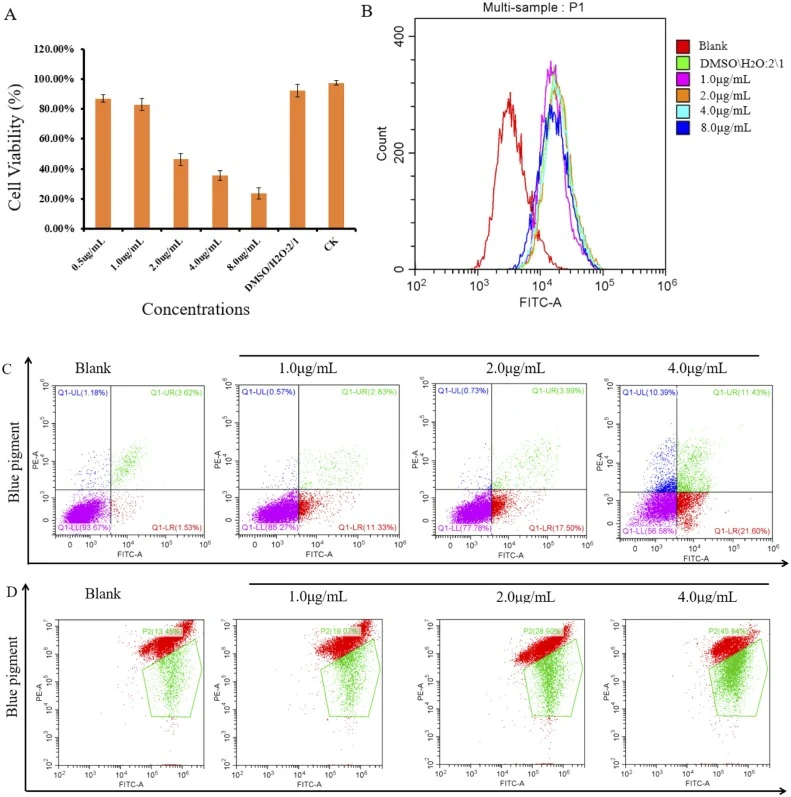
纯化的蓝色组分I对HeLa细胞表现出强抗癌活性,IC₅₀ = 1.92 µg/mL(图7A)。该组分主要诱导线粒体膜电位功能障碍,并影响HeLa细胞内活性氧(ROS)的积累(图7B)。
【数据】IC₅₀:1.92 µg/mL;检测浓度:0、0.625、1.25、2.5、5.0、10 μg/mL(细胞活力);ROS检测浓度:1.0 μg/mL起;细胞系:HeLa
讨论与解读
本研究确认M. atriviolacea SODT以紫色杆菌素为主要紫色素、脱氧紫色杆菌素为次要组分。HPLC、NMR与MS的结构鉴定提供了确凿证据——光谱数据与既往报道高度吻合,7.13 min的保留时间与576 nm的最大吸收波长也符合紫色杆菌素的典型特征。值得关注的是,Massilia属多数菌株产白色或黄色等浅色色素,SODT产紫色杆菌素在属内属独特特征,使其成为在新宿主中研究紫色杆菌素生物合成与调控的有价值材料。脱氧紫色杆菌素的存在虽浓度低,也与产紫色杆菌素菌株常合成相关衍生物的既往发现一致。
温度依赖调控是本研究的核心发现。33 ℃下色素合成被完全抑制,转回28 ℃后恢复,这种可逆模式有别于其他产紫色杆菌素菌株。转录组鉴定出1997个DEGs,vioABCDE操纵子强烈下调;而色氨酸生物合成基因仅轻微受抑,补加实验证实色氨酸供给并非限制因素。qRT-PCR与RNA-seq一致。基因组分析显示SODT拥有完整的vioA–vioE簇及相邻MFS转运蛋白基因MA_4174,后者在33 ℃下与vio簇共下调≥4倍,提示其可能参与温度响应调控。纯化紫色杆菌素对HeLa细胞IC₅₀为1.92 µg/mL,主要经线粒体膜电位功能障碍途径起效。
编译者解读:该研究把温度这个廉价、可逆的物理信号转化为紫色杆菌素产量的开关,工业发酵上可直接用于两阶段工艺——先高温长菌、后降温产色,避免诱导剂成本。局限在于调控节点尚未锁定:MA_4174只是相关性证据,未做敲除或回补验证;转录组仅取12 h单点,动态过程缺失。若后续用CRISPR确认MA_4174或上游双组分系统的因果作用,这套温度开关有望移植到其他底盘。
参考来源
期刊:Industrial Crops and Products, 2026
DOI: 10.1016/j.indcrop.2026.124319
DOI: 10.1016/j.indcrop.2026.124319