来源:Comparative transcriptome analysis identifies pathways and genetic targets associated with low-temperature growth in Saccharomyces cerevisiae(LWT)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
低温发酵在食品工业中可降低能耗、改善风味,但工业酿酒酵母的低温生长性能普遍不佳。本研究对186株酵母进行大规模表型筛选,获得1株耐冷菌株W6与2株独立冷敏菌株W98、W107,通过10 °C与30 °C比较转录组分析揭示耐冷与冷敏的转录特征差异,并经基因敲除验证GRE1、PMA2等8个核心候选基因的功能,为工业低温发酵酵母的理性改造提供了模块化框架与候选靶点。
研究背景
酿酒酵母是全球食品发酵、酿酒与生物制造中应用最广泛、遗传背景最清晰的微生物细胞工厂之一。与中温发酵相比,低温发酵具有多项工业优势:减少有害副产物与异味物质的生成,提高风味酯与高级醇的产量,改善产品稳定性与货架期,并显著节省冷却能耗。这些优势契合可持续、低碳、绿色的食品生产体系。因此,提升工业酵母菌株的低温适应能力成为菌种改造与发酵优化的主要目标之一。
然而低温条件会对酵母细胞造成严重扰动:蛋白折叠与稳定性受损、膜流动性下降、翻译效率受抑、活性氧(ROS)过度积累、胞内pH失衡以及ATP供应不足。这些问题共同导致发酵启动延迟甚至发酵停滞,限制了低温发酵的效率与经济效益。目前酿酒酵母耐冷的分子机制与核心基因仍未被完全阐明。本研究采用一株优势菌株与两株劣势菌株的比较转录组策略,结合交集分析识别与耐冷相关的核心基因与调控网络。
研究方法
2.1 菌株与培养条件
本研究使用的全部菌株(186株酿酒酵母分离株,含关键菌株W6、W98与W107)列于表S1。W1–W120最初分离自中国河北省传统固态食品发酵环境,包括白酒酒醅、小麦曲、馒头起子与果酒发酵醪培养物。编号C系列的菌株为市售工业起子酵母,购自国内酵母生产企业,涵盖面包酵母、果酒发酵酵母与白酒酿造酵母产品,用于食品工业低温发酵应用。所有菌株保藏于河北农业大学工业微生物菌种保藏中心(CCIM-HAU),合格学术研究者可通过合理请求获取。
固体培养基实验中,菌株划线接种于YPD琼脂平板,于30 °C电热恒温培养箱中培养1–2天。待单菌落出现后,平板保存于4 °C。单菌落接种于试管中3 mL YPD液体培养基,30 °C、220 rpm振荡预培养12 h以活化菌株,供后续点板筛选使用。
【数据】菌株数:186株;培养基:YPD;固体培养温度:30°C;固体培养时间:1–2天;保藏温度:4°C;液体预培养体积:3mL;预培养温度:30°C;转速:220rpm;预培养时间:12h
耐冷与冷敏菌株的固体点板筛选:酿酒酵母培养物用3 mL YPD液体培养基标准化。初始培养物调整至OD600 = 0.2,梯度稀释至五个梯度(三重复),点样于YPD琼脂平板。平板于30 °C培养48 h、10 °C培养7天,以评估低温胁迫下的菌落生长。
【数据】初始OD600:0.2;稀释梯度:5个;重复数:3;培养温度:30°C/10°C;培养时间:48h/7天;培养基:YPD琼脂
耐冷表型的液体培养筛选——初筛(96孔板):菌株接种于96孔板中495 μL YPD培养基,30 °C过夜培养。取25 μL转接至475 μL新鲜YPD培养基,重复两次,最后取5 μL转接至495 μL预冷YPD培养基(10 °C)。培养物于30 °C培养48 h、10 °C培养7天。STI值越高表示低温耐受性越强。STI按公式(1)计算。
【数据】初筛体积:495μL;转接体积:25μL/475μL(两次);终转接体积:5μL/495μL;预冷温度:10°C;培养温度:30°C/10°C;培养时间:48h/7天
二次筛选(三角瓶):初筛选出的菌株于3 mL YPD培养基中预培养,取0.2 OD600细胞转接至含20 mL YPD培养基的50 mL三角瓶中。培养物于30 °C与10 °C培养(三重复)。
【数据】预培养体积:3mL;接种量:0.2 OD600;三角瓶规格:50mL;装液量:20mL;培养温度:30°C/10°C;重复数:3
单倍体菌株W6α由二倍体菌株W6经产孢与单孢分离获得。简述:W6细胞于YPD培养基中培养并离心收集。显微镜确认产孢后,子囊壁用2.5%蜗牛酶于45 °C消化1 h。随后热处理灭活营养细胞,释放的孢子稀释后涂布于YPD琼脂。候选菌落用MAT位点特异性引物进行PCR筛选。产生α特异性404-bp扩增子的菌落鉴定为α交配型单倍体,其中一株命名为W6α,作为基因缺失的出发菌株(表S2)。
【数据】蜗牛酶浓度:2.5%;消化温度:45°C;消化时间:1h;α特异性扩增子长度:404bp;培养基:YPD
为验证基因敲除后的表型,采用经典一步基因替换法构建冷相关基因缺失突变体。简述:KanMX抗性盒从pCAS质粒扩增,经重叠PCR与各靶基因上下游侧翼区约500-bp同源序列融合。所得缺失盒用醋酸锂化学转化法转入W6α感受态细胞。转化子在含400 μg/mL G418抗生素的YPD琼脂平板上筛选。培养2天后挑取单菌落提取基因组DNA。用位点特异性验证引物进行诊断性菌落PCR,确认抗性盒正确整合及靶基因成功缺失。抗性盒扩增与基因型验证所用引物列于表S2。基因组DNA用酵母基因组DNA提取试剂盒(北京索莱宝科技有限公司,中国;货号D1900)提取。DNA片段用快速琼脂糖凝胶DNA回收试剂盒(康为世纪,中国;货号CW2302M)按厂家说明纯化。
【数据】同源臂长度:约500bp;抗性盒:KanMX;G418浓度:400μg/mL;筛选培养时间:2天;基因组提取试剂盒货号:D1900;胶回收试剂盒货号:CW2302M
2.2 RNA提取与测序
所选酿酒酵母菌株于30 °C培养6 h,随后于10 °C培养2天,使细胞同步于对数生长期。每种菌株在每个温度条件下制备三个独立生物学重复,共18个RNA-seq文库。离心后菌体于液氮中速冻并冻干。冻干样品装入干冰冷却的保温容器,运至诺禾致源(北京,中国)进行RNA提取与转录组测序。总RNA用于建库。多聚腺苷酸化mRNA用Oligo(dT)磁珠富集,并在片段化缓冲液中随机打断。第一链cDNA用M-MuLV逆转录酶合成,随后用RNase H降解RNA,并用DNA聚合酶I与dNTPs合成第二链cDNA。经末端修复、加A尾、接头连接及AMPure XP磁珠片段选择后,约370–420 bp的cDNA片段经PCR扩增并纯化,构建测序文库。文库质量用Qubit 2.0荧光仪与Agilent 2100生物分析仪评估,文库浓度用qRT-PCR测定。文库在Illumina NovaSeq 6000平台以150 bp双端测序。18个样品每样产生19.96–24.05百万原始reads,质控后保留19.22–23.17百万clean reads。对应原始与clean数据量分别为每样2.95–3.61 Gb与2.88–3.48 Gb。测序错误率0.02%–0.03%。Q20与Q30分别为97.76%–98.07%与93.46%–94.22%,GC含量41.75%–42.69%。质控中去除含接头与低质量reads,所得clean reads用于后续分析。样品级测序质量详细统计见补充表S3。
【数据】培养温度:30°C 6h + 10°C 2天;生物学重复:3;文库数:18;片段长度:370–420bp;测序平台:Illumina NovaSeq 6000;读长:150bp双端;原始reads:19.96–24.05百万/样;clean reads:19.22–23.17百万/样;原始数据量:2.95–3.61Gb;clean数据量:2.88–3.48Gb;错误率:0.02%–0.03%;Q20:97.76%–98.07%;Q30:93.46%–94.22%;GC含量:41.75%–42.69%
2.3 基于SNP的系统发育与遗传距离分析
对菌株W6、W98与W107进行全基因组重测序。clean短reads用BWA-MEM v0.7.17比对至酿酒酵母R64参考基因组(GCF_000146045.2)。单核苷酸多态性(SNP)变异调用用GATK4 HaplotypeCaller进行。低质量变异按以下标准过滤:QD < 2.0、FS > 60.0、MQ < 40.0、SOR > 3.0、ReadPosRankSum < -8.0、MQRankSum < -12.5。仅保留双等位高置信SNP位点用于下游分析。拼接SNP位点的多序列比对用IQ-TREE v2.2.0构建最大似然(ML)系统发育树,1000次超快自举重复评估分支支持度。所得系统发育树以CEI为外群定根。菌株间成对遗传距离由SNP矩阵计算。
【数据】比对工具:BWA-MEM v0.7.17;参考基因组:GCF_000146045.2;变异调用:GATK4 HaplotypeCaller;过滤阈值:QD<2.0、FS>60.0、MQ<40.0、SOR>3.0、ReadPosRankSum<-8.0、MQRankSum<-12.5;建树软件:IQ-TREE v2.2.0;自举重复:1000次;外群:CEI
2.4 转录组数据分析
转录组数据分析使用酿酒酵母R64参考基因组(NCBI组装号:GCF_000146045.2)。clean reads用HISAT2 v2.0.5比对至参考基因组。18个RNA-seq文库总比对率93.35%–95.38%,唯一比对率87.09%–92.60%,多重比对部分原文未详述。
【数据】比对工具:HISAT2 v2.0.5;参考基因组:GCF_000146045.2;总比对率:93.35%–95.38%;唯一比对率:87.09%–92.60%;文库数:18
研究结果
3.1 用于转录组测序的低温敏感与耐受菌株筛选
我们对186株酿酒酵母在低温10 °C与常温30 °C下进行了初步生长评估。通过液体培养并计算STI值,选择更客观、可量化的评价标准,有助于准确识别与筛选低温耐受性优良的酿酒酵母菌株。186株酿酒酵母的STI值范围为0.08至0.999(图1A)。仅依据STI排序,对耐冷性最好的前十株(C1、C2、C23、C58、C59、W6、W56、W65、W92与W96)与耐冷性较差的十株(BY4743、C5、C29、W98、W100、W105、W106、W107、W113与W120)进行复筛,以获得用于转录组测序的低温耐受与敏感菌株。20株复筛菌株中,W6在10 °C摇瓶培养中生长最强,W98与W107生长最差(图S1)。因此选取这三株进行转录组测序。关键菌株W6、W98与W107的点稀释实验进一步证实,W6在10 °C生长良好,而W98与W107在低温下表现显著生长缺陷(图1B)。
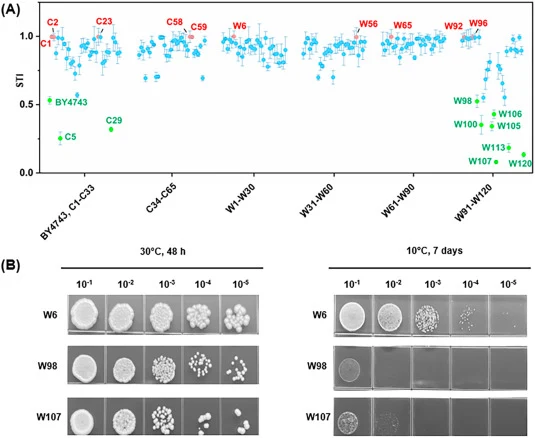
【数据】菌株数:186株;STI范围:0.08–0.999;低温:10°C;常温:30°C;复筛菌株数:20株;耐冷最强:W6;冷敏最差:W98、W107
3.2 耐冷菌株对低温胁迫的全局转录响应
我们对耐冷酵母W6与两株独立冷敏菌株W98、W107在常温(30 °C)与低温(10 °C)条件下进行转录组测序,以揭示不同耐冷表型背后的全局转录调控机制。比较研究表明,三株菌在冷胁迫下均发生显著的转录组重编程,且基因表达差异明显。为评估数据质量与样品间变异,基于全部18个样品的FPKM表达谱进行PCA与重复相关性分析。如图S2所示,样品按菌株与温度清晰聚类,各条件下生物学重复形成紧密分组,表明重复性高。重复相关性热图进一步证实生物学重复间的一致性,以及W6与两株冷敏菌株之间、30 °C与10 °C条件之间的明显转录分离(图S3)。这些结果验证了转录组数据用于后续差异表达分析的可靠性。
与常温相比,耐冷菌株W6在低温胁迫下共有1,086个显著差异表达基因(DEGs),其中471个上调、615个下调(图2A)。基因本体(GO)富集分析显示,上调基因主要富集于氧化还原酶活性、过氧化物酶体功能、羧酸代谢与氧化还原稳态相关生物学过程,这些过程与冷胁迫下细胞损伤修复及活性氧(ROS)清除密切相关(图2B)。相反,下调基因主要富集于细胞质翻译、核糖体生物发生与核糖体结构成分(图2C)。
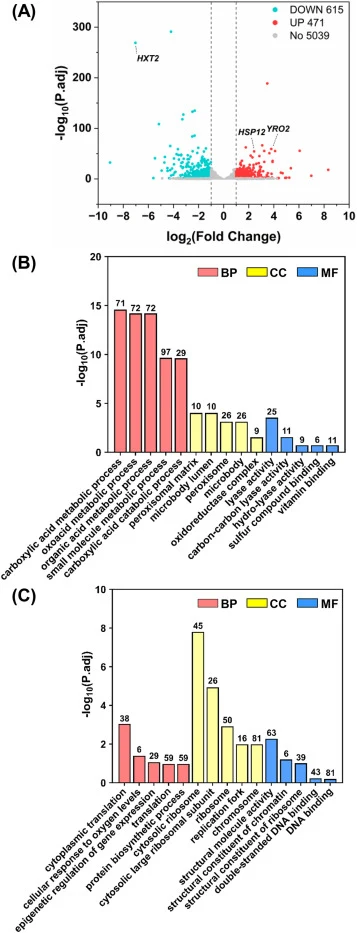
【数据】DEGs总数:1,086;上调:471;下调:615;比较条件:10°C vs 30°C;样品数:18;生物学重复:3
3.3 冷敏性的转录特征
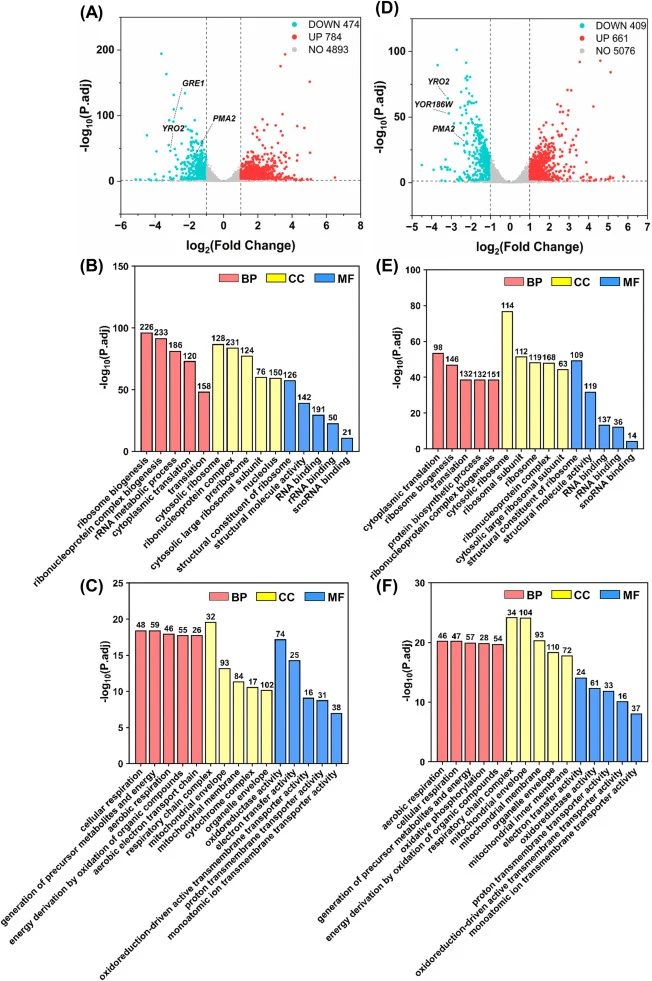
在冷敏酵母W98中,冷胁迫响应共发现1,258个DEGs,包括474个下调与784个上调基因(图3A)。GO富集分析显示,上调基因主要富集于核糖体结构成分、核糖体生物发生、核糖核蛋白复合物组装与rRNA代谢过程,提示以翻译相关活性过度激活为标志的强烈整体应激响应(图3B)。下调表达基因则高度富集于有氧呼吸、线粒体氧化磷酸化、质子跨膜运输、电子传递链活性与ATP生成,表明线粒体能量代谢严重受损(图3C)。类似地,冷敏菌株W107中有1,070个基因差异表达,其中409个下调、661个上调(图3D)。W107上调基因主要富集于细胞质翻译、核糖核蛋白复合物生物发生、核糖体生物发生与rRNA结合,与独立的W98一致(图3E)。线粒体内膜功能、有氧呼吸、电子传递、有机分子氧化供能以及前体代谢物与能量生成相关功能均显著集中于下调基因(图3F)。
我们首先考察两株冷敏菌株W98与W107的共同转录响应,以寻找支撑耐冷性的强分子指纹(图4)。维恩图分析显示,两株敏感菌在冷胁迫下分别有534个与330个基因共同上调或下调。功能富集显示,共同上调基因主要参与核糖体生物发生、细胞质翻译与rRNA加工,提示一般性应激响应。另一方面,共同下调基因显著富集于有氧呼吸、电子传递链活性、ATP产生与线粒体氧化磷酸化。总体而言,两株冷敏菌W98与W107在低温胁迫下呈现非适应性转录模式:线粒体能量代谢与ATP产生系统性受抑,同时激活以核糖体生物发生过度为特征的一般应激响应。而耐冷菌株W6则通过精细调控氧化还原平衡、能量利用与细胞稳态,在冷胁迫下维持强劲生长。
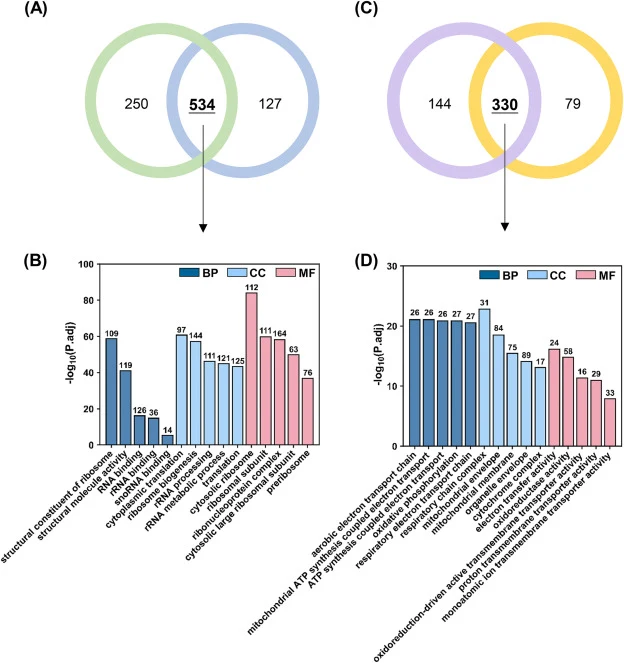
【数据】W98 DEGs:1,258(上调784/下调474);W107 DEGs:1,070(上调661/下调409);共同上调基因:534;共同下调基因:330;比较条件:10°C vs 30°C
3.4 交集分析揭示W6耐冷相关核心通路与基因
我们进行严格的交集分析,以避免菌株特异性噪声并提高候选基因鉴定的准确性。传统转录组研究常采用一株耐受株与一株敏感株,可能因个体遗传背景差异导致假阳性。为规避此限制,我们采用比较组学研究中公认且经验证的方法:寻找在耐受株中显著上调、且在两株独立敏感株中一致下调的基因。共获得40个在耐受与敏感表型间表达模式持续相反的基因(图5A)。层次聚类与热图可视化证实了这些基因的高度差异表达模式——在W6中强烈上调,而在W98与W107中显著受抑(图5B)。功能注释与富集分析显示,这40个关键基因主要分布于碳代谢、TCA循环、丙酮酸代谢、氧化磷酸化、氧化还原稳态、甘油代谢与跨膜运输等通路(图5C与5D)。因此,这些基因被视为与W6耐冷表型相关的候选转录特征。由于仅纳入一株耐冷菌株,尚不能将其视为耐冷的分子模块或通用决定因子集合。这些基因可能对酵母适应低温至关重要。
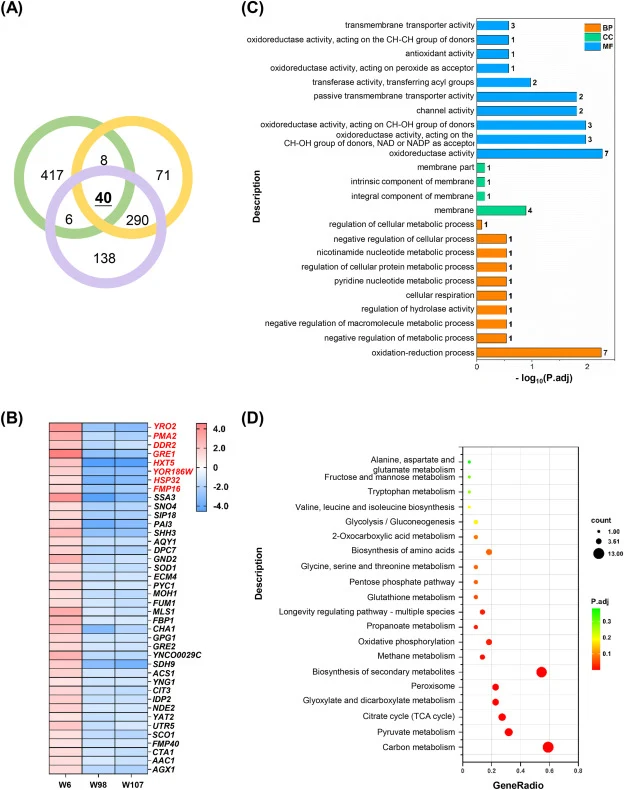
【数据】交集基因数:40;筛选标准:W6上调且W98/W107一致下调;主要通路:碳代谢、TCA循环、丙酮酸代谢、氧化磷酸化、氧化还原稳态、甘油代谢、跨膜运输
3.5 核心候选基因的基因敲除功能验证
交集分析鉴定的40个基因中,选取8个差异表达显著(log2FoldChange > 1.5)的基因(PMA2、YRO2、FMP16、HXT5、YOR186W、DDR2、GRE1与HSP32)进行后续功能验证。
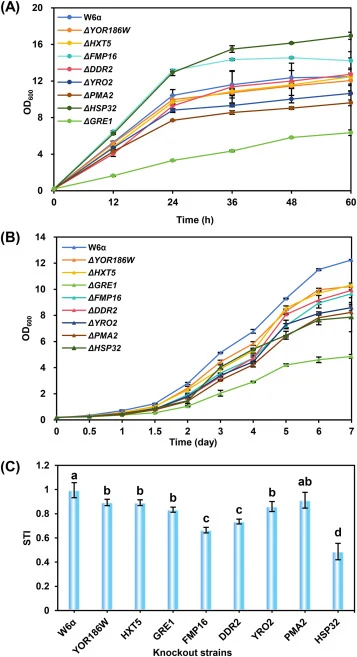
【数据】候选基因数:8;筛选阈值:log2FoldChange > 1.5;基因:PMA2、YRO2、FMP16、HXT5、YOR186W、DDR2、GRE1、HSP32
讨论与解读
低温发酵在现代食品工业中优势明显:降低能耗、减少副产物积累、增强风味形成并支撑可持续绿色制造。但酿酒酵母耐冷的分子机制与核心基因仍不完全清楚。本研究采用一株优势菌与两株劣势菌的比较转录组分析,识别与耐冷相关的核心基因与调控网络。与单菌株转录组分析相比,比较转录组测序结合交集分析能更可靠、高效地揭示胁迫响应的潜在分子机制,便于识别贡献胁迫耐受表型的通用关键基因与核心调控机制。
基于SNP的系统发育树与成对遗传距离热图(图S4)为菌株关系提供了基因组证据。三株菌中,W107与W6遗传距离最小(0.08),W98与W6遗传分歧较大(0.13)。两株冷敏菌W98与W107之间的成对距离达0.17,表明二者是遗传上不同的菌株而非近缘姊妹株,尽管其冷敏表型相似。换言之,两株冷敏分离株代表两种不同的遗传背景。
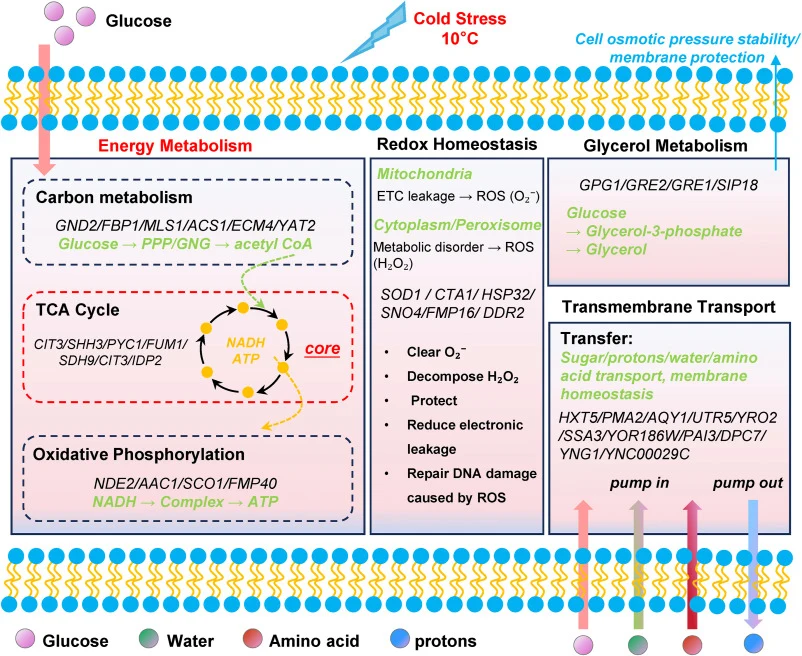
编译者解读:该研究以"一耐冷对两独立冷敏"的三角比较设计替代常规单对比较,有效压低遗传背景噪声,交集得到的40基因集与8个敲除验证靶点(GRE1、PMA2分别贡献约60%与33%低温生长能力)具备直接改造价值。局限在于耐冷侧仅W6一株,模块普适性尚未闭环;HSP32、FMP16敲除呈现30 °C增益而低温受损的温度依赖 fitness 权衡,提示工业菌改造须按发酵温度窗口取舍,后续宜在多株工业背景中做等位替换与启动子调优验证。
参考来源
期刊:LWT, 2026
DOI: 10.1016/j.lwt.2026.120115
DOI: 10.1016/j.lwt.2026.120115