来源:Identification of a key glycosyltransferase and de novo biosynthesis of rare oleanane-type pseudoginsenoside RT1 in Saccharomyces cerevisiae(Chinese Herbal Medicines)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
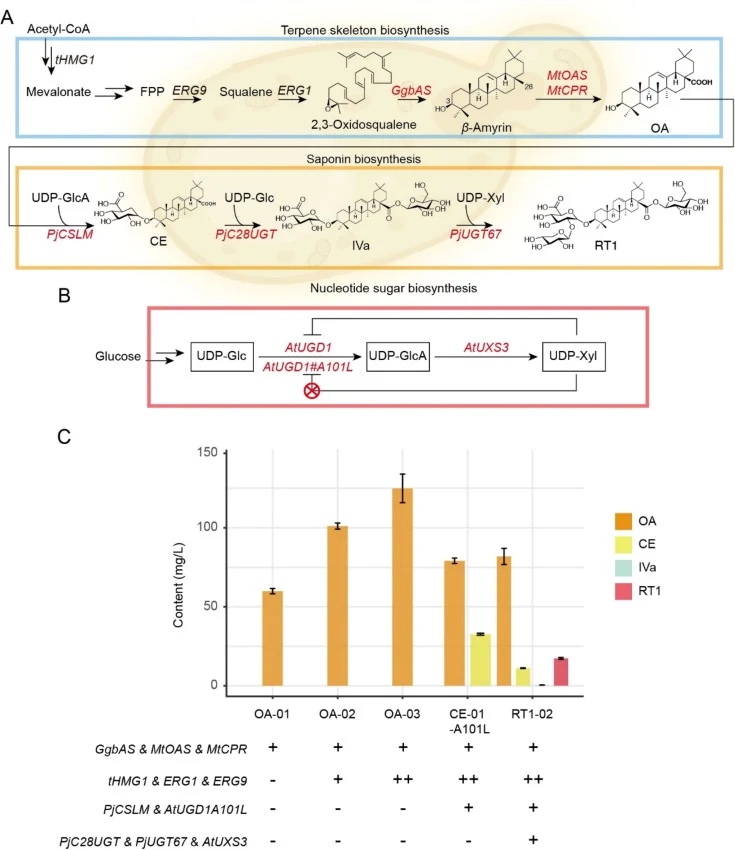
伪人参皂苷RT1是竹节参中一种稀有的乌苏烷型(OA型)皂苷,天然丰度低、提取困难,制约了其开发应用。本研究以β-香树脂醇合酶PjbAS1/PjbAS2为诱饵基因开展共表达分析,从竹节参中锁定并功能鉴定了UDP-木糖基转移酶PjUGT67,证实其催化竹节参皂苷IVa木糖基化生成RT1;同时验证PjCSLM与PjC28UGT分别催化齐墩果酸→CE、CE→IVa,从而串联出OA→CE→IVa→RT1的完整糖基化路线。研究进一步在酿酒酵母中整合OA合成、逐步糖基化与UDP-木糖供给模块,构建工程菌株RT1-02,实现RT1从头合成,产量达17.34 mg/L。
研究背景
人参属植物广泛用于功能性食品、膳食补充剂和药材。人参皂苷是该属的主要活性成分,具有抗癌、免疫调节、抗痴呆、抗衰老和抗过敏等多种生理活性。这类化合物通常分为四环达玛烷型(DM型)和五环乌苏烷型(OA型)两大类。DM型人参皂苷的生物合成网络研究已取得显著进展,而OA型人参皂苷的生物合成途径相对研究不足。
在栽培人参属物种中,西洋参是功能性食品与膳食补充剂中消费量最大的药材之一,其皂苷谱以达玛烷型为主,主要成分如Rb1、Rc、Rd和Re,OA型皂苷一般为次要成分。竹节参则富含OA型人参皂苷,是阐明OA型人参皂苷生物合成途径的理想模式材料。然而,竹节参野生资源有限,加之RT1等稀有OA型皂苷天然含量低、提取效率不高,其应用受到限制。因此,解析RT1的糖基化步骤并通过微生物异源合成实现其生产,具有明确的现实需求。
研究方法
2.1 植物材料、试剂与菌株
竹节参样品于2021年8月采集自中国湖北省恩施土家族苗族自治州,由Zhengtao Wang教授鉴定。采集根茎、侧根、茎、叶四个组织,每个组织设三个独立生物学重复。所有样品保存于上海中医药大学中药研究所。酿酒酵母菌株CEN.PK2-1C(MATa; his3Δ1; leu2-3_112; ura3-52; trp1-289; MAL2-8c; SUC2)作为菌株构建的背景菌株。大肠杆菌Trans1-T1(CD501,TransGen Biotech,北京,中国)用于质粒构建与扩增。大肠杆菌BL21 (DE3) 用于PjUGTs的异源表达。根癌农杆菌GV3101用于本氏烟草浸润实验。所有引物(表S1)由Sangon Biotech(上海,中国)合成。酵母提取物、胰蛋白胨、蛋白胨、琼脂粉及其他化学品购自OXOID Ltd.(Thermo Fisher Scientific,Basingstoke,英国)。所有化学标准品均为分析参考标准级,纯度≥98%,购自Must Phytochemicals(四川,中国)。所有经密码子优化的异源基因(表S2),包括来自甘草的β-香树脂醇合酶(GgbAS,GenBank: Q9MB42.1)、来自蒺藜苜蓿的β-香树脂醇28-氧化酶/齐墩果酸合酶(MtOAS,GenBank: CBN88268.1)、来自蒺藜苜蓿的NADPH-细胞色素P450还原酶(MtCPR,GenBank: XP_003602898.1)、来自拟南芥的UDP-葡萄糖脱氢酶1(AtUGD1,GenBank: NP_173979.1)以及来自拟南芥的UDP-木糖合酶3(AtUXS3,GenBank: NP_001078768.1),均由Generay Biotech(上海,中国)合成。
【数据】采样时间:2021年8月;采样地点:湖北恩施;组织数:4(根茎、侧根、茎、叶);生物学重复:每组织3个;标准品纯度:≥98%;酵母背景菌株:CEN.PK2-1C;表达宿主:E. coli BL21 (DE3);浸润菌株:A. tumefaciens GV3101
2.2 基因共表达分析
为研究PjbAS与PjUGT基因之间的关系,使用base R stats包中的cor函数计算Pearson相关系数。在PjbAS与Non-Redundant(NR)数据库中注释为UGT的转录本之间进行共表达分析(https://blast.ncbi.nlm.nih.gov/Blast.cgi)。相应相关性数据汇总于表S3。Pearson相关系数r ≥ 0.6的基因被判定为与PjbAS强相关,随后用于构建PjUGT基因共表达网络。共表达网络使用Cytoscape(版本3.10.3)可视化。r ≥ 0.6的阈值作为初步候选筛选的中等标准,最终优先级进一步受NR注释、系统发育位置和序列完整性约束。
【数据】相关系数阈值:r ≥ 0.6;统计工具:R base stats cor函数;网络可视化软件:Cytoscape 3.10.3;数据库:NR
2.3 系统发育分析
拟南芥UGT代表性氨基酸序列采集自"Arabidopsis Cytochrome P450, Cytochrome b5, P450 Reductase, β-Glucosidase, and Glycosyltransferase Site"(https://www.p450.kvl.dk/UGT.shtml)。候选氨基酸序列来自预测的竹节参UGT全长编码序列,纳入系统发育分析。蛋白序列比对使用MUSCLE程序完成,Neighbor-Joining树使用MEGAX程序构建,bootstrap值由10 000次重复计算得出。系统发育树的可视化与注释使用R包ggtree完成。
【数据】bootstrap重复次数:10 000;比对软件:MUSCLE;建树软件:MEGAX;可视化:R ggtree;方法:Neighbor-Joining
2.4 分子克隆、异源表达与蛋白纯化
竹节参根茎总RNA使用TranZolTM试剂盒(ER511,TransGen Biotech,北京,中国)提取,并用Prime Script™ IV 1st Strand cDNA Synthesis Mix(6215A,Takara Biomedical Technology,北京,中国)逆转录为cDNA。设计引物扩增PjUGTs全长cDNA,PCR使用Prime STAR Max Premix DNA Polymerase(R045Q,Takara Biomedical Technology,北京,中国)进行。纯化的PCR产物用Easy Pure PCR Purification kit(EP101,TransGen Biotech,北京,中国)制备,随后插入pCold™TF(trigger factor)冷休克表达载体和pHB-yellow fluorescent protein(YFP)植物表达载体。重组质粒转化大肠杆菌Trans1-T1感受态细胞(CD501,TransGen Biotech,北京,中国)。测序验证后,重组质粒pCold-TF-PjUGT转化大肠杆菌BL21 (DE3)(TransGen Biotech,北京,中国)进行异源表达。
转化克隆接种于含5 g/L酵母提取物(LP0021B,OxoidTM,Basingstoke,英国)、10 g/L胰蛋白胨(LP0042B,OxoidTM,Basingstoke,英国)、10 g/L NaCl(10019318,Sinopharm Chemical Reagent Co., Ltd.,上海,中国)和50 μg/mL氨苄青霉素的Luria-Bertani(LB)培养基中,37 ℃振荡培养。当培养物A600达到0.6时,立即于冰水中冷却30 min。加入异丙基β-D-1-硫代吡喃半乳糖苷至终浓度0.5 mmol/L,培养物于15 ℃继续培养24 h。细胞经10 000 r/min离心5 min收获,重悬于50 mmol/L Tris-HCl缓冲液(pH 7.0,ST774,Beyotime Biotech Inc,上海,中国),随后用高压均质机在600 bar下破碎。于4 ℃、12 000 r/min离心30 min去除细胞碎片,蛋白使用HisTrap HP His标签柱(17524801,Cytiva,美国)纯化。PjUGT以trigger factor标签表达,用含20–250 mmol/L咪唑的50 mL洗脱缓冲液洗脱。蛋白定量使用Enhanced BCA Protein Assay Kit(P0010S,Beyotime Biotechnology,上海,中国;图S1)进行。
【数据】LB培养基:5 g/L酵母提取物、10 g/L胰蛋白胨、10 g/L NaCl;抗生素:50 μg/mL氨苄青霉素;诱导温度:37 ℃至A600=0.6;冰浴时间:30 min;IPTG浓度:0.5 mmol/L;诱导温度/时间:15 ℃、24 h;收菌离心:10 000 r/min、5 min;破碎压力:600 bar;除碎片离心:12 000 r/min、30 min、4 ℃;洗脱咪唑:20–250 mmol/L;缓冲液:50 mmol/L Tris-HCl pH 7.0
2.5 酶活测定
在不同条件下表征PjUGT67的酶活,以确定其最佳操作参数。酶反应标准体积为100 μL,包含50 mmol/L Na2HPO4-NaH2PO4缓冲液(pH 7.0,C0221B,Beyotime Biotech Inc,上海,中国)、50 μg纯化PjUGT67、0.5 mmol/L糖基供体和0.1 mmol/L糖基受体。为确定最适pH,反应于35.0 ℃进行30 min,pH范围5.00至10.00,使用柠檬酸–柠檬酸钠(pH 5.0–6.0)、Na2HPO4-NaH2PO4(pH 6.0–8.0)、Tris-HCl(pH 8.0–9.0)和Na2CO3-NaHCO3(pH 9.0–10.0)缓冲体系。最适反应温度通过在确定的pH范围内、25 ℃至40 ℃下进行反应来评估。每个条件设三次重复实验。反应通过加入冰冷甲醇终止,并于12 000 r/min离心30 min。上清液用高效液相色谱(HPLC)和液相色谱-质谱(LC/MS)分析。
为测定PjUGT67的动力学参数,酶反应在200 μL反应体系中进行,含50 μg纯化重组PjUGT67、1.0 mmol/L UDP-Xyl和不同浓度的竹节参皂苷IVa(0–100 μmol/L)。反应于35 °C恒温进行30 min,缓冲液为50 mmol/L Na2HPO4-NaH2PO4(pH 7.0)。加入200 μL甲醇终止反应。所有实验均设三次重复。使用标准化合物浓度梯度构建校准曲线(图S2)以定量反应产物。动力学参数通过将实验数据拟合至Michaelis-Menten方程计算,并通过协同作图分析进一步验证。
【数据】反应体积:100 μL;缓冲液:50 mmol/L Na2HPO4-NaH2PO4 pH 7.0;酶量:50 μg;糖基供体:0.5 mmol/L;糖基受体:0.1 mmol/L;pH范围:5.00–10.00;最适pH考察温度/时间:35.0 ℃、30 min;温度范围:25–40 ℃;终止:冰冷甲醇;离心:12 000 r/min、30 min;动力学反应体积:200 μL;UDP-Xyl:1.0 mmol/L;IVa浓度范围:0–100 μmol/L;动力学温度/时间:35 °C、30 min;终止甲醇:200 μL;重复:三次
2.6 亚细胞定位实验
携带pHB-EYFP和pHB-PjUGT67-EYFP的农杆菌菌株在含抗生素的10 mL LB培养基中培养(原文节选至此,后续步骤未详述)。
【数据】培养基体积:10 mL;培养基:LB;载体:pHB-EYFP、pHB-PjUGT67-EYFP;原文未详述:抗生素种类与浓度、培养温度时间、浸润条件
研究结果
3.1 关键功能基因挖掘
OA型人参皂苷被鉴定为竹节参的特征代谢物,并呈现明显的组织特异性分布:根茎中积累最高,侧根中等,茎和叶中仅痕量水平(图1 A–C)。定量代谢物数据来自我们此前已发表的研究(Huang et al., 2023),并在本研究中与转录组数据进行整合分析复用。由于β-香树脂醇合酶(bAS)催化形成β-香树脂醇——RT1及其他OA型人参皂苷的关键三萜骨架,它被认为是OA型人参皂苷生物合成途径中的关键上游酶。为鉴定竹节参中相应的bAS基因,利用不同组织进行转录组分析,并以GgbAS(NCBI登录号:AB037203.1)为查询序列进行BLAST搜索,鉴定出两个同源转录本,命名为PjbAS1和PjbAS2。表达模式分析显示,PjbAS1和PjbAS2均表现出与OA型人参皂苷分布模式高度一致的组织特异性表达谱:根茎中表达最高,侧根中等,茎和叶中低得多(图1D)。代谢物积累与基因表达之间的这种对应关系进一步支持PjbAS1和PjbAS2参与OA型人参皂苷生物合成。
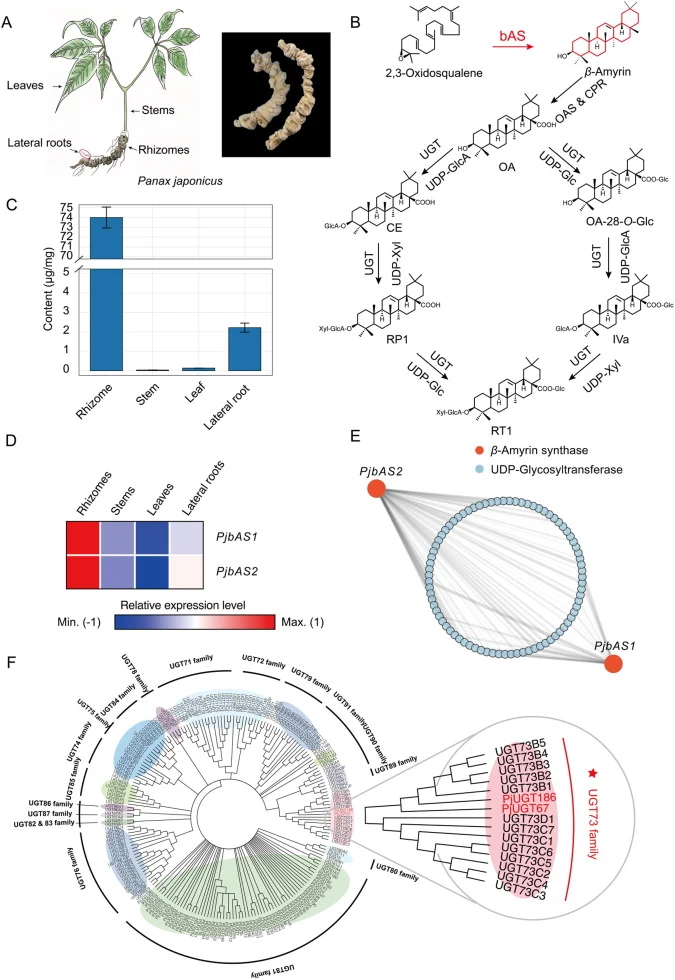
此外,既往研究表明,生物合成途径上下游步骤的基因往往表现出高度相关的表达谱,这为通过共表达分析发现途径基因提供了有用基础。因此,选择PjbAS1和PjbAS2作为诱饵基因进行后续共表达分析,以鉴定参与RT1生物合成的未揭示关键UDP-木糖基转移酶。本研究中,PjbAS1和PjbAS2分别用于与竹节参转录组中其他转录本进行相关性分析。应用两条具体标准筛选候选基因以供进一步研究:(1)与PjbAS1和PjbAS2均高共表达的基因(每个转录本的Pearson相关系数≥0.6);(2)在Non-redundant(NR)数据库中注释为糖基转移酶的基因。随后构建基因共表达网络,以可视化PjbAS1、PjbAS2与满足两条标准的79个候选基因之间的关系(图1E)。
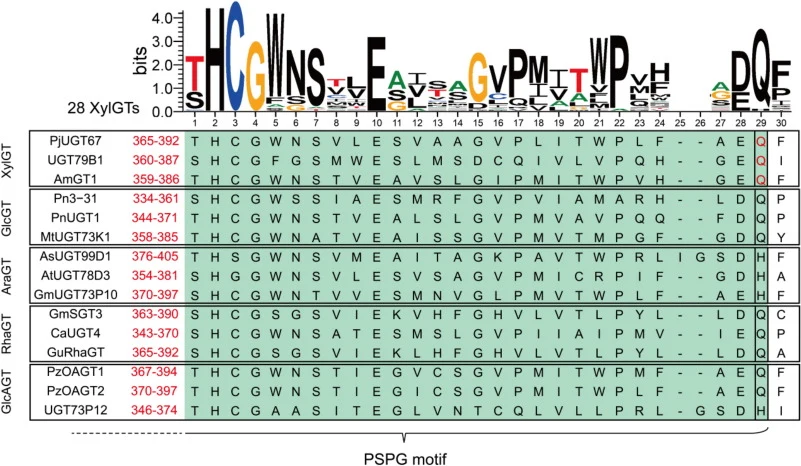
为评估候选基因的进化关系并推断其潜在功能,使用候选PjUGTs的推导氨基酸序列与拟南芥代表性UGTs,通过Neighbor-Joining法构建系统发育树(图1F)。候选PjUGTs分布于多个UGT家族,包括UGT71、UGT72、UGT73、UGT74、UGT80、UGT81、UGT91和UGT92,表明共表达分析检索到功能多样的糖基转移酶候选集。然而,并非所有这些候选基因同等可能参与RT1生物合成。其中,UGT73家族受到特别关注,因为许多已功能表征的五环三萜糖基转移酶属于该分支。既往研究表明,UGT73成员通常催化五环三萜的糖基化,包括齐墩果酸、常春藤皂苷及相关骨架C-3、C-23和C-28等位置的修饰。在系统发育树中,PjUGT67和PjUGT186均位于UGT73家族内,使其比其他分布在更远缘UGT分支中的共表达PjUGTs更可能是三萜皂苷糖基化的候选者。然而,PjUGT186未选作进一步功能表征,因为其预测编码序列明显短于植物家族1 UGTs的典型长度,提示其可能代表不完整或截短的转录本。相比之下,PjUGT67编码具有预期序列特征的全长UGT,因此是最适合生化验证的候选者。通过比较,其他候选PjUGTs虽被共表达分析保留,但归属于与已知五环三萜活性UGT73酶关联较不密切的UGT家族。综上,系统发育位置、序列完整性和UGT73分支的功能先例共同支持PjUGT67作为后续功能分析的最高优先级候选者。
【数据】组织分布:根茎最高、侧根中等、茎叶痕量;bAS同源转录本:2个(PjbAS1、PjbAS2);Pearson阈值:r ≥ 0.6;候选基因数:79个;候选UGT家族:UGT71、72、73、74、80、81、91、92;重点关注家族:UGT73;GgbAS登录号:AB037203.1
3.2 PjUGT67的功能表征
PjUGT67的编码序列(CDS)从竹节参根茎cDNA扩增,克隆至表达载体pCold TF进行异源表达。为表征其酶功能,携带N端6×His标签的重组PjUGT67在大肠杆菌中表达。细胞破碎后,融合蛋白通过固定化金属亲和层析纯化。SDS-PAGE分析显示,纯化的融合蛋白(含trigger factor标签)表观分子量约为108.5 kDa(图S3)。重组PjUGT67的酶活按方法部分所述测定。将IVa与重组PjUGT67和UDP-Xyl共孵育后,HPLC鉴定出一个新产物,其保留时间与RT1标准品一致(图2 A–B)。进一步LC-MS分析确认了该产物的身份。如图2C所示,主要碎片离子出现在m/z 926.344 3 [M−H]−、m/z 763.312 0 [M−H−Glc]−、m/z 613.280 3 [M−H−Glc−Xyl−H2O]−和m/z 455.282 2 [M−H−Glc−Xyl−GluA]−,与RT1标准品的特征碎裂模式一致。该碎裂途径表明C-28葡萄糖基部分优先断裂,随后C-3糖链末端木糖基残基丢失并伴随脱水,继而去除C-3葡萄糖醛酸基残基生成苷元相关离子。
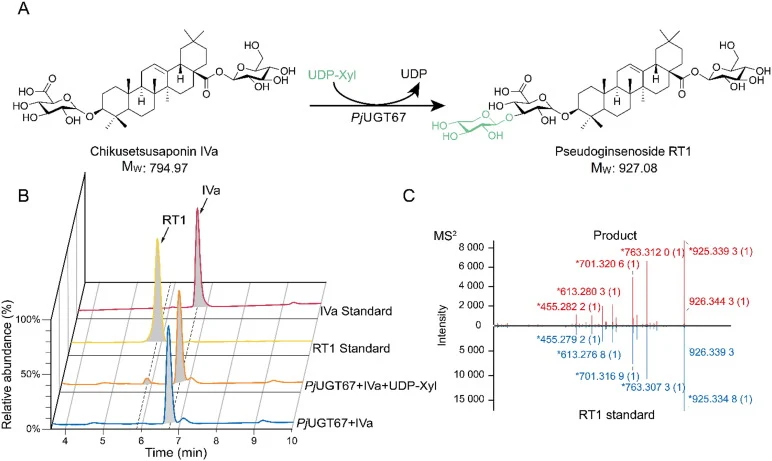
综上,这些结果表明PjUGT67作为UDP-木糖基转移酶,能够催化IVa转化为RT1。尽管体外实验证明PjUGT67催化IVa到RT1的转化,仍需直接的植物体内遗传验证以确认其在竹节参中的生理作用。此外,PjUGT67的功能表征为在酵母中重建RT1途径提供了重要基础,并支持该稀有乌苏烷型人参皂苷异源从头生产的可行性。
【数据】融合蛋白表观分子量:约108.5 kDa;标签:N端6×His;产物离子:m/z 926.344 3 [M−H]−、763.312 0 [M−H−Glc]−、613.280 3 [M−H−Glc−Xyl−H2O]−、455.282 2 [M−H−Glc−Xyl−GluA]−;底物:IVa(MW 794.97);产物:RT1(MW 927.08);供体:UDP-Xyl
3.3 PjUGT67的酶学性质与亚细胞定位
为进一步明确PjUGT67的催化特征并更好理解其在RT1生物合成中的作用,我们系统表征了其生化性质、底物范围、糖基供体偏好和亚细胞定位。这些分析不仅旨在评估PjUGT67的体外酶学行为,也旨在为理解该UGT如何参与竹节参中RT1形成的最终糖基化步骤提供机制见解。首先评估一系列温度以确定PjUGT67的最适反应温度。该酶在35 ℃时表现最大活性(图3A)。当温度升高至35 ℃以上时,其活性逐渐下降,可能由于高温下蛋白稳定性降低或部分变性所致,这在嗜温植物酶中常见。PjUGT67的最适pH为7.0(图3B),在酸性(pH 5)和碱性(pH 9–10)条件下活性均显著下降。
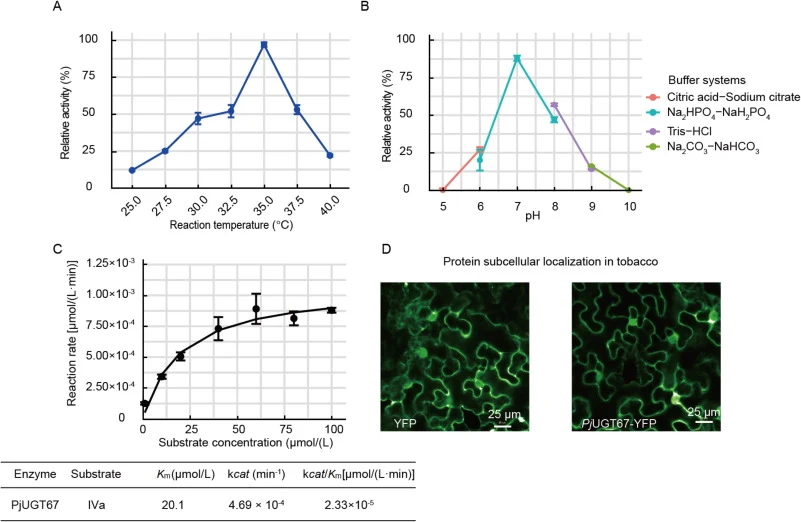
【数据】最适温度:35 ℃;最适pH:7.0;酸性条件:pH 5活性显著下降;碱性条件:pH 9–10活性显著下降;原文未详述:动力学参数具体数值(Km、Vmax、kcat)
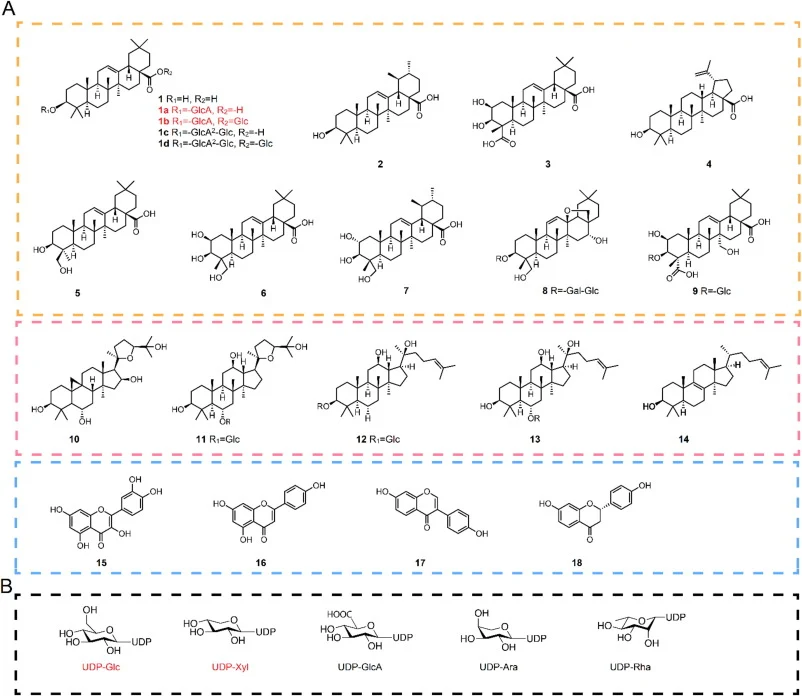
3.4 PjUGT67的底物宽泛性
(原文节选至此,后续结果内容未详述。)
【数据】原文未详述:本节具体实验数值
讨论与解读
本研究将PjUGT67鉴定为参与末端糖基化步骤的候选UDP-糖基转移酶,支持竹节参中RT1的糖基化路线假设。结合PjCSLM和PjC28UGT的功能验证,结果为从OA到CE、IVa、最终到RT1的连续糖基化步骤提供了生化证据。基于这些发现,通过整合OA生物合成、逐步糖基化和UDP-Xyl供给,建立了基于酵母的RT1从头生物合成系统。工程菌株RT1-02成功生产RT1,产量为17.34 mg/L,证明了微生物生产RT1的可行性。总体而言,该工作为所提出的RT1糖基化途径提供了生化支持,建立了微生物RT1生物合成的实用路线,并为未来OA型人参皂苷生物合成与生产研究提供了有用的酶学和工程资源。
编译者解读:该研究的亮点在于"酶学鉴定—途径串联—酵母重构"的闭环设计:以共表达分析加系统发育定位从79个候选中锁定PjUGT67,再用体外酶学与LC-MS碎裂谱确证木糖基化功能,最后把三个糖基化步骤与UDP-木糖供给模块一起装入酵母,17.34 mg/L的产量虽处实验室水平,但验证了稀有OA型皂苷异源合成的可行性。局限亦明显:PjUGT67的植物体内遗传验证尚未完成,且产量距工业化尚有数量级差距,后续需在供体供给通量与前体竞争分流上继续工程化改造。
参考来源
期刊:Chinese Herbal Medicines, 2026
DOI: 10.1016/j.chmed.2026.10.007
DOI: 10.1016/j.chmed.2026.10.007