来源:Development of a high-throughput proteome sample preparation workflow based on efficient protein extraction to empower rational design of yeast cell factories(Talanta)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
酵母细胞壁结构坚硬,是蛋白质组样品制备的"拦路虎"。该研究开发了IGL-H提取策略——离子液体C12Im-Cl、盐酸胍与醋酸锂三联溶剂配合热处理,可在10分钟内完成蛋白质提取,兼容多种酵母与不同生长阶段,并可接入液体处理工作站,1.5小时内完成高通量样品制备,定量重现性Pearson相关系数超过0.97。研究进一步将该流程用于探究不同氮源下C. utilis的蛋白质组动态,揭示碳流特异性分配的适应策略。
研究背景
酵母既是模式生物,也是微生物细胞工厂的核心底盘,支撑着代谢工程与合成生物学的进展。基于质谱的蛋白质组学已成为绘制蛋白表达图谱、指导代谢通路重排的有力手段。然而,质谱分析的可靠性取决于高效的蛋白质提取——这是酵母样品制备的关键步骤。
酵母细胞壁由共价连接的多糖与蛋白(甘露糖蛋白、β-葡聚糖和几丁质)构成,刚硬且动态调控,随物种、生长阶段和培养条件而变化,阻碍高效细胞裂解与蛋白释放。与此同时,设计-构建-测试-学习循环的快速迭代使酵母菌株文库呈指数级扩张,亟需既高效又兼容高通量流程的蛋白质提取策略。
传统酵母蛋白提取方法主要有三类。酶解法温和但成本高、耗时长,还可能引入外源蛋白酶污染。机械-物理破碎产量高,却依赖专用设备,不易自动化。溶剂法简单、不依赖设备,但往往需要长时间孵育或特殊仪器,样品通量和效率受限。该研究由此提出IGL-H策略,以溶剂组合加热处理实现快速提取,并适配自动化工作站。
研究方法
试剂与材料。 GdnHCl、SDS、尿素、三(2-羧乙基)膦(TCEP)、醋酸锂(LiOAc)、乙二胺四乙酸二钠二水合物(EDTA)、碘乙酰胺(IAA)、三(羟甲基)氨基甲烷(Tris)及蛋白酶抑制剂混合物均购自Sigma-Aldrich(美国圣路易斯,密苏里州)。1-十二烷基-3-甲基咪唑氯盐(C12Im-Cl)购自上海成捷化学(中国上海)。Bradford蛋白测定试剂盒购自碧云天(中国上海)。胰蛋白酶和Lys-C购自北京盛夏蛋白科学有限公司(中国北京)。乙腈(ACN,HPLC级)和甲醇(HPLC级)购自Merck(德国达姆施塔特)。去离子水经Milli-Q系统纯化(Millipore,美国米尔福德,马萨诸塞州)。相对分子质量(Mw)截留值为10,000 Da的Microcon过滤装置(10 K滤器)购自Sartorius AG(德国哥廷根)。mSPA材料按本课题组标准合成方案制备[28]。
【数据】试剂来源:Sigma-Aldrich、上海成捷化学、碧云天、北京盛夏蛋白、Merck、Sartorius AG;滤器截留分子量:10,000 Da;原文未详述各试剂具体批号与纯度
微生物菌株与培养条件。 用于方法建立与评价的S. cerevisiae BY4741、Yarrowia lipolytica po1f和C. utilis均分别在YPD培养基中培养。菌株来源为:S. cerevisiae BY4741由中国科学院深圳先进技术研究院惠赠,Y. lipolytica po1f由天津大学姚博士惠赠,C. utilis由中国科学院大连化学物理研究所曹博士惠赠。预培养在含2 mL培养基的15 mL管中、30 °C、220 rpm振荡进行。随后将预培养细胞接种至250 mL摇瓶,S. cerevisiae BY4741和C. utilis于30 °C、Y. lipolytica于28 °C,220 rpm培养。不同生长阶段的细胞经1500 × g离心5分钟收集,用冷PBS洗涤三次。细胞沉淀于−80 °C保存备用。
用于生物学应用的C. utilis菌株在深孔板中制备。预培养在24深孔板中以2.5 mL新鲜YPD培养基工作体积、30 °C、200 rpm过夜培养。实验培养时,将重悬细胞以起始OD600为0.1接种至MicroScreen HT 48孔平底板,总培养体积1 mL,使用基本培养基。基本培养基含1.72 g L−1 YNB、碳源(20 g L−1葡萄糖)和氮源(2.5 g L−1 (NH4)2SO4、3.8 g L−1 KNO3或1.1 g L−1尿素)。微孔板实验在MicroScreen HT微型生物反应器(中国格林)中于30 °C、800 rpm运行。每30分钟检测OD600nm绘制生长曲线,直至C. utilis细胞达到稳定期。不同生长阶段的C. utilis细胞用冷PBS缓冲液洗涤三次后收集。细胞沉淀于−80 °C保存备用。
【数据】培养基:YPD、基本培养基(1.72 g L−1 YNB);碳源:20 g L−1葡萄糖;氮源:2.5 g L−1 (NH4)2SO4、3.8 g L−1 KNO3、1.1 g L−1尿素;温度:30 °C(Y. lipolytica为28 °C);转速:220 rpm(深孔板200 rpm、微型生物反应器800 rpm);起始OD600:0.1;检测间隔:30 min;离心:1500 × g、5 min;保存温度:−80 °C
IGL-H策略的开发。 裂解条件筛选时,取S. cerevisiae菌株(约3 × 10⁷个细胞),分别采用五种裂解基质处理:纯10%(w/v)C12Im-Cl、纯6 M GdnHCl,以及两种离液剂按体积比1:2、1:1和2:1配制的三种混合液。所有基质均补充1%(v/v)蛋白酶抑制剂混合物和10 mM TCEP,每个细胞悬液在恒温振荡器上于95 °C加热20分钟。随后向裂解体系中加入不同浓度的LiOAc以确定最佳用量。取S. cerevisiae菌株(约3 × 10⁷个细胞)重悬于50 mM Tris-HCl基础缓冲液(pH 8.0)中,预混5%(w/v)C12Im-Cl、3 M GdnHCl、10 mM TCEP、1%(v/v)蛋白酶抑制剂混合物,并加入梯度浓度LiOAc(0.1、0.2、0.3、0.4 M)。所有混合液用恒温混匀仪于95 °C孵育20分钟。为优化热孵育时长,取S. cerevisiae菌株(约3 × 10⁷个细胞)重悬于50 mM Tris-HCl缓冲液(pH 8)配制的5%(w/v)C12Im-Cl、3 M GdnHCl、0.2 M LiOAc、10 mM TCEP和1%(v/v)蛋白酶抑制剂混合物中,在恒温振荡器上于95 °C分别加热5分钟、10分钟、15分钟或20分钟。IGL-H提取策略的可扩展性在7.5 × 10⁶至5.2 × 10⁷个细胞的S. cerevisiae细胞载量梯度上验证。所有菌株重悬于250 μL上述完全优化的裂解缓冲液中,随后在恒温振荡器上于95 °C加热10分钟。所有样品于4 °C、16,000×g离心20分钟。上清转移至新管,用Bradford蛋白测定试剂盒测定蛋白浓度。
【数据】细胞用量:约3 × 10⁷个细胞(可扩展性验证为7.5 × 10⁶–5.2 × 10⁷);C12Im-Cl:10%(w/v)纯液或5%(w/v);GdnHCl:6 M纯液或3 M;混合体积比:1:2、1:1、2:1;TCEP:10 mM;蛋白酶抑制剂:1%(v/v);LiOAc梯度:0.1、0.2、0.3、0.4 M;缓冲液:50 mM Tris-HCl、pH 8.0;加热:95 °C、5/10/15/20 min;离心:4 °C、16,000×g、20 min;裂解缓冲液体积:250 μL
蛋白质提取方案评估。 为评价不同蛋白提取方法,取不同生长阶段收获的S. cerevisiae菌株(约3 × 10⁷个细胞)作为模式生物,按以下四种方案分别处理:
1. IGL-H法:菌株重悬于200 μL裂解缓冲液(50 mM Tris-HCl、pH 8.0中含5%(w/v)C12Im-Cl、3 M GdnHCl、0.2 M LiOAc、10 mM TCEP和1%(v/v)蛋白酶抑制剂混合物),在恒温振荡器上于95 °C加热10分钟。
2. GdnHCl-H法:菌株重悬于200 μL由6 M GdnHCl和10 mM DTT组成的裂解缓冲液(50 mM Tris-HCl、pH 8.0),用恒温混匀仪于100 °C孵育10分钟。
3. NaOH/SDS-H法:菌株重悬于200 μL含0.1 M NaOH、2% SDS、50 mM EDTA和2% β-巯基乙醇的裂解缓冲液,在恒温振荡器上于90 °C加热10分钟。
4. Urea-G法:菌株重悬于200 μL裂解缓冲液(7 M尿素、50 mM NH4HCO3、1%(v/v)蛋白酶抑制剂混合物),在高速冷冻组织研磨仪(中国赛维尔)中用约150 mg、0.4–0.6 mm玻璃珠匀浆。匀浆程序包括10个循环,每循环以4.5 m/s研磨40秒,循环间冷却60秒。
所有样品于4 °C、16,000×g离心20分钟。上清转移至新管,用Bradford蛋白测定试剂盒测定蛋白浓度。
【数据】细胞用量:约3 × 10⁷;裂解缓冲液体积:200 μL;IGL-H:5%(w/v)C12Im-Cl、3 M GdnHCl、0.2 M LiOAc、10 mM TCEP、1%(v/v)蛋白酶抑制剂、50 mM Tris-HCl pH 8.0、95 °C、10 min;GdnHCl-H:6 M GdnHCl、10 mM DTT、50 mM Tris-HCl pH 8.0、100 °C、10 min;NaOH/SDS-H:0.1 M NaOH、2% SDS、50 mM EDTA、2% β-巯基乙醇、90 °C、10 min;Urea-G:7 M尿素、50 mM NH4HCO3、1%(v/v)蛋白酶抑制剂、约150 mg玻璃珠(0.4–0.6 mm)、4.5 m/s、40 s×10循环、循环间冷却60 s;离心:4 °C、16,000×g、20 min
FASP样品制备。 取S. cerevisiae菌株(约3 × 10⁷个细胞)经IGL-H和GdnHCl-H法提取蛋白,随后按既往报道的改良滤器辅助样品制备(FASP)方案酶解[29]。简述如下:IGL-H法所得蛋白在室温下用20 mM IAA避光烷基化30分钟。随后样品转移至过滤装置(分子截留量10,000 Da),用50 mM NH4HCO3离心洗涤(16,000 g、30分钟)。再用50 mM NH4HCO3洗涤三次后,按胰蛋白酶/蛋白比1:30(w/w)于37 °C酶解16小时,最终于16,000 g离心30分钟收集酶解肽段。对于Urea-G法所得蛋白提取物,样品先在含10 mM TCEP的7 M尿素中于95 °C变性还原10分钟,随后用20 mM IAA室温避光烷基化30分钟。处理后的样品转移至10 kDa分子截留量过滤单元,按上述流程处理。Y. lipolytica(约3 × 10⁷个细胞)和C. utilis(约3 × 10⁷个细胞)菌株用前述IGL-H和Urea-G方案提取,所有提取蛋白随后均按同一改良FASP流程处理。
【数据】细胞用量:约3 × 10⁷;IAA:20 mM、室温、避光30 min;滤器截留:10,000 Da;洗涤液:50 mM NH4HCO3;洗涤离心:16,000 g、30 min;酶解:胰蛋白酶/蛋白1:30(w/w)、37 °C、16 h;肽段收集离心:16,000 g、30 min;Urea-G提取物变性:7 M尿素+10 mM TCEP、95 °C、10 min
IGL-H提取与mSPA样品处理整合流程。 取S. cerevisiae菌株(约3 × 10⁷个细胞)经IGL-H法提取,蛋白用mSPA材料按适当修改的方案处理[27]。手动样品制备时,将50 mM NH4HCO3缓冲液中的mSPA颗粒(1 mg、25 μL)加入溶液捕获蛋白。混合物依次在恒温混匀仪上于95 °C孵育10分钟,再于40 °C孵育5分钟。弃去上清后,磁珠用200 μL 50%(v/v)甲醇洗涤两次……
【数据】细胞用量:约3 × 10⁷;mSPA用量:1 mg、25 μL(50 mM NH4HCO3);孵育:95 °C、10 min,随后40 °C、5 min;洗涤液:200 μL 50%(v/v)甲醇、洗两次;原文节选在此处中断,后续步骤原文未详述
研究结果
3.1 酵母裂解与样品制备的理性设计
酵母细胞工厂的理性设计需要对工程菌株进行全面的蛋白质组分析。然而,刚硬的酵母细胞壁对高效细胞裂解和蛋白提取构成一定挑战。酵母菌株文库的快速扩张更要求提取方法快速、简便且与质谱兼容。为此,研究者引入由离子液体、GdnHCl和LiOAc组成的溶剂提取体系。本研究选择C12Im-Cl作为离子液体组分,推测其具有破坏酵母细胞壁的潜力[23,32]:其阴离子部分可能打破细胞壁多糖内部的分子间氢键,阳离子结构域则与膜蛋白疏水跨膜段发生疏水相互作用,实现温和的蛋白增溶。GdnHCl破坏分子内氢键,进一步提高难溶蛋白的提取效率。LiOAc已被证实可削弱细胞壁刚性[33],并可能通过阳离子竞争置换提高膜通透性、促进胞内蛋白释放。IGL提取体系各组分的作用位点见图1A。如图1B所示,酵母细胞收获、PBS洗涤后直接与IGL和TCEP混合,蛋白提取与变性在热处理下一步完成。所得蛋白裂解液可与本课题组此前开发的mSPA材料整合,实现酵母蛋白质组样品的完整制备,随后进行LC-MS/MS分析。总体而言,该方法具有多项优势:提取效率提高、兼容不同生长阶段与多种酵母、避免质谱不兼容试剂、无需专用裂解仪器,从而确保无缝适配标准液体处理工作站。该流程为大规模酵母蛋白质组分析提供了标准化、高效率的解决方案,推动代谢工程与合成生物学中酵母细胞工厂的理性设计。
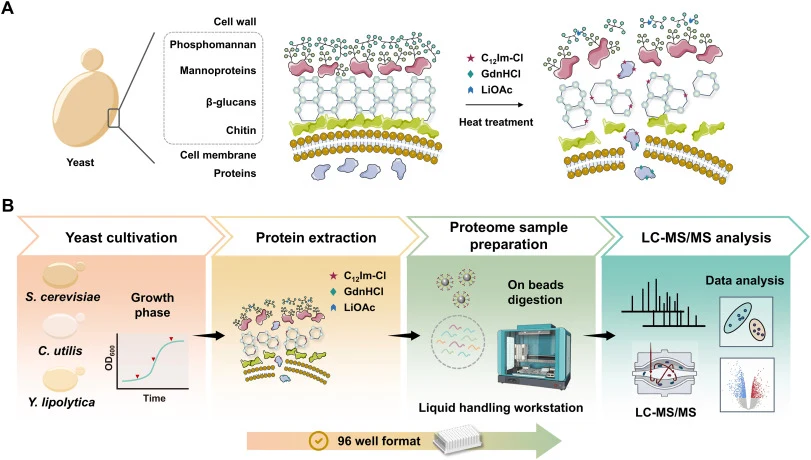
【数据】提取体系:C12Im-Cl(离子液体)+ GdnHCl + LiOAc + TCEP;原文未详述各组分在提取体系中的具体终浓度(该段为设计思路,具体参数见3.2)
3.2 IGL-H提取方法的建立与优化
代谢调控与生长阶段动态密切相关,酵母细胞壁结构在整个生长周期中经历显著重塑。细胞壁厚度在稳定期(SP)显著增加,对蛋白提取方法的裂解效率提出更高要求[34–36]。因此,研究者以稳定期S. cerevisiae细胞建立方法,以最大化提取严苛度。首先系统评价离子液体(C12Im-Cl)与GdnHCl单独使用及不同体积比组合的性能。如图2A所示,C12Im-Cl与GdnHCl以1:1(v/v)比例时蛋白产量最高,较单用C12Im-Cl提高33%(96 μg对72 μg),较单用GdnHCl提高45%(96 μg对66 μg)。为进一步提升提取效率,考察了补充LiOAc的效果。图2B显示LiOAc添加有效,蛋白提取产量在0.2 mol/L时达到平台。这些结果表明组合溶剂体系可能产生显著协同效应,促进细胞壁的强力破坏与蛋白提取效率的提升。为兼顾提取效率与高通量处理需求,评价了95 °C加热时长的影响。如图2C所示,加热时间从5分钟延长至10分钟时总蛋白产量显著增加,超过10分钟后无明显变化。这表明IGL体系可实现快速蛋白提取,满足高通量流程要求。IGL-H方法的可扩展性进一步用7.5 × 10⁶至5.2 × 10⁷个细胞的系列调整细胞量验证。如图2D所示,初始细胞数与总蛋白产量之间呈强线性相关(R2 = 0.992),表明该方法保持稳定、可重现的提取性能。
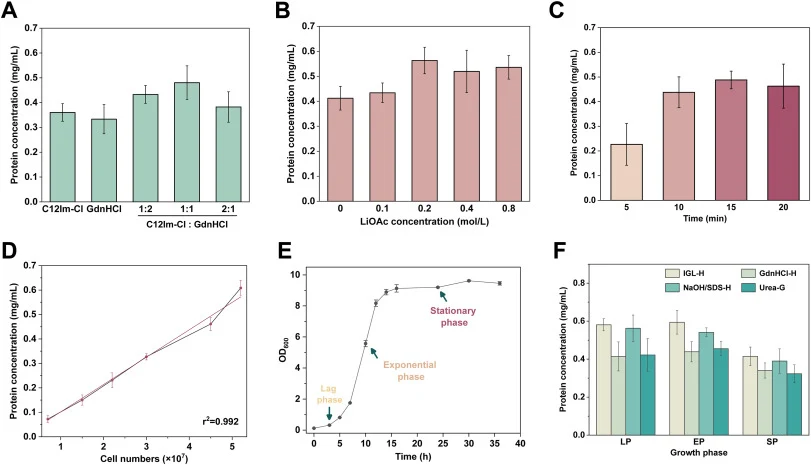
【数据】C12Im-Cl:GdnHCl体积比:1:2、1:1、2:1(最优1:1);蛋白产量:1:1组合96 μg、单C12Im-Cl 72 μg、单GdnHCl 66 μg;提升幅度:33%(vs C12Im-Cl)、45%(vs GdnHCl);LiOAc平台浓度:0.2 mol/L;加热:95 °C、5–20 min(10 min后无显著变化);细胞量范围:7.5 × 10⁶–5.2 × 10⁷;线性相关:R2 = 0.992
随后,研究者将IGL-H与三种已报道的酵母蛋白提取策略系统比较,包括常规尿素玻璃珠裂解(Urea-G)、盐酸胍加热(GdnHCl-H)和碱性SDS加热(NaOH/SDS-H),以评价其性能与生长阶段适应性。取滞后 phase(LP)、指数期(EP)和稳定期(SP)收获的酵母细胞平行验证(图2E)。在固定初始细胞投入3 × 10⁷个细胞的条件下,IGL-H方法在所有生长阶段均表现稳定提取效率。具体而言,IGL-H在LP和EP阶段蛋白产量提高32%(145 μg对110 μg),在SP阶段提高28%(82 μg对64 μg)(图2F)。为进一步表征IGL-H的蛋白质组性能,纳入两种质谱兼容的常规方法进行对比蛋白质组分析。如图3A所示,IGL-H与Urea-G的蛋白鉴定深度均显著优于GdnHCl-H,提示单一盐酸胍热处理不足以在不同生长阶段完全破坏酵母细胞壁。Venn分析显示三种方法仅共享49%的鉴定蛋白,表明各方案存在不同提取偏好。随后对各单位方法独有定量蛋白进行GO细胞组分(CC)富集分析。富集分析显示,IGL-H特有蛋白富集于整合膜运输组分,包括SNARE复合体和内质网-高尔基体运输囊泡膜(图3C–D、S1)。这一优势特性可能归因于IGL体系中的离子液体组分——它通过与跨膜结构域发生疏水相互作用,促进膜运输蛋白如BET1、SAR1和DID2的释放(图3E)。通过计算不同生长阶段样品的变异系数(CV)进一步评估各方法的定量重现性。IGL-H方法平均CV最低,为9.9%,优于GdnHCl-H(10.3%)和Urea-G(12.2%)(图3F),可实现不依赖酵母生长阶段的稳定蛋白提取与稳健定量分析。
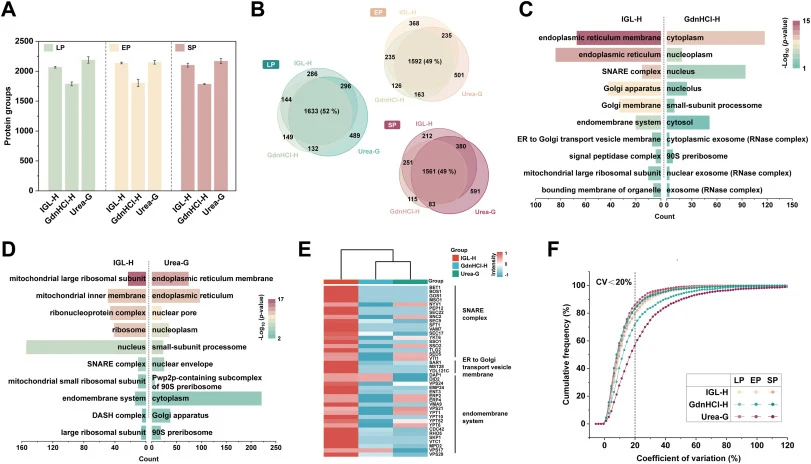
【数据】对比方法:Urea-G、GdnHCl-H、NaOH/SDS-H;细胞投入:3 × 107;LP/EP阶段产量:IGL-H 145 μg vs 110 μg(+32%);SP阶段:82 μg vs 64 μg(+28%);三法共享蛋白比例:49%;平均CV:IGL-H 9.9%、GdnHCl-H 10.3%、Urea-G 12.2%;特有蛋白富集:SNARE复合体、ER-to-Golgi运输囊泡膜;代表蛋白:BET1、SAR1、DID2
总体来看,GdnHCl-H始终蛋白产量最低、蛋白质组覆盖最窄,表明仅靠热辅助变性不足以破坏刚硬的酵母细胞壁。玻璃珠机械破碎(Urea-G)是提取性能的传统基准,高能机械剪切可高效破裂细胞壁和胞内细胞器膜。但这一优势伴随通量与自动化的固有局限:需要专用研磨设备,并带来样品转移损失和样品间变异。IGL-H策略提供了平衡的替代方案,总蛋白产量和蛋白质组覆盖与标准方法相当或更优。它易于与标准液体处理工作站整合,并保持与下游质谱的兼容性,从而满足高通量质谱蛋白质组分析的技术要求。
【数据】GdnHCl-H:蛋白产量最低、覆盖最窄;Urea-G:需专用研磨设备、存在样品转移损失与样品间变异;IGL-H:产量与覆盖相当或更优、兼容液体处理工作站与下游质谱;原文未详述具体对比数值(该段为归纳性论述)
3.3 IGL-H方法的普适性与重现性
为进一步评价IGL-H提取方法在不同酵母物种间的普适性,研究者以两种工业重要的微生物细胞工厂进行了系统比较……
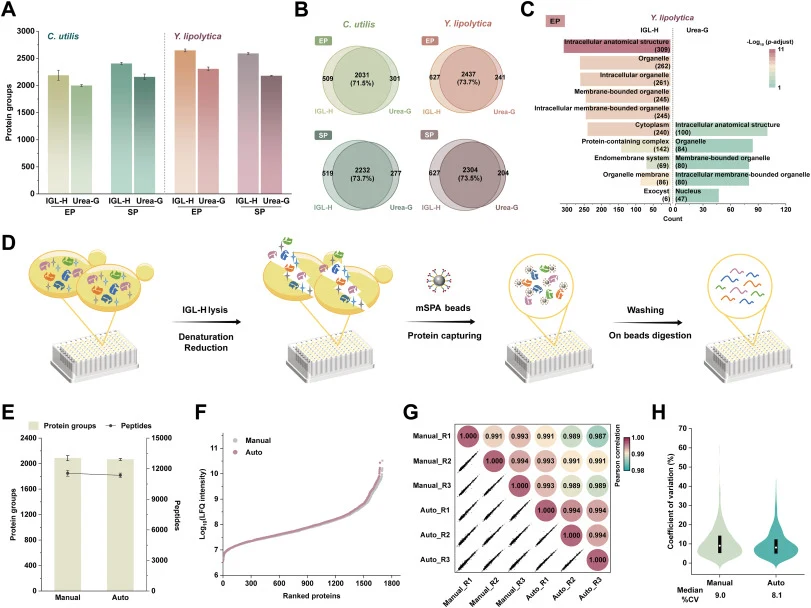
【数据】原文节选在此处中断,具体物种对比数值原文未详述
讨论与解读
研究建立了离子液体-盐酸胍-醋酸锂热辅助法(IGL-H)用于酵母菌株蛋白提取。该方法在不同酵母物种和生长阶段表现稳定、普适,蛋白产量优于经典玻璃珠研磨法,蛋白质组覆盖相当或更优。结合mSPA磁珠与液体处理工作站,可在1.5小时内完成整合式蛋白提取与磁珠上酶解,支持高通量样品制备且定量一致性可靠(Pearson's r > 0.97)。将该流程用于研究C. utilis氮源适应,揭示了一种涉及碳流特异性分配的调控策略。IGL-H为酵母蛋白质组样品制备提供了简单、快速、质谱兼容的策略,有效破解了刚性酵母细胞壁对蛋白提取的阻碍。未来对IGL配方的优化有望将适用性拓展至其他难裂解微生物;该方法与自动化菌株培养和数据分析流程的整合,可能推动构建全流程端到端蛋白质组平台,实现高效代谢监测,加速合成生物学的设计-构建-测试-学习循环。
编译者解读: 该工作的聪明之处在于"做减法"——用溶剂化学替代机械破碎,把裂解、变性合并为一步热处理,从源头消除了玻璃珠研磨对通量和自动化的桎梏。离子液体对膜蛋白的增溶偏好是意外收获,使IGL-H在膜运输蛋白覆盖上反超基准方法。局限也明显:1.5小时虽快,仍依赖离液剂与高温,对热敏蛋白的偏倚尚未评估;节选未展示C. utilis氮源实验的完整数据,碳流分配结论的证据链有待全文检验。对合成生物学而言,这套流程真正的价值是让蛋白质组学从"少量精测"走向"菌株文库批量筛查"。
参考来源
期刊:Talanta, 2027
DOI: 10.1016/j.talanta.2026.130738
DOI: 10.1016/j.talanta.2026.130738