来源:Isolation and characterization of a lignin-degrading Escherichia sp. strain SFD3 and its potential for lignocellulosic biomass valorization(Current Research in Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
木质素是木质纤维素生物质中含量丰富却长期被低值燃烧处理的组分。本研究从伊朗马赞德兰省森林土壤中分离到一株能以木质素为唯一碳源生长的细菌SFD3,经16S rRNA基因测序归入埃希氏菌属(Escherichia sp. SFD3)。该菌株携带漆酶样多铜氧化酶CueO基因,对藜芦醇、ABTS和2,6-DMP的最高氧化活性分别达340、4850和70 U L⁻¹,8天木质素去除率为44%。埃希氏菌属通常不被认为具有木质素降解能力,这一发现为木质纤维素生物炼制提供了新的菌株资源。
研究背景
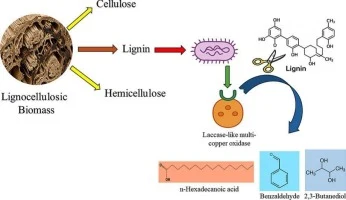
木质纤维素生物质是可持续生产燃料和增值化学品的丰富且廉价的可再生资源。这类生物质很大一部分来自工业作物和林业残余物,由木质素、纤维素和半纤维素组成,其中纤维素和半纤维素是主要的可发酵组分。经过适当处理,纤维素和半纤维素可作为碳源生产乙醇、丁醇、黄原胶、酶和有机酸等多种化合物。相比之下,木质素目前利用不足,主要被燃烧用于能量回收。然而,木质素作为生产多种增值化学品的原料具有巨大潜力。
工业过程中使用的大多数微生物不具备有效降解木质素并将其作为底物利用所需的脱木质素酶。因此,木质纤维素生物质在发酵过程中常留下大量未利用的木质素。例如,在生物炼制厂中每生产1 kg基于木质纤维素的乙醇,可产生近0.5–1.5 kg木质素。因此,木质纤维素生物炼制厂的经济和环境可行性关键取决于木质素的高效利用。本研究旨在从土壤中分离具有木质素降解能力的细菌,并对其降解特性进行表征。
研究方法
2.1 化学品
本研究使用的所有化学品,包括纯化硫酸盐木质素(分子量:约10,000)、3,4-二甲氧基苄醇(藜芦醇)、2,6-二甲氧基苯酚(2,6-DMP)(Sigma Aldrich,美国)和3-乙基苯并噻唑啉-6-磺酸(ABTS)(Molekula,英国),均为分析纯。
【数据】试剂:纯化硫酸盐木质素(分子量约10,000)、藜芦醇、2,6-DMP、ABTS;纯度:分析纯;供应商:Sigma Aldrich(美国)、Molekula(英国);原文未详述其他参数
2.2 采样与木质素降解细菌的分离
土壤样品采集自伊朗马赞德兰省努尔和拉姆萨尔森林。所选采样点被老树覆盖,预期微生物的木质素降解活性较高。土壤样品置于塑料袋中,在运往实验室途中喷水数次以模拟原始环境条件。将10 g土壤样品加入50 mL胰蛋白酶大豆肉汤(TSB)培养基中,于30 °C、170 rpm培养。24 h后,将培养液梯度稀释至10⁻⁵,每个稀释度取0.1 mL涂布于矿物盐培养基(MSM)上。MSM培养基组成为(g L⁻¹):NaCl(0.5)、MgSO₄(0.5)、K₂HPO₄(1.0)、(NH₄)₂SO₄(2.0)、碱木质素(5.0)、琼脂(17.0),pH调至7.0。为分离具有木质素降解能力的产漆酶细菌,培养基中添加0.1 g L⁻¹苯胺蓝作为漆酶活性指示剂。于30 °C培养4天后评估平板上菌落周围苯胺蓝的脱色情况,选取周围形成较大透明圈的菌落进行进一步研究。LB琼脂平板中还添加亚甲蓝(0.25 g L⁻¹)作为过氧化物酶活性指示剂。于30 °C培养2天后分析菌落周围的脱色圈,具有脱色圈的菌落被认为具有过氧化物酶活性。选取在亚甲蓝和苯胺蓝上均显示脱色圈的30株分离株进行进一步评估。
【数据】土壤样品:10 g;TSB培养基:50 mL;培养温度:30 °C;转速:170 rpm;培养时间:24 h;稀释度:10⁻⁵;涂布量:0.1 mL;MSM组分:NaCl 0.5 g L⁻¹、MgSO₄ 0.5 g L⁻¹、K₂HPO₄ 1.0 g L⁻¹、(NH₄)₂SO₄ 2.0 g L⁻¹、碱木质素 5.0 g L⁻¹、琼脂 17.0 g L⁻¹;pH:7.0;苯胺蓝:0.1 g L⁻¹;苯胺蓝培养时间:4天;亚甲蓝:0.25 g L⁻¹;亚甲蓝培养时间:2天;筛选株数:30株
2.3 分离株的鉴定
为鉴定分离株,将其分别接种于50 mL TSB中,于30 °C、170 rpm摇床培养。24 h后取2 mL样品用于DNA提取,使用27F(5′-AGAGTTTGAT CMTGGCTCAG−3′)和1492R(5′-CGGTTACCTTGTTACGACTT−3′)通用引物通过聚合酶链反应(PCR)扩增16S rRNA基因。所得序列使用美国国家生物技术信息中心(NCBI)网站提供的BLAST工具分析。基于部分16S rRNA基因序列进行系统发育分析。使用京都大学生物信息学中心提供的ClustalW网络服务器进行多序列比对。使用RAxML中实现的最大似然(ML)法进行系统发育重建,采用1,000次自举重复评估分支支持率。仅在树节点上显示等于或大于60%的自举值。系统发育树包括分离株SFD3的序列(登录号PQ368848)以及埃希氏菌属密切 related 成员的代表性模式菌株,包括E. coli 11775T(X80725)、E. fergusonii ATCC 35469T(MW012853)、E. albertii strain Albert 19982T(NR_025569)、E. marmotae strain HT073016T(NR_1364721)和E. ruysiae OPT1704T(PP318615)。还纳入肠杆菌科其他相关分类群进行比较分析,包括Shigella dysenteriae ATCC 13313T(NR_026332)、Shigella flexneri ATCC 29903T(NR_026331)、Salmonella enterica ATCC 13311(NR_119108)、Citrobacter freundii ATCC 8090T(PQ481719)、Enterobacter cloacae ATCC 13047T(NR_102794)、Klebsiella pneumoniae ATCC 13883T(NR_114506)和Serratia marcescens ATCC 13880T(PP095668)。以Pseudomonas aeruginosa ATCC 10145T(NR_114471)作为外群为系统发育树定根。
【数据】TSB体积:50 mL;培养温度:30 °C;转速:170 rpm;培养时间:24 h;DNA提取样品量:2 mL;引物:27F、1492R;自举重复:1,000次;自举值显示阈值:≥60%;分离株登录号:PQ368848;参考菌株登录号:X80725、MW012853、NR_025569、NR_1364721、PP318615、NR_026332、NR_026331、NR_119108、PQ481719、NR_102794、NR_114506、PP095668;外群登录号:NR_114471
2.4 生长曲线
在含5 g L⁻¹木质素的100 mL MSM培养基中,于锥形瓶内评估分离株和标准菌株(E. coli ATCC 25922)的生长曲线。接种后,培养物于30 °C、170 rpm摇床培养。通过测量600 nm光密度(OD₆₀₀)监测细菌生长。
【数据】MSM体积:100 mL;木质素浓度:5 g L⁻¹;温度:30 °C;转速:170 rpm;检测波长:600 nm;菌株:SFD3、E. coli ATCC 25922
2.5 多铜氧化酶(CueO基因)的检测
从NCBI数据库检索不同E. coli的CueO基因序列作为模板。使用NCBI比对工具对这些模板进行比对,以评估序列相似性并识别保守区域。确定目标序列长度后,将共有区域提交至Primer3平台进行引物设计。所得候选引物随后使用NCBI提供的引物设计工具Primer-BLAST进行评估和验证。然而,Primer-BLAST结果显示Primer3设计的引物缺乏足够特异性,可能退火至多个非靶区域。因此,选择Primer-BLAST建议的引物进行进一步分析。所选正向和反向引物长度均为20个核苷酸,分别命名为ECF(3′-ACAGGAAGTACCGGGTGAAGTCG−5′)和ECR(3′-AAGCGCAAACATCGGCTTGTTCA−5′)。
【数据】引物长度:20个核苷酸;正向引物:ECF(3′-ACAGGAAGTACCGGGTGAAGTCG−5′);反向引物:ECR(3′-AAGCGCAAACATCGGCTTGTTCA−5′);设计平台:Primer3、Primer-BLAST;原文未详述PCR参数
2.6 CueO的同源建模
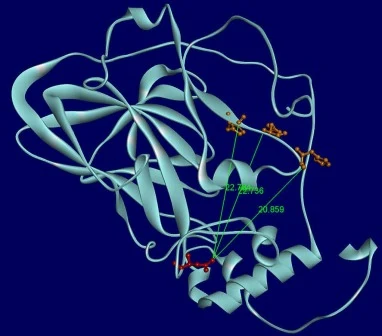
使用SWISS-MODEL服务器生成Escherichia sp. SFD3的CueO蛋白三维同源模型。选择E. coli K12多铜氧化酶CueO的晶体结构(SWISS-MODEL模板:P36649.1.A)作为建模模板,因其与SFD3具有高序列相似性。使用SWISS-MODEL工作区进行结构可视化及取代残基与保守催化组氨酸残基之间距离的测量。使用SWISS-MODEL提供的全局模型质量估计(GMQE)评分评估模型质量。生成的模型随后用于评估取代残基与酶催化铜结合中心之间的空间关系。
【数据】模板:P36649.1.A(E. coli K12 CueO晶体结构);建模服务器:SWISS-MODEL;质量评估:GMQE评分;原文未详述具体GMQE数值
2.7 酶活性测定
通过测量ABTS、藜芦醇和2,6-DMP的氧化来测定CueO活性,这些模型底物分别常用于评估漆酶、木质素过氧化物酶(LiP)和锰过氧化物酶(MnP)。这些酶是木质素降解的主要酶类,因此观察CueO对上述底物的类似作用可指示其对木质素结构的影响。氧化测量通过记录特定波长下的OD进行(Cary 100,Agilent Technologies,美国圣克拉拉)。为测量酶活性,将100 mL MSM培养基接种分离株,于170 rpm、30 °C摇床培养10天。每天取3 mL培养基分析酶活性。收集的样品于8,000 × g、4 °C离心8 min,含粗酶的上清液转移至新的2 mL Eppendorf管中进行进一步研究。一个酶活性单位(U)定义为每分钟催化生成1 μmol产物的酶量。需注意,酶活性使用粗培养上清液测定,因此报告值代表表观活性,反映培养物的整体胞外氧化能力,而非纯化酶的动力学性质。
【数据】MSM体积:100 mL;转速:170 rpm;温度:30 °C;培养时间:10天;取样量:3 mL/天;离心条件:8,000 × g、4 °C、8 min;上清液体积:2 mL;酶活单位定义:每分钟催化生成1 μmol产物;底物:ABTS、藜芦醇、2,6-DMP;仪器:Cary 100(Agilent Technologies)
2.7.1 藜芦醇的氧化
评估3,4-二甲氧基苄醇(藜芦醇)作为CueO底物的氧化。CueO酶催化藜芦醇氧化为藜芦醛可通过测量310 nm处的OD检测。反应体系(原文此处节选中断,后续步骤未详述)。
【数据】底物:藜芦醇;检测波长:310 nm;产物:藜芦醛;原文未详述反应体系其余参数
研究结果
3.1 降解菌株的分离与鉴定
其中一株分离株命名为SFD3,能够在以木质素为唯一碳源的MSM培养基中生长。此外,如图1(A、B)所示,该分离株能有效使LB培养基中的亚甲蓝和MSM培养基中的苯胺蓝脱色。
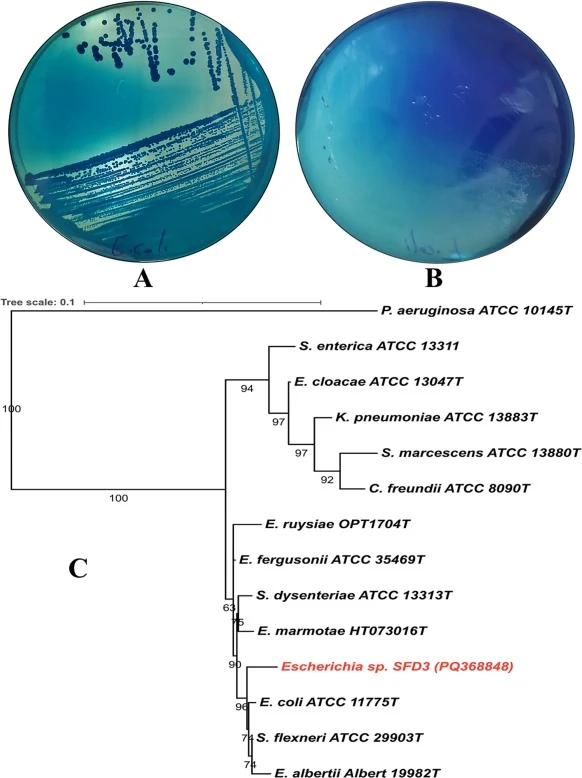
16S rRNA序列的BLAST分析显示,菌株SFD3与E. coli strain EF7-18–58相似性为98.46%,与Escherichia fergusonii相似性为98.66%。SFD3分离株的16S rRNA基因序列以登录号PQ368848保藏于GenBank。基于16S rRNA基因序列进行系统发育分析以确定分离株SFD3的分类地位。使用RAxML以1,000次自举重复构建最大似然树(图1C)。分析包括密切 related 埃希氏菌种的代表性模式菌株以及肠杆菌科选定的相关分类群。所得系统发育树清楚地将分离株SFD3置于埃希氏菌进化支内,并明显将其与邻近属及外群P. aeruginosa分开。分离株SFD3与埃希氏菌属成员紧密聚类,特别是与E. coli、E. fergusonii、E. albertii、E. marmotae和E. ruysiae,表明与该属有强系统发育关联。然而,SFD3未与任何单一参考种形成独特且支持良好的聚类。相反,它位于密切相关的埃希氏菌分类群之间,反映与多个属成员的共享进化关系,而非与特定种的明确亲缘关系。尽管与这些分类群关系密切,SFD3未与任何单一参考种形成独特且强支持的单系聚类。相反,它位于几个密切相关的埃希氏菌分类群之间,反映该属内高度的序列保守性。然而,仅16S rRNA基因序列提供的系统发育分辨率不足以进行确定的种级归属。因此,尽管分离株SFD3与E. coli及相关埃希氏菌种具有高序列相似性,现有分子证据仅支持将其分类为Escherichia sp. SFD3。需要更全面的基因组方法,如全基因组测序(WGS)、平均核苷酸一致性(ANI)、数字DNA–DNA杂交(dDDH)或多位点序列分型(MLST),才能进行精确的种级鉴定。总体而言,序列相似性分析和系统发育重建一致表明分离株SFD3属于埃希氏菌属,支持其保守命名为Escherichia sp. SFD3。
为提供额外的表型支持,将菌落培养于伊红美蓝(EMB)琼脂上。埃希氏菌属成员可根据乳糖发酵进行区分,强乳糖发酵者特别是E. coli可在EMB琼脂上产生具有特征性金属绿色光泽的菌落。分离株SFD3在EMB上呈现亮绿色菌落,与乳糖发酵埃希氏菌株一致,尽管该性状具有菌株依赖性。多项研究调查了工程化E. coli菌株用于木质素解聚。Clarkson等指出E. coli不能以天然形式降解芳香物质。因此,将Pseudomonas putida KT2440中与芳香化合物降解途径相关的9个基因添加到E. coli基因组中,以实现原儿茶酸(木质素单体模型)的降解。另一项研究中,将Sphingomonas paucimobilis SKY-6的香草醛降解途径基因(LigV和LigM)与原儿茶酸脱羧酶基因(aroY)在工程化E. coli菌株中共表达,以将木质素衍生的香草醛完全转化为儿茶酚。然而,据我们所知,描述具有固有木质素降解能力的天然埃希氏菌种的报道仍然有限。
【数据】16S rRNA相似性:与E. coli EF7-18–58为98.46%,与E. fergusonii为98.66%;登录号:PQ368848;自举重复:1,000次;自举值显示阈值:≥60%;EMB菌落特征:亮绿色;工程化E. coli引入基因数:9个(P. putida KT2440芳香降解途径基因);共表达基因:LigV、LigM、aroY
3.2 分离株与对照菌株的生长曲线
在以木质素为唯一碳源的MSM培养基中监测分离株和对照菌株(E. coli ATCC 25922)的生长曲线。菌株SFD3在MSM培养基中表现出可测量的生长,最大OD₆₀₀达0.108(图2A),而对照菌株在相同条件下仅达0.037。SFD3较对照菌株更高的生长表明SFD3能够利用木质素衍生化合物作为碳源。此外,培养8天后进行的重量分析表明,菌株SFD3的木质素去除率显著高于对照菌株(图2B),支持该分离株在测试条件下转化木质素的能力。
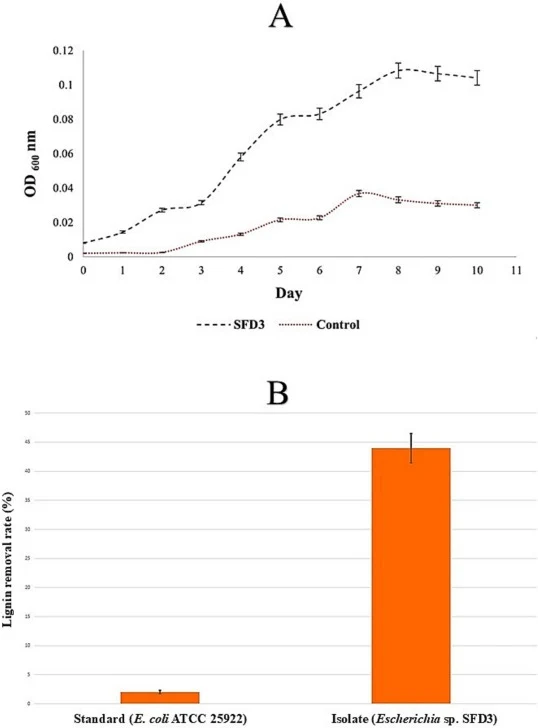
SFD3的生长曲线不遵循营养丰富培养基中通常观察到的经典S形模式。如图2A所示,SFD3在以木质素为唯一碳源的MSM培养基中的生长表现出多个滞后期,表面上类似二次生长,但机制不同。由于木质素是由多个酚类亚基和连接键组成的异质聚合物,细菌必须顺序表达木质素降解酶以解聚不同组分。这种对复杂底物的逐步适应可导致多个表观滞后期,反映暂时的代谢调整而非不同碳源的顺序消耗。我们还确认,不含任何碳源的MSM培养基不支持生长,验证了观察到的SFD3生物量增加确实源于木质素利用,而非残留溶剂或杂质。培养8天后,SFD3的OD₆₀₀下降。这种下降可能归因于木质素降解导致抑制性酚类化合物的积累。低分子量酚类化合物,如香草醛、丁香醛、对香豆酸、阿魏酸和4-羟基苯甲酸,通常在木质素分解过程中产生,已知通过破坏细胞膜完整性和细胞代谢抑制微生物生长。这种破坏随后对细胞造成严重后果,如ATP减少、蛋白质功能受损、DNA损伤、酶变性和凋亡。
【数据】SFD3最大OD₆₀₀:0.108;对照菌株最大OD₆₀₀:0.037;培养时间:8天;木质素去除:SFD3显著高于对照(图2B,原文未给出具体百分比数值于本节);碳源:木质素(唯一碳源);抑制性酚类:香草醛、丁香醛、对香豆酸、阿魏酸、4-羟基苯甲酸
3.3 漆酶样多铜氧化酶(LMCOs)的检测
漆酶是负责多种底物(如酚类化合物)单电子氧化的多铜氧化酶。同样,漆酶样多铜氧化酶(LMCOs)包括一组催化多种底物、导致氧气还原为水的酶。尽管许多底物可被LMCOs和漆酶共同氧化,但将其归类为漆酶存在不确定性。因此,LMCO广泛用于指代这些酶。许多LMCOs已从不同细菌中分离和表征,如Bacillus licheniformis、E. coli和Streptomyces sviceus。这些酶在不同细菌中的功能可能不同。例如,来自B. subtilis的LMCOs通过在孢子中产生色素提供对紫外线和H₂O₂的保护。此外,CueO酶已被用于纺织工业废水的染料脱色。在E. coli中,该酶负责调节细胞内Cu的量,其活性位点被富含甲硫氨酸的螺旋结构屏蔽。CueO基因的表达受CueR调控(原文此处节选中断,后续内容未详述)。
【数据】酶类:漆酶样多铜氧化酶(LMCOs)、CueO;已知来源菌:B. licheniformis、E. coli、S. sviceus、B. subtilis;CueO功能:细胞内Cu调节、染料脱色;调控因子:CueR;原文未详述本节具体活性数值
3.4 CueO对模型底物的氧化活性
(原文节选未提供本节完整文字,以下数据依据摘要及图表清单整理)
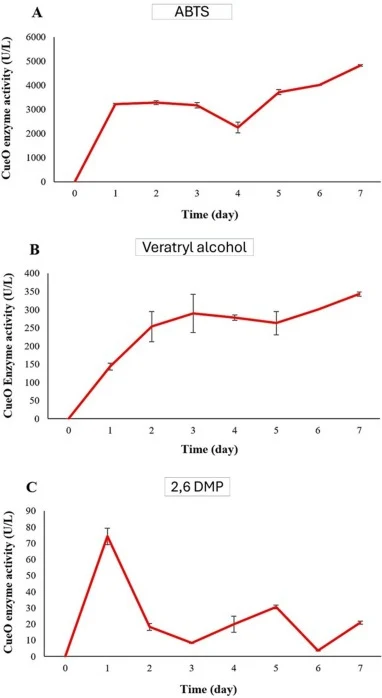
CueO对3,4-二甲氧基苄醇(藜芦醇)、ABTS和2,6-DMP的最高氧化活性分别为340 U L⁻¹、4850 U L⁻¹和70 U L⁻¹。
【数据】藜芦醇氧化活性:340 U L⁻¹;ABTS氧化活性:4850 U L⁻¹;2,6-DMP氧化活性:70 U L⁻¹;酶活单位定义:每分钟催化生成1 μmol产物
3.5 木质素转化的分析表征
(原文节选未提供本节完整文字,以下内容依据摘要及图表清单整理)
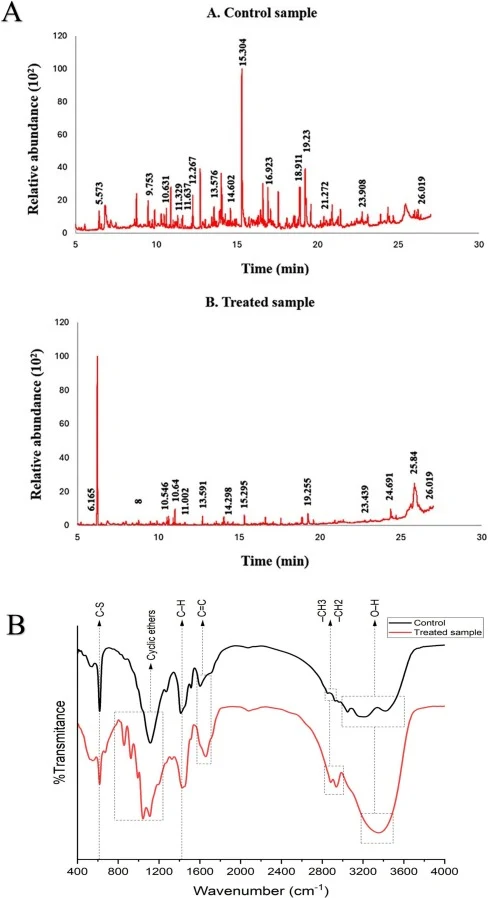
通过GC–MS和FT-IR评估并鉴定了菌株SFD3在脱木质素过程中产生的低分子量化合物,包括不同烷烃和酚类。菌株SFD3培养8天后的木质素去除率为44%。
【数据】木质素去除率:44%;培养时间:8天;分析产物:低分子量烷烃和酚类;分析方法:GC–MS、FT-IR
讨论与解读
本研究从土壤中分离到一株木质素降解菌Escherichia sp. SFD3,为木质纤维素生物质的生物增值提供了有前景的途径。CueO基因的鉴定连同观察到的氧化酶活性、木质素去除和木质素转化产物,表明该分离株具有强效的木质素分解能力。这一发现凸显了探索埃希氏菌种作为生物炼制和富含木质素废水可持续处理中潜在生物催化剂的重要机会,为工程化微生物平台提供了有价值的替代或补充。
编译者解读:该研究的亮点在于从"非典型"宿主——埃希氏菌属中挖掘到天然木质素降解能力,打破了该属不降解木质素的固有认知。方法上以染料脱色指示剂快速初筛、CueO基因保守区引物验证、同源建模定位关键残基,路线简洁实用。局限也明显:种级鉴定仅靠16S rRNA不足,酶活均为粗酶液表观值,木质素去除率44%仍偏低,且未做全基因组或转录组层面的降解机制解析。若能将CueO在E. coli中异源高表达并耦合下游芳香代谢通路,其生物炼制价值会更具说服力。
参考来源
期刊:Current Research in Biotechnology, 2026
DOI: 10.1016/j.crbiot.2026.100396
DOI: 10.1016/j.crbiot.2026.100396