来源:Development of isopentenol utilization pathway based on cell-free metabolic engineering and its application in multienzyme cascades synthesis(Journal of Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
天然异戊二烯类化合物的微生物合成常受代谢平衡复杂、多基因调控繁琐、中间产物毒性及反馈抑制等困扰。本研究将异戊烯醇利用途径(IUP)与无细胞代谢工程(CFME)相结合,用七种粗酶裂解液在体外搭建番茄红素合成级联,摆脱了对昂贵IPP/DMAPP底物的依赖,并经系统优化使无细胞体系番茄红素产量达128.04 mg/L,体内验证进一步达270.0 mg/L。
研究背景
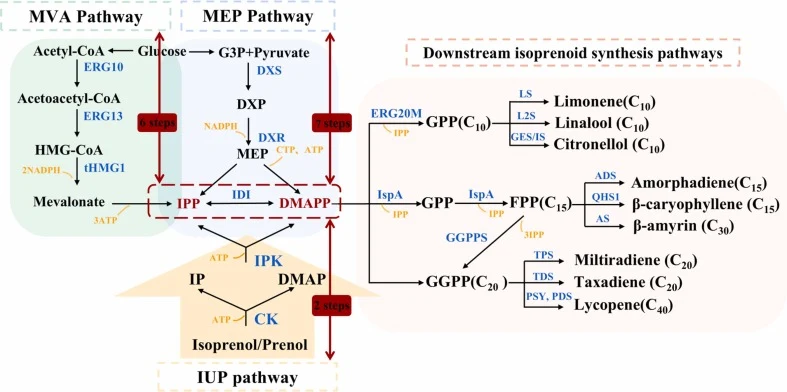
异戊二烯类(萜类)化合物结构多样、功能广泛,几乎存在于所有生物中。植物是其主要天然来源,可合成单萜、二萜、三萜和四萜等多种类型;细菌和真菌同样能产出抗生素、色素等丰富萜类。这类代谢物具有抗炎、抗癌、抗氧化和抗菌等生物活性,已应用于医药(如紫杉二烯、紫穗槐二烯、丹参酮二酮、β-香树脂醇)、香精香料(如柠檬烯、香茅醇、β-石竹烯、芳樟醇)及抗氧化剂(如番茄红素等四萜类胡萝卜素)等领域(图1)。
所有异戊二烯类均以通用C5前体异戊烯基二磷酸(IPP)和二甲基烯丙基二磷酸(DMAPP)为起点合成。体内这两类前体主要由甲羟戊酸(MVA)途径和2-C-甲基-D-赤藓醇-4-磷酸(MEP)途径生成。两条路线均为源自中心碳代谢的多酶级联,涉及十七步以上酶促反应及多重调控,改造耗时且易受宿主代谢与毒性中间体干扰。本研究因此转向无细胞多酶催化:以异戊烯醇利用途径(IUP)绕开IPP/DMAPP供应瓶颈,在体外重构番茄红素合成路线。
研究方法
2.1 菌株、质粒与培养基
本研究所用细菌菌株和质粒列于表S1。大肠杆菌BL21(DE3)和DH5α在LB培养基(5 g/L酵母提取物、10 g/L蛋白胨、10 g/L NaCl)中培养,用于种子培养和蛋白表达前的菌体生长。发酵在2YT培养基(10 g/L酵母提取物、16 g/L蛋白胨、5 g/L NaCl)中进行。按需添加氨苄青霉素或卡那霉素以维持质粒选择。固体培养基通过在相应液体培养基中加入2%(w/v)琼脂制备。
【数据】培养基:LB(5 g/L酵母提取物、10 g/L蛋白胨、10 g/L NaCl);发酵培养基:2YT(10 g/L酵母提取物、16 g/L蛋白胨、5 g/L NaCl);琼脂:2%(w/v);抗生素:氨苄青霉素或卡那霉素;菌株:E. coli BL21(DE3)、DH5α;温度:原文未详述;时间:原文未详述
2.2 DNA操作与质粒构建
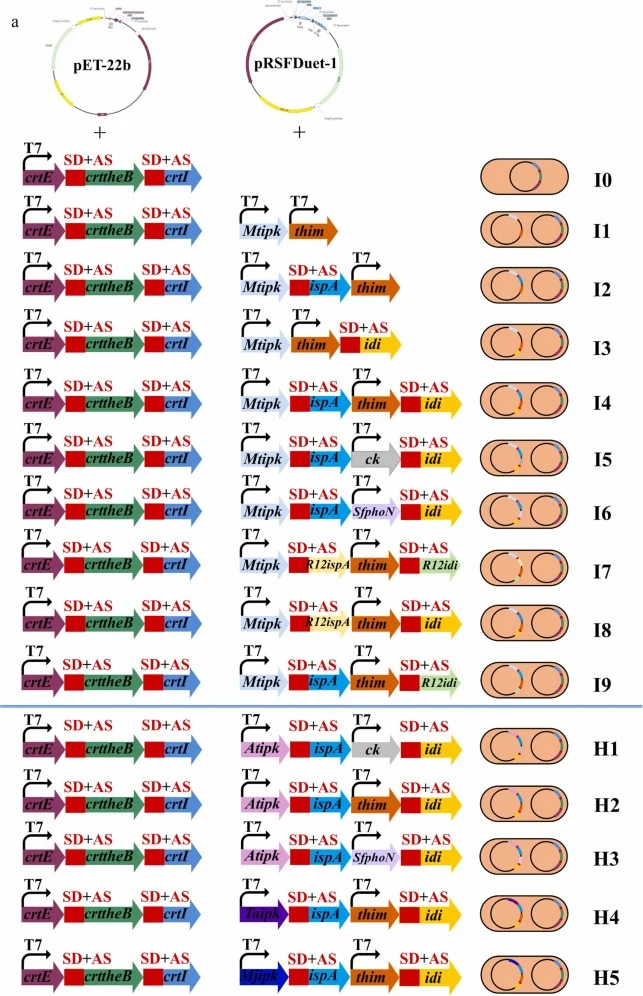
质粒通过标准限制性内切酶—连接法组装。克隆所用引物列于表S2。为构建专用于番茄红素合成的无细胞代谢工程体系,依据文献(Clomburg et al., 2019; Ma et al., 2022; Wang et al., 2023a; Chen et al., 2025)选择编码关键酶的基因片段,包括Atipk(拟南芥IPK)、Taipk(嗜酸热原体IPK)、Mjipk(詹氏甲烷球菌IPK)、Mtipk(汀达里甲烷叶菌IPK)、Scck(酿酒酵母CK)和crttheB(嗜热栖热菌PSY),由Genewiz(中国)合成,其余基因用相应引物PCR扩增。pET22b质粒经NdeI/XhoI酶切后,分别与crtE(编码乌鲁木齐地芽孢杆菌R12 GGPPS)、crttheB、crtI(编码乌鲁木齐地芽孢杆菌R12 PDS)、MG1655idi(编码大肠杆菌MG1655 IPP异构酶)和R12idi(编码乌鲁木齐地芽孢杆菌R12 IPP异构酶)片段连接,得到重组质粒pET22b-crtE、pET22b-crttheB、pET22b-crtI、pET22b-idi和pET22b-R12idi(图2a、2b)。类似地,pET28a经HindIII/NcoI酶切后与R12ispA(编码乌鲁木齐地芽孢杆菌R12法尼基二磷酸合酶)和MG1655ispA(编码大肠杆菌MG1655法尼基二磷酸合酶)连接,分别得到pET28a-R12ispA和pET28a-ispA(图2b)。此外,Mtipk基因插入pRSFDuet-1的SacI/NotI位点,SfphoN基因(编码福氏志贺菌非特异性酸性磷酸酶)插入pRSFDuet-1的NcoI/BamHI位点,thim基因(编码大肠杆菌BL21(DE3)羟乙基噻唑激酶)插入pETDuet-1的NdeI/XhoI位点,分别生成pRSFDuet-Mtipk、pRSFDuet-SfphoN和pETDuet-thim(图2c)。体内番茄红素合成重组质粒的构建,是以pRSFDuet-Mtipk、pETDuet-thim、pET28a-ispA、pET22b-idi、pET22b-crtE、pET22b-crttheB和pET22b-crtI为模板,扩增Mtipk(SacI/NotI)、thim(NdeI/XhoI)、SD1+MG1655ispA(NotI)、SD1+MG1655idi(XhoI)、crtE(NdeI/EcoRI)、SD+AS+crttheB(EcoRI/HindIII)和SD+AS+crtI(HindIII/XhoI)基因片段。经凝胶纯化和双酶切后,片段连接入相应载体,获得重组质粒pRSFDuet-Mtipk-thim、pRSFDuet-Mtipk-ispA-thim、pRSFDuet-Mtipk-thim-idi、pRSFDuet-Mtipk-ispA-thim-idi和pET22b-crtEtheBI(图2d)。
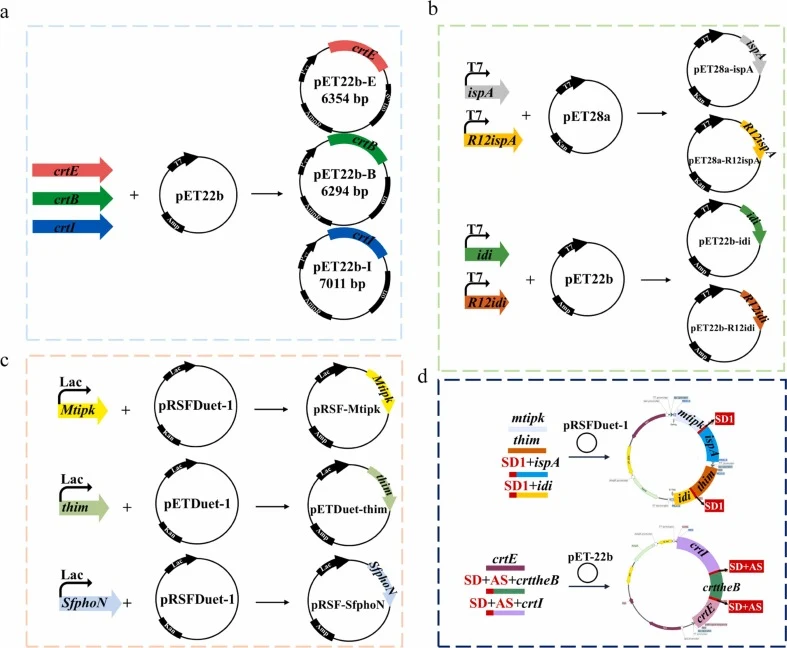
【数据】限制酶:NdeI/XhoI、HindIII/NcoI、SacI/NotI、NcoI/BamHI、EcoRI/HindIII;质粒:pET22b、pET28a、pRSFDuet-1、pETDuet-1;基因片段大小:原文未详述;连接温度:原文未详述;时间:原文未详述
2.3 酶的表达
各质粒单独转化大肠杆菌BL21(DE3)进行蛋白表达。挑取单转化子菌落接种于50 mL含相应抗生素的LB培养基,37℃、180 rpm过夜培养。种子液按1:100(v/v)稀释至新鲜含抗生素LB培养基,37℃、200 rpm培养至OD600达0.6–0.8。加入0.1 mM异丙基-β-D-硫代半乳糖苷(IPTG)诱导蛋白表达,随后于28℃、160 rpm继续培养4小时。离心(8,500 rpm,4℃)收集菌体,用冰预冷20 mM Tris-HCl缓冲液(pH 8.0)洗涤两次,重悬于3 mL同一缓冲液。超声破碎(210 W,冰上5–10 min)裂解细胞。裂解液离心(12,000 rpm,4℃,10 min)澄清,上清用于SDS-PAGE分析。目标蛋白用Amicon Ultra离心超滤装置(Millipore)浓缩。蛋白浓度用Nanodrop分光光度计(ND-1000 UV,Nanodrop Technologies,美国)以牛血清白蛋白为标准测定。
【数据】接种量:50 mL LB;转速:180 rpm(过夜)、200 rpm(扩培)、160 rpm(诱导后);温度:37℃(过夜与扩培)、28℃(诱导后);IPTG:0.1 mM;诱导时间:4 h;OD600:0.6–0.8;超声功率:210 W;超声时间:5–10 min;离心:8,500 rpm/4℃(收菌)、12,000 rpm/4℃/10 min(澄清);缓冲液:20 mM Tris-HCl pH 8.0;重悬体积:3 mL;标准品:牛血清白蛋白
2.4 无细胞代谢工程体系的构建
番茄红素通过IUP在基于裂解液的CFME体系中体外合成。体系所用裂解液含七种关键酶(IPK、THIM、IDI、IspA、GGPPS、PSY、PDS),每种酶初始浓度设为0.4 mg/mL。该浓度依据此前发表的粗裂解液无细胞萜类生物合成工作流程确定(Niu et al., 2020)。初始反应混合物于冰上配制,含100 mM Bis-Tris缓冲液(pH 7.0)、8 mM乙酸镁、10 mM乙酸铵、134 mM乙酸钾、10 mM KH2PO4、1 mM NAD+、1 mM ATP、1 mM CoA、0.05%(w/v)Tween-20及5 mM总底物(异戊烯醇:异戊烯醇=1:3,摩尔比)(Lim and Kim, 2019; Chen et al., 2025)。优化底物比例后,所有后续CFME实验均在15 mM底物、异戊烯醇:异戊烯醇=3:1摩尔比的优化条件下进行。反应管用Parafilm封口,30℃避光孵育24小时。对总底物浓度、底物比例、单酶浓度、Bis-Tris缓冲液浓度、pH、金属盐、辅因子、反应温度和反应时间等参数进行系统优化。
【数据】初始单酶浓度:0.4 mg/mL;Bis-Tris:100 mM,pH 7.0;乙酸镁:8 mM;乙酸铵:10 mM;乙酸钾:134 mM;KH2PO4:10 mM;NAD+:1 mM;ATP:1 mM;CoA:1 mM;Tween-20:0.05%(w/v);初始总底物:5 mM(异戊烯醇:异戊烯醇=1:3);优化后底物:15 mM(3:1);温度:30℃;时间:24 h
2.5 CFME体系中的单酶缺失与滴定实验
为鉴定优化CFME条件下含七酶IUP途径中控制通量的主要酶,用标准化粗裂解液进行单酶缺失实验。完整七酶反应体系作为阳性对照。各实验组缺失一种酶,其余六酶保持优化浓度0.6 mg/mL。补充含空载体的大肠杆菌BL21(DE3)裂解液以维持总蛋白浓度恒定,并通过SDS-PAGE结合ImageJ灰度分析验证。对于每种含不同上游激酶或转移酶的裂解液(AtIPK、TaIPK、MjIPK、SfPhoN、R12IspA、MG1655IspA、R12IDI或MG1655IDI),将目标酶浓度0.6 mg/mL对应的参考上样量定义为1.0倍。在0.2、0.4、0.6、0.8和1.0倍目标酶上样水平下,补充含空载体的大肠杆菌BL21(DE3)裂解液,使所有反应体系总可溶性蛋白相等。所有反应均补充GGPPS、PSY和PDS(各0.6 mg/mL)作为标准化下游番茄红素合成模块。
【数据】单酶缺失体系:六酶+空载裂解液;酶浓度:0.6 mg/mL;上样梯度:0.2、0.4、0.6、0.8、1.0倍;下游模块:GGPPS、PSY、PDS各0.6 mg/mL;总蛋白校正:空载体裂解液;定量方法:SDS-PAGE+ImageJ灰度分析
2.6 体内合成与发酵优化
重组质粒pET22b-crtEtheBI转化大肠杆菌BL21(DE3)构建基础菌株I0。选取CFME体系中催化性能较优的激酶组合进行体内验证。不同来源IPK分别与CK、THIM和SfPhoN组合,并过表达额外拷贝的ispA和idi。所得质粒转化菌株I0,生成体内验证菌株I1–I9和H1–H5。最终菌株优化采用的两阶段发酵策略以CFME体系先前优化的温度为指导。重组菌按2%(v/v)接种量接入2YT液体培养基,37℃、200 rpm避光培养2小时。随后加入0.1 mM IPTG及异戊烯醇混合底物(原文节选至此结束,后续步骤原文未详述)。
【数据】基础菌株:I0(pET22b-crtEtheBI);验证菌株:I1–I9、H1–H5;接种量:2%(v/v);培养基:2YT;温度:37℃;转速:200 rpm;时间:2 h;IPTG:0.1 mM;底物:异戊烯醇混合底物(浓度原文未详述)
研究结果
3.1 IUP途径重组表达质粒的构建与验证
通过PCR扩增获得Mtipk(781 bp)、thim(789 bp)、R12ispA(999 bp)、R12idi(993 bp)、MG1655ispA(900 bp)、MG1655idi(549 bp)、crttheB(870 bp)、crtE(990 bp)和crtI(1647 bp)基因片段。凝胶回收后,各片段与相应表达质粒分别双酶切并连接,生成用于体外合成体系的重组质粒:pRSFDuet-Mtipk、pETDuet-thim、pET28a-R12ispA、pET22b-R12idi、pET28a-ispA、pET22b-idi、pET22b-crtE、pET22b-crttheB和pET22b-crtI。用于体内合成体系,扩增获得SD1+MG1655ispA(930 bp)、SD1+MG1655idi(576 bp)、crtE(990 bp)、SD+AS+crttheB(877 bp)和SD+AS+crtI(1663 bp)片段,纯化后同样酶切并连接入相应载体,构建重组质粒pRSFDuet-Mtipk-thim、pRSFDuet-Mtipk-ispA-thim、pRSFDuet-Mtipk-thim-idi、pRSFDuet-Mtipk-ispA-thim-idi和pET22b-crtEtheBI。双酶切验证所得基因片段大小与预期插入基因一致(图S1)。测序确认所有构建质粒序列正确,表明组装成功。
【数据】基因片段大小:Mtipk 781 bp;thim 789 bp;R12ispA 999 bp;R12idi 993 bp;MG1655ispA 900 bp;MG1655idi 549 bp;crttheB 870 bp;crtE 990 bp;crtI 1647 bp;SD1+MG1655ispA 930 bp;SD1+MG1655idi 576 bp;SD+AS+crttheB 877 bp;SD+AS+crtI 1663 bp;验证方法:双酶切+测序
3.2 可溶性关键酶的筛选与诱导
各构建的重组质粒转化大肠杆菌BL21(DE3)进行蛋白表达。诱导后分析目标蛋白的可溶性表达。AtIPK、TaIPK、MjIPK和ScCK的理论分子量分别为35.7、26.8、29.5和66.3 kDa。SDS-PAGE分析表明,在28℃或15℃诱导下,AtIPK、TaIPK和MjIPK在上清中均检测不到;这些蛋白主要形成不溶性包涵体,存在于沉淀组分中。对于ScCK,上清和沉淀中均未观察到与预期大小对应的明显条带。相反,IspA和IDI成功以可溶形式表达,粗裂解液上清中出现清晰条带(图S2)。为提高可溶性表达,先将诱导温度降至15℃。然而该调整并未显著提高IPK的溶解度。于是筛选替代表达载体。以MjIPK为代表,将基因分别克隆至pET28a、pET22b、pUC19和pTrc99a,上清中均未观察到可溶性表达(图S3)。鉴于构建番茄红素合成CFME体系需要高丰度可溶性蛋白,随后筛选替代酶源。选取汀达里甲烷叶菌ipk基因、福氏志贺菌非特异性酸性磷酸酶基因phoN及大肠杆菌BL21(DE3)羟乙基噻唑激酶基因thim。经0.1 mM IPTG、28℃诱导4小时后,三个候选均在上清中显示明显可溶性表达。其中pETDuet-thim的表达水平高于pRSFDuet-SfphoN(图3a)。在IPK和THIM成功可溶表达后,对乌鲁木齐地芽孢杆菌R12的IspA和大肠杆菌MG1655的IDI也进行诱导表达。IspA和IDI均在粗裂解液中大量可溶表达(图3b)。此前研究已证明,乌鲁木齐地芽孢杆菌R12的GGPPS和PDS以及嗜热栖热菌PSY可在大肠杆菌BL21(DE3)中高水平可溶表达(Chen et al., 2025)。因此,IUP途径合成番茄红素所需的全部七种关键酶(MtIPK、THIM、IspA、IDI、GGPPS、PDS、PSY)在各自最优诱导条件下均分别在上清中以高水平可溶形式表达(图3c)。
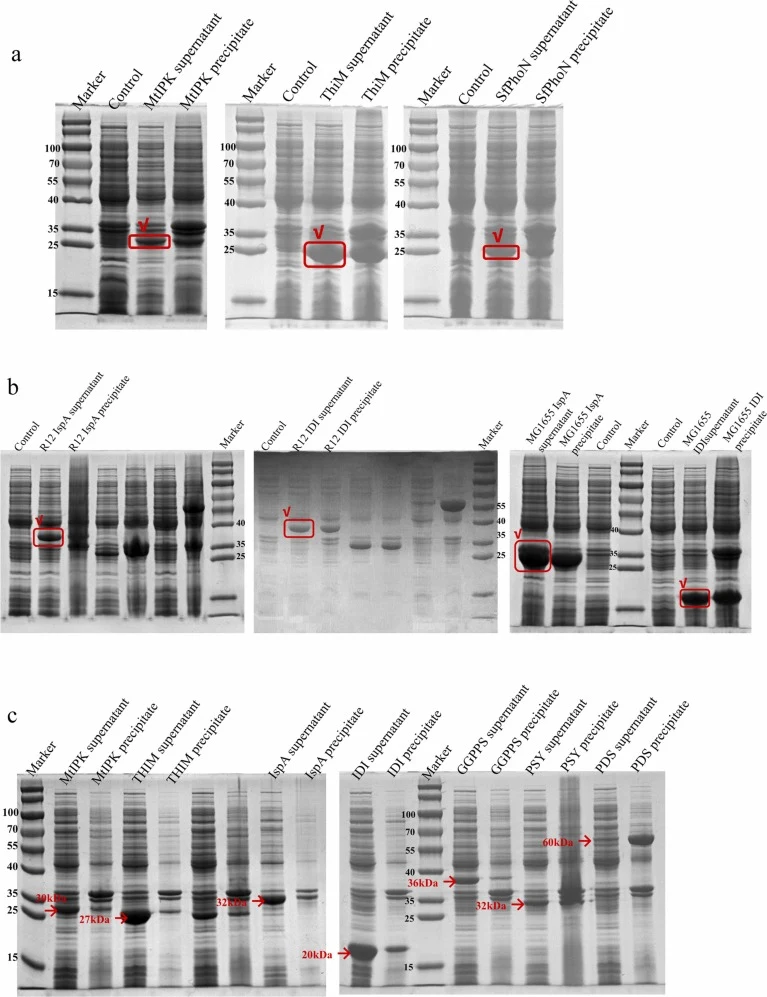
【数据】理论分子量:AtIPK 35.7 kDa;TaIPK 26.8 kDa;MjIPK 29.5 kDa;ScCK 66.3 kDa;诱导条件:0.1 mM IPTG、28℃、4 h(替代酶源);低温诱导:15℃;表达载体筛选:pET28a、pET22b、pUC19、pTrc99a;可溶表达酶:MtIPK、THIM、IspA、IDI、GGPPS、PDS、PSY;检测方法:SDS-PAGE
3.3 基于IUP途径的番茄红素CFME体系构建
将全部关键酶的 supernatant 裂解液与反应混合物于冰上组装成无细胞反应体系。30℃避光孵育24小时后,反应混合物出现明显颜色变化(图4)。如图4b所示,在测试的四种IPK变体中,仅源自汀达里甲烷叶菌的IPK与表达THIM或SfPhoN的重组菌裂解液组合时产生红色。汀达里甲烷叶菌IPK与THIM、IspA(大肠杆菌MG1655)、IDI(大肠杆菌MG1655)的组合,其颜色明显深于SfPhoN、R12IspA和R12IDI的组合。该观察结果与目标蛋白SDS-PAGE分析结果一致。由于番茄红素是萜类生物合成途径中第一个有色产物,该颜色变化证实基于IUP途径的番茄红素CFME体系构建成功。
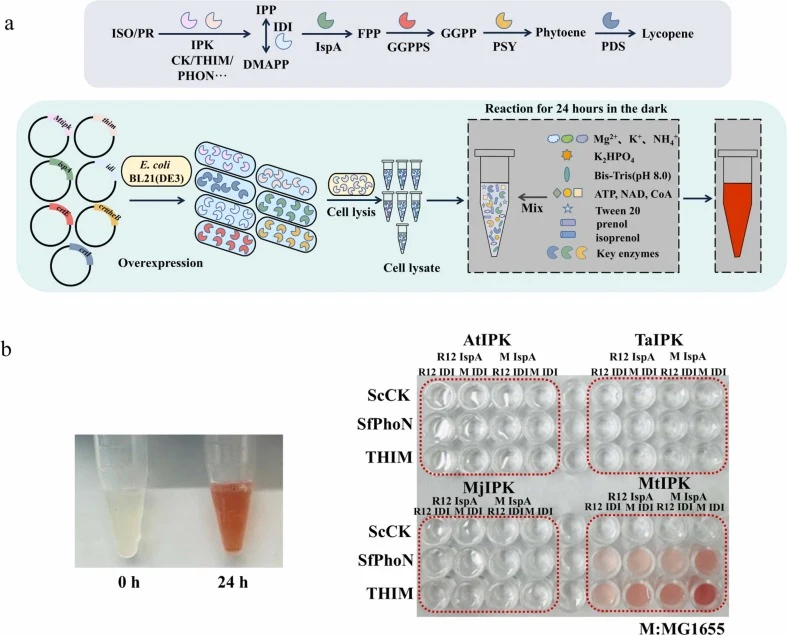
【数据】反应温度:30℃;反应时间:24 h;光照:避光;IPK变体:4种;有效组合:MtIPK+THIM+IspA+IDI;颜色:红色(番茄红素);对照组合:SfPhoN+R12IspA+R12IDI(颜色较浅);产量:原文未详述(本节未定量)
3.4 基于IUP途径的番茄红素CFME体系优化
首先优化反应体系底物浓度。总底物浓度15 mM时番茄红素产量最高,达23.10 mg/L(图5a)。随后考察异戊烯醇:异戊烯醇比例。对本研究所用MtIPK与THIM组合,番茄红素产量随异戊烯醇或异戊烯醇比例增加而逐步升高,在异戊烯醇:异戊烯醇=3:1时达最大(图5b)。为考察单酶浓度影响,浓缩各关键酶表达裂解液并在0.4–2.5 mg/mL范围内测试。番茄红素产量随酶浓度升高而增加,酶浓度1.5 mg/mL时最高达65.75 mg/L(图5c)。蛋白浓度高于0.6 mg/mL时番茄红素产量仅略有增加,而更高蛋白水平引起絮凝。因此选择0.6 mg/mL作为后续实验的优化酶浓度。接着考察Bis-Tris缓冲液浓度(10–300 mM)的影响。30 mM时产量最高(70.46 mg/L)(图5d)。溶液pH对番茄红素生产影响显著,酸性条件下随pH升高产量约增加两倍,pH 6.5时达78.67 mg/L(图5e)。中性pH影响可忽略,pH进一步升高则产量逐渐下降。乙酸镁、乙酸钾、乙酸锰和乙酸铵的单因素实验表明,番茄红素合成不依赖金属盐添加。单独补充Mg2+时产量最高(110.88 mg/L)(图5f)。单独补充Mn2+或NH4+也促进合成,单独补充K+无显著影响。组合两种或以上离子通常适度提高番茄红素产量,但NH4+与K+组合以及Mn2+、Mg2+、NH4+三者组合抑制番茄红素合成。通过单独及组合测试NAD、CoA、ATP和NADP评估辅因子影响。NAD+CoA+ATP组合时番茄红素产量最高(110.88 mg/L)(图5g)。添加NADP的促进效果不及NAD。所测辅因子中,NAD的限制性作用最强,ATP是整体途径第二关键辅因子。CoA缺失导致番茄红素产量中度但可测量的下降。为确定最优反应温度,在15℃、20℃、25℃、30℃、35℃和40℃测试体系。番茄红素产量随温度逐渐升高,30℃时达最大(110.88 mg/L)(图5h)。最后在优化条件下测定不同时间点番茄红素产量。前20小时内番茄红素积累成比例增加,达到……(原文节选至此结束,后续数据原文未详述)。
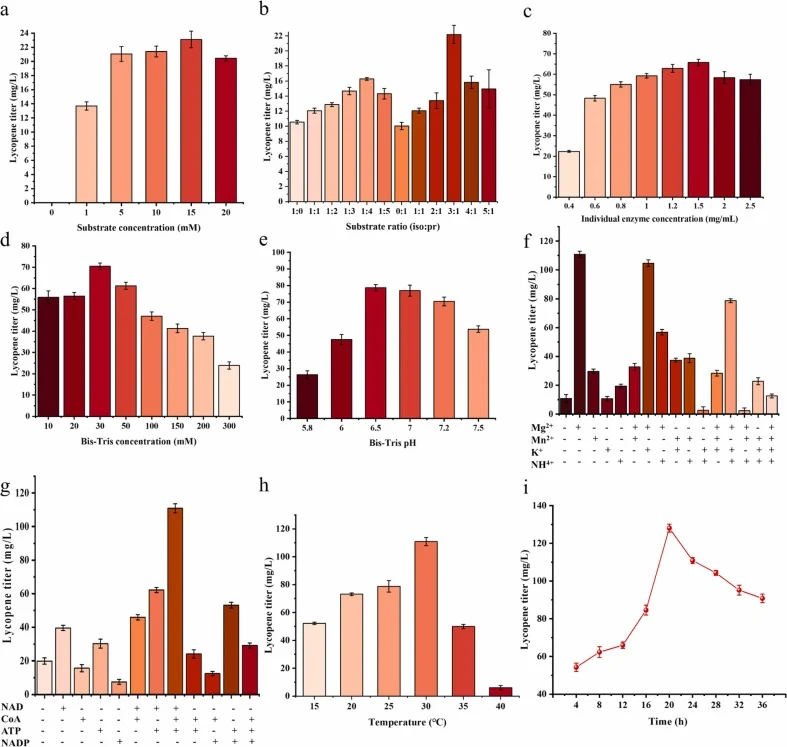
【数据】底物浓度:15 mM(产量23.10 mg/L);底物比例:异戊烯醇:异戊烯醇=3:1;酶浓度:0.4–2.5 mg/mL,最优0.6 mg/mL(1.5 mg/mL时65.75 mg/L);Bis-Tris:10–300 mM,最优30 mM(70.46 mg/L);pH:最优6.5(78.67 mg/L);金属离子:单独Mg2+最优(110.88 mg/L);辅因子:NAD+CoA+ATP最优(110.88 mg/L);温度:15–40℃,最优30℃(110.88 mg/L);时间:前20 h成比例积累
3.5 体内验证与两阶段发酵优化
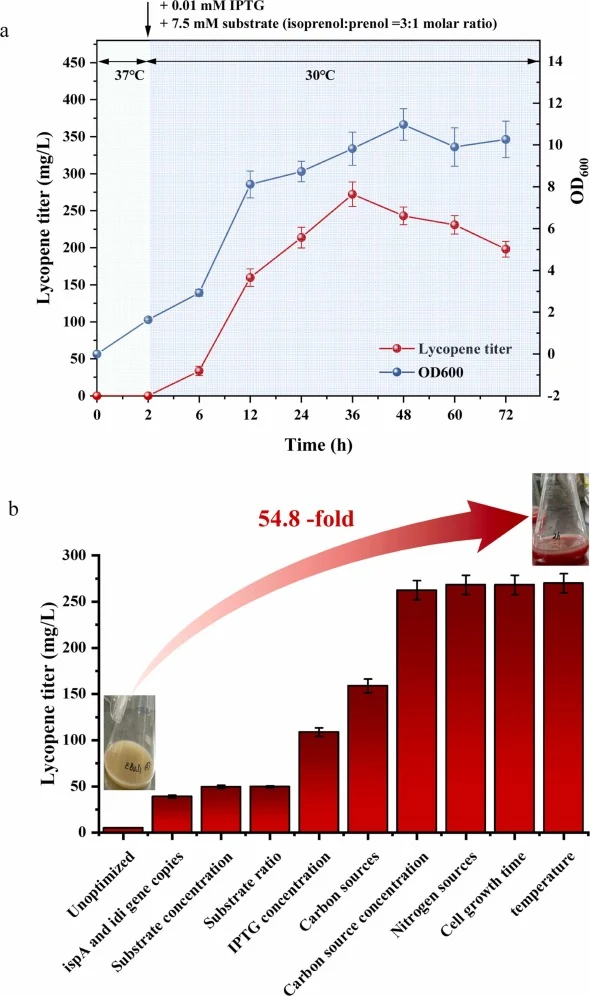
(原文节选未包含此节完整内容,以下信息来自摘要与图表清单)CFME体系中筛选出的激酶变体结果在体内进行了验证:不同来源IPK分别与CK、THIM、SfPhoN组合,并过表达额外拷贝的ispA和idi,基因组合克隆至pRSFDuet-1并转化(图6)。体内验证最终番茄红素产量达270.0 mg/L。对关键参数进行系统优化后,番茄红素产量提高54.8倍(图7)。
【数据】体内最终产量:270.0 mg/L;产量提升倍数:54.8倍;验证菌株:I1–I9、H1–H5;载体:pRSFDuet-1;过表达基因:ispA、idi
讨论与解读
IUP途径合成番茄红素由七种关键酶催化:IPK、乙醇激酶、IspA、IDI、GGPPS、PSY和PDS(图1)。IUP途径的关键酶IPK常用同源物来自拟南芥(At)、嗜酸热原体(Ta)、詹氏甲烷球菌(Mj)和汀达里甲烷叶菌(Mt);所需乙醇激酶可由酿酒酵母胆碱激酶(CK)、福氏志贺菌非特异性酸性磷酸酶(PhoN)、变形链球菌二酰甘油激酶(DGK)或大肠杆菌BL21(DE3)天然羟乙基噻唑激酶(THIM)提供;IspA通常来自拟南芥、人参、大肠杆菌和酿酒酵母;IDI源自拟南芥、丹参和大肠杆菌。基于这些核苷酸序列的比较分析,研究选取了四种不同来源的IPK基因、三种来源的额外激酶基因以及两种不同来源的IspA和IDI基因进行筛选(原文节选至此结束)。
本研究的核心思路是用无细胞粗裂解液多酶级联替代体内多基因调控:七种酶单独表达、按需组装,避免了宿主代谢干扰与中间体毒性,且不依赖昂贵的IPP/DMAPP。方法学上的亮点在于"先体外筛选、再体内验证"的闭环——CFME体系快速鉴定了MtIPK与THIM这一可溶且高效的激酶组合,并给出了底物比例、酶浓度、pH、金属离子与辅因子的定量最优区间;体内两阶段发酵最终把产量推到270.0 mg/L、较优化前提高54.8倍。局限同样明显:粗裂解液背景蛋白复杂、批间差异大,0.6 mg/mL以上易絮凝,体系放大与成本核算仍是产业化的门槛。总体而言,该工作为萜类化合物的快速原型合成提供了一条可复用的无细胞路线。
参考来源
期刊:Journal of Biotechnology, 2026
DOI: 10.1016/j.jbiotec.2026.10.015
DOI: 10.1016/j.jbiotec.2026.10.015