来源:Biocatalytic synthesis of a precursor for 3-[(1R,2R)-3-(dimethylamino)-1-ethyl-2-methylpropyl]phenol with Saccharomyces cerevisiae biocatalyst(Process Biochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
手性醇是众多药物分子的关键砌块。本研究以酿酒酵母全细胞为催化剂,将化学合成的 (Z)-2-(氯甲基)-3-(3-甲氧基苯基)丙烯醛还原为 (S)-3-(3-甲氧基苯基)-2-甲基丙-1-醇——镇痛药他喷他多的手性前体。在 0.1 g L⁻¹ 底物浓度下,实现 70.3% 转化率、70% 产物收率与 98% 对映过量,并以 POLYMATH® 拟合获得动力学参数,为全细胞不对称还原的工艺设计提供了可参照的数据集。
研究背景
生物催化凭借在温和条件下的化学、区域与对映选择性,已成为精细化学品与药物中间体合成的可持续路线。与化学催化剂相比,生物催化可降低能耗、减少危险废物、避免有毒金属催化剂,契合绿色化学原则;对于需要高立体选择性的光学纯化合物合成尤具吸引力。在各类生物催化体系中,全细胞催化剂相较游离酶具有酶稳定性高、辅因子可原位再生、胞内酶受细胞环境庇护、无需昂贵纯化与外加辅因子等优势,工业经济性更好,因而成为高价值手性分子与药物中间体生产的重要平台。
反应条件优化是全细胞催化过程开发的关键环节——温度、pH、搅拌速率、底物浓度、细胞密度直接影响酶活、胞内辅因子再生、传质与细胞活性。已有研究将系统优化策略成功用于全细胞催化合成手性醇及多种药物中间体。本文以酿酒酵母还原氯代醛底物为模型,考察生长阶段、生物量负载与底物浓度对还原效率与对映选择性的影响,并进行动力学表征。
研究方法
2.1 微生物与化学试剂
干酵母形式的酿酒酵母(Saccharomyces cerevisiae)、DABCO、乙醚、盐酸(HCl)、氢氧化钠(NaOH)、氯化钠(NaCl)、无水硫酸镁(MgSO₄)、乙酸乙酯(GC 级)均购自 Sigma-Aldrich(美国)。酵母浸粉蛋白胨葡萄糖(YPD)生长培养基含酵母提取物、蛋白胨、氯化钠(NaCl)与葡萄糖,亦由同一供应商提供。
【数据】试剂:DABCO、乙醚、HCl、NaOH、NaCl、无水MgSO₄、乙酸乙酯(GC级);培养基:YPD(酵母提取物、蛋白胨、NaCl、葡萄糖);供应商:Sigma-Aldrich(美国);其余参数:原文未详述
2.2 经 Baylis-Hillman 加合物制备醛底物
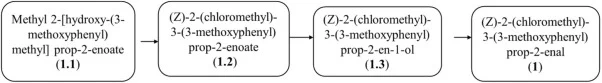
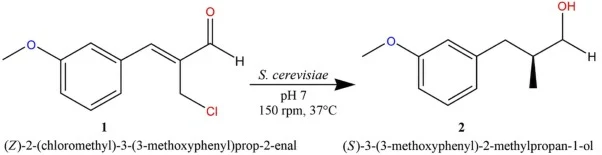
底物(1)的合成始于 3-甲氧基苯甲醛(8.93 mL,73.46 mmol)与丙烯酸甲酯(9.97 mL,110.71 mmol)在 DABCO(8.97 g,79.96 mmol)存在下的反应,室温搅拌过夜。产物 2-[羟基-(3-甲氧基苯基)甲基]丙烯酸甲酯(1.1)用 12 M HCl(55 mL,27.45 mmol)处理 12–18 h,得到 (Z)-2-(氯甲基)-3-(3-甲氧基苯基)丙烯酸甲酯(1.2),为淡黄色油状物。该化合物(1.2)(4.00 g,16.62 mmol)在干燥甲苯(80 mL)中、氮气保护下用 DIBAH(40 mL,40 mmol)还原 24 h,随后加入丙酮(4 mL)与饱和酒石酸钾钠(4 mL)。用稀 HCl(15 mL)搅拌 1 h 后,得到醇中间体(1.3)。最后,化合物(1.3)(2.00 g,9.40 mmol)在二氯甲烷(40 mL)中用 PCC 与硅胶(8.10 g)于室温氧化 1 h,得到最终醛底物(1)。所有步骤均以 TLC 监测,产物经标准水相后处理及硅胶柱层析纯化,洗脱剂为乙酸乙酯:己烷(1:5)。
【数据】3-甲氧基苯甲醛:8.93 mL(73.46 mmol);丙烯酸甲酯:9.97 mL(110.71 mmol);DABCO:8.97 g(79.96 mmol);室温搅拌:过夜;HCl:12 M,55 mL(27.45 mmol),12–18 h;化合物1.2:4.00 g(16.62 mmol);DIBAH:40 mL(40 mmol);甲苯:80 mL;还原时间:24 h;丙酮:4 mL;饱和酒石酸钾钠:4 mL;稀HCl:15 mL,1 h;化合物1.3:2.00 g(9.40 mmol);PCC+硅胶:8.10 g;二氯甲烷:40 mL;氧化:室温、1 h;洗脱剂:乙酸乙酯:己烷=1:5
完整的四步连续合成路线见图1。
2.3 酿酒酵母的培养
生物转化实验前,酿酒酵母在摇瓶中培养以获得足量全细胞催化剂生物质。发酵条件依据已建立的酿酒酵母培养方案及预实验优化选定,以确保生物质产量可重复,并在生物转化前维持细胞活力与代谢活性。培养在含 YPD 培养基的 250 mL 挡板摇瓶中进行(蛋白胨、酵母提取物、葡萄糖、氯化钠各 10 g L⁻¹,溶于 1 L 去离子水)。选择 YPD 因其营养丰富,可支持酿酒酵母快速生长与高生物量积累。培养基在接种前于 121 °C 高压灭菌 20 min。以无菌操作将 0.25 g 酿酒酵母接入培养基,获得 1 g L⁻¹ 的初始细胞浓度。发酵在 37 °C、150 rpm 下用恒温振荡器(IKA KS4000i Control,韩国)进行约 154 h。选择 150 rpm 是为在培养过程中提供充分氧传递与均匀混合。酿酒酵母的最适生长温度一般报道为 30 °C 左右,但本研究选择 37 °C 培养,以与后续生物转化实验保持一致——在该温度下产物形成最优。在此条件下,酿酒酵母生长良好,产生足量生物质供后续全细胞催化还原实验使用。细胞生长通过定期取样 1 mL 培养液监测,样品以 4000 rpm 离心 10 min。空 1 mL 塑料 Eppendorf 管先在烘箱中预干燥并称重,获得干管重量。离心后弃上清,细胞沉淀于 60 °C 干燥至恒重,以确保生物量测定准确。随后称量含干燥沉淀的管,生物量浓度由含干燥细胞管与空管重量之差计算,表示为每升克干细胞重(g L⁻¹)。该方法可构建整个发酵过程的酿酒酵母生长曲线。所有实验均设三次重复(n = 3),结果以平均值 ± 标准差(SD)表示,图中误差棒代表 SD。
【数据】摇瓶:250 mL挡板瓶;YPD组分:蛋白胨、酵母提取物、葡萄糖、NaCl各10 g L⁻¹;灭菌:121 °C、20 min;接种量:0.25 g(初始浓度1 g L⁻¹);温度:37 °C;转速:150 rpm;发酵时间:约154 h;取样:1 mL;离心:4000 rpm、10 min;干燥:60 °C至恒重;重复数:n=3
2.4 摇瓶生物转化
#### 2.4.1 生长阶段生物转化
采用摇瓶发酵考察生长阶段的底物生物转化。250 mL YPD 培养基接入干酿酒酵母细胞,初始生物量浓度 1 g L⁻¹(相当于 250 mL 培养基中 0.25 g 干细胞),于 37 °C、150 rpm 轨道振荡培养。经 30 min 适应期使体系充分混合、悬浮并适应实验环境后,开始取样进行生长定量。本实验旨在评价细胞在生物转化过程中将底物(1)还原为相应产物的能力,评估细胞生物量对催化性能的影响,并为解析负责酶及潜在底物抑制效应提供线索。发酵在相同条件(37 °C、150 rpm)的标准 YPD 培养基中重复进行,以确保可重复性并与已建立的酿酒酵母生长曲线比较。生长定义为活跃细胞分裂导致的生物量指数增加,监测并与标准曲线对比。该策略有助于在正常生长动态背景下全面评估酵母的生物转化能力,为理解细胞代谢与外加底物(1)之间的相互作用提供信息;与标准生长曲线的比较有助于区分正常生长模式与底物存在引起的变化。研究还考察了不同生物量浓度对酿酒酵母全细胞生物转化性能的影响,生物量负载为 1、5、10、20、50 g L⁻¹,体系为 250 mL 0.1 M 磷酸缓冲液(pH 7.0)并补充 10 g L⁻¹ 葡萄糖。这些生物量浓度代表生物转化实验中的催化剂负载量,并非酵母培养的接种剂量。实验在 37 °C、150 rpm 轨道振荡的受控条件下进行。为评价底物浓度对稳定期生物转化的影响,在保持其他实验条件不变的情况下系统改变底物浓度。反应条件优化是全细胞催化过程开发的关键步骤,因为微生物催化性能受反应环境强烈影响。已有研究表明,系统优化工艺参数对提高生物催化过程的效率、稳健性与工业适用性至关重要。温度、pH、搅拌速率、底物浓度、细胞密度等参数直接影响酶活、胞内辅因子再生、传质、细胞活力与整体生物转化性能;对这些变量的适当优化可提高不对称生物转化中的底物转化率、产物收率、过程生产力与对映选择性。优化策略也已成功应用于全细胞催化剂立体选择性合成手性醇及其他药物中间体。因此,本研究在受控操作条件下系统考察了底物浓度对稳定期生物转化的影响。
【数据】培养基体积:250 mL;初始生物量:1 g L⁻¹(0.25 g干细胞);适应期:30 min;温度:37 °C;转速:150 rpm;生物量负载:1、5、10、20、50 g L⁻¹;缓冲液:0.1 M磷酸缓冲液(pH 7.0);葡萄糖:10 g L⁻¹;底物初始浓度:0.1 g L⁻¹;重复数:n=3
研究结果
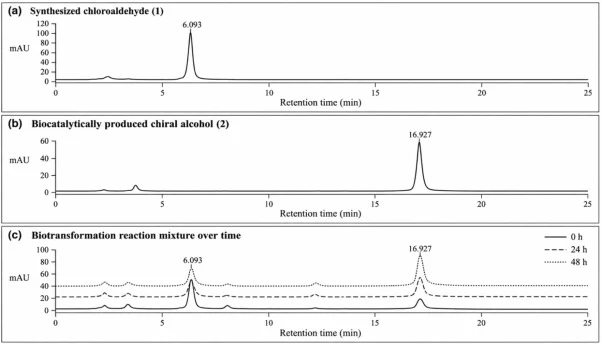
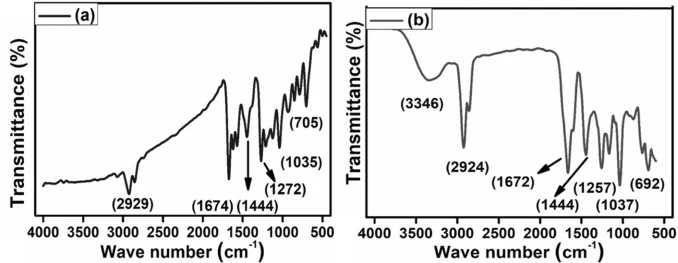
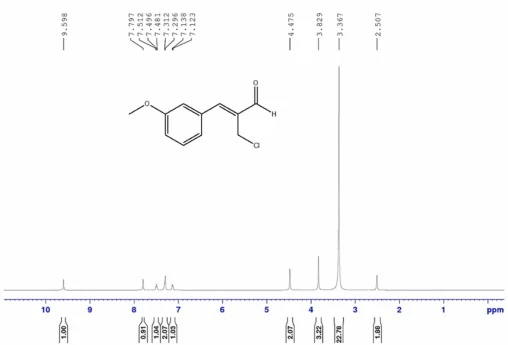
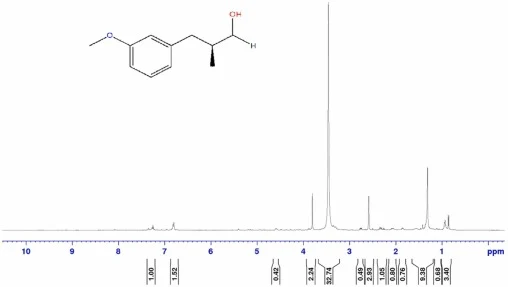
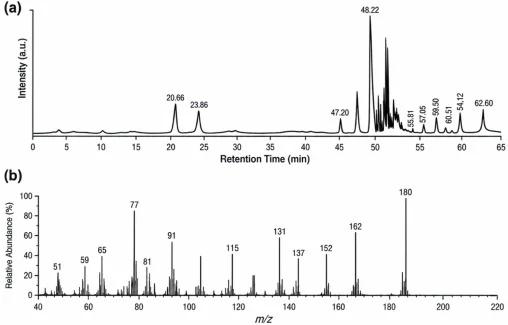
氯代醛(1)与手性醇(2)经化学合成制备,并用 NMR、FTIR 与 GC-MS 表征以确认结构完整性。生物转化过程中,底物以 0.1 g L⁻¹ 初始浓度加入,随时间监测其消耗与目标手性醇的生成。反应进程采用相应分析技术分析,评估底物耗尽与产物积累,从而反映全细胞催化体系的效率。
3.1 酿酒酵母的生长
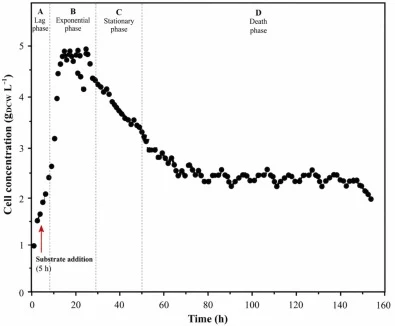
酿酒酵母生长评价特别关注指数期(图2,区域B)。生长曲线呈现四个明显阶段:迟滞期(A)、指数期(B)、稳定期(C)与死亡期(D)。迟滞期约持续 5 h,随后指数期细胞快速分裂,稳定期减速,末期净细胞死亡。酿酒酵母在富葡萄糖培养基中的类似生长模式已有广泛报道。例如 Walker 报道,YPD 培养基中培养的酵母细胞因可利用葡萄糖等可发酵碳源而表现明显迟滞期后快速指数生长;既往研究也报道了含葡萄糖培养基中酿酒酵母相似的生长特征。所有实验重复中,相邻生长阶段间的转换时间基本一致,偏差仅 ±1 h。生长曲线提示,在指数早期加入底物可能有利于生物转化效率,因为代谢活跃的细胞预期具有更强的还原催化能力。指数生长期观察到的底物转化表明,代谢活跃细胞为化合物(1)全细胞生物转化为化合物(2)提供了有利条件。此外,细胞在该阶段进行次级代谢,其次级代谢对细胞生长并非必需,但有助于微生物在稳定期条件下的存活。微生物(包括细菌与酿酒酵母等酵母)的次级代谢常与特定生长阶段或胁迫条件相关,这些途径区别于初级代谢,可生成抗生素、色素、信号分子等具有重要生物学功能的天然产物。发酵约 42 h 时细胞生长进入稳定期,生物量浓度约 5 g DCW L⁻¹。细胞浓度是发酵过程的关键因素,影响微生物培养的整体效率与生产力;细胞密度变化可显著影响比生长速率、营养摄取与代谢副产物积累,进而影响目标产物的产量与质量。图2 显示酿酒酵母在葡萄糖浓度 10 g L⁻¹ 的 YPD 培养基中培养 154 h 的生长曲线。同时在五种不同初始细胞浓度(1、5、10、20、50 g L⁻¹)下监测生长。生长速率通过计算比生长速率(μ)量化,μ 反映细胞生物量增加速率,是比较不同初始细胞浓度下生长性能的有用参数(式(4))。Bergman、Olivares-Marín 等与 Rodríguez 等在既往研究中广泛采用类似方法,以比生长速率作为评价酵母生长动力学的关键参数。
μ = (1/X)(dX/dt) (5)
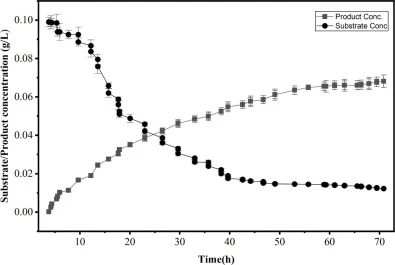
式中 μ 为细胞比生长速率(h⁻¹),X 为细胞浓度(g L⁻¹)。本研究中,比生长速率从 1 g L⁻¹ 时的 0.257 h⁻¹ 升至 5 g L⁻¹ 时的最大值 0.281 h⁻¹;超过该点后,μ 随细胞浓度增加而逐步下降,至 50 g L⁻¹ 时为 0.067 h⁻¹。高生物量下的这一下降与既往报道一致,通常归因于营养与氧限制、密集培养中的传质受限,以及乙醇和有机酸等抑制性代谢副产物的积累。如表1 所示,μ 随细胞密度增加而逐步降低。较高浓度下细胞更快到达稳定期(5–18 h),较低浓度下则较慢(18–60 h)。指数期相对短暂,随后生物量稳定并最终下降。该行为可能反映与细胞密度升高相关的生理限制,包括营养竞争、氧传递限制与传质条件改变,这些因素可在长期培养中影响细胞生长与代谢活性。但本研究未直接考察稳定期提前到来的具体机制。Cheng 等此前报道了酿酒酵母培养中类似的生长行为,证明接种密度可显著影响生长动态与代谢响应。本研究未将污染作为实验变量评价,因此无法就其对所观察生长行为的贡献得出结论。接种后第 5 小时加入底物(1)启动生物转化,每小时取样监测培养稳定性、细胞生长、底物消耗与产物生成。观察到的细胞–底物相互作用与既往羰基化合物生物转化研究一致。高细胞浓度下比生长速率下降可能与密集酵母培养中常见因素有关,包括氧限制、营养竞争与传质效率降低,这些因素共同影响细胞生长与代谢。该策略可细致分析发酵过程中酵母的代谢响应。实验显示,5 g L⁻¹ 细胞浓度实现了有效的氯代醛还原,转化优于 1 g L⁻¹ 及更高细胞浓度,表明羰基还原酶可得性足以支持高效还原。细胞浓度 10–50 g L⁻¹ 时产物生成略有下降,提示羰基还原酶活性降低或产物快速转化——表明酶促通路高效。Mazzoleni 等此前报道了类似发现:高生物量浓度因传质限制与胞内酶调控而降低代谢效率,最终降低整体生长速率。
【数据】迟滞期:约5 h;稳定期起始:约42 h;稳定期生物量:约5 g DCW L⁻¹;培养时长:154 h;葡萄糖:10 g L⁻¹;初始细胞浓度:1、5、10、20、50 g L⁻¹;比生长速率μ:0.257 h⁻¹(1 g L⁻¹)→0.281 h⁻¹(5 g L⁻¹)→0.067 h⁻¹(50 g L⁻¹);稳定期到达时间:5–18 h(高浓度)、18–60 h(低浓度);底物加入时间:接种后第5 h;底物初始浓度:0.1 g L⁻¹;生长阶段转换偏差:±1 h;重复数:n=3
3.2 酿酒酵母的底物利用与生物转化
生物转化过程中底物的还原很可能与酿酒酵母胞内氧化还原酶活性有关,包括烯酸还原酶与羰基还原酶。本研究中中间体的逐渐积累提示羰基还原酶催化活性可能存在限制,进而可能影响整体转化效率。既往研究报道了类似观察,表明酿酒酵母全细胞催化还原效率强烈依赖胞内酶活性与生物量浓度。与这些发现一致,本工作表明维持约 5 g DCW L⁻¹ 的生物量浓度对于保持充足酶活、提高底物转化十分重要。
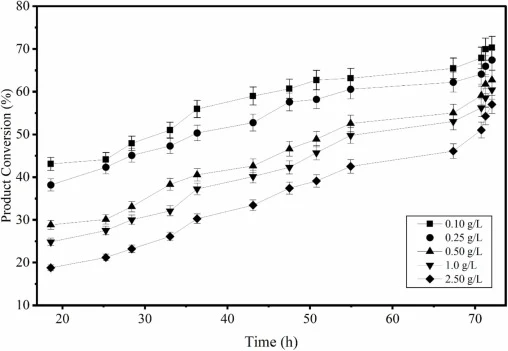
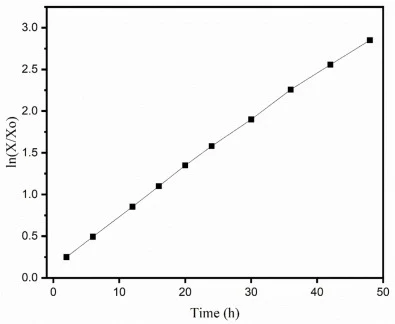
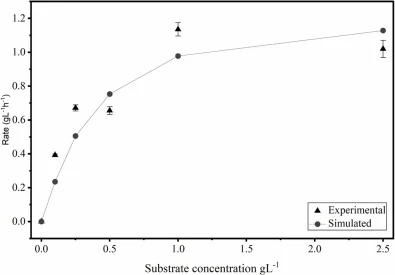
【数据】生物量浓度:约5 g DCW L⁻¹;底物初始浓度:0.1 g L⁻¹;转化率:70.3%;产物收率:70%;对映过量ee:98%;Vmax:1.112 g product g cells⁻¹ h⁻¹;Km:7.95×10⁻⁴ mol L⁻¹;比生长速率μ:0.28 h⁻¹;重复数:n=3
讨论与解读
本研究证明酿酒酵母全细胞可高效将 (Z)-2-(氯甲基)-3-(3-甲氧基苯基)丙烯醛转化为 (S)-3-(3-甲氧基苯基)-2-甲基丙-1-醇。优化条件下实现 70.3% 底物转化、70% 产物收率与 98% 对映过量,显示其在镇痛药他喷他多关键手性中间体立体选择性合成中的潜力。POLYMATH® 动力学分析给出比生长速率 0.28 h⁻¹、表观最大反应速率 Vmax 1.112 g L⁻¹ h⁻¹、米氏常数 Km 7.95×10⁻⁴ mol L⁻¹,为工艺条件选择提供依据。总体上,酿酒酵母全细胞催化是可持续、环境友好的高对映选择性手性药物中间体制备路线;结果为进一步优化该生物转化过程并推广至其他高价值手性化合物合成奠定基础。
编译者解读:该工作的方法学价值在于把"生长阶段—生物量—底物浓度"三因素纳入同一摇瓶体系考察,并用动力学模型把经验优化转成可外推的参数(Vmax、Km),这对合成生物学中全细胞催化模块的放大设计很实用。局限也明显:底物仅 0.1 g L⁻¹,产物收率 70%,说明产物抑制与羰基还原酶活性瓶颈尚未解决;37 °C 培养偏离酵母最适 30 °C,虽为匹配转化温度,但长期发酵的细胞活力代价未量化。后续若结合羰基还原酶过表达或双相体系,工程化空间可观。
参考来源
期刊:Process Biochemistry(2026)
DOI:10.1016/j.procbio.2026.10.004
DOI: 10.1016/j.procbio.2026.10.004