来源:Biosynthesis of 4-hydroxyvalerate from glycerol in engineered Pseudomonas putida KT2440 and its application for the production of Poly(3-hydroxybutyrate-co-3-hydroxyvalerate-co-4-hydroxy valerate) (P(3HB-co-3HV-co-4HV)) terpolymer(New Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
4-羟基戊酸(4HV)是γ-戊内酯与可降解三元共聚物的关键前体,传统上依赖昂贵催化剂从乙酰丙酸(LA)化学转化获得。本研究在前期高产LA的恶臭假单胞菌KT2440底盘上共表达lvaD与lvaE,打通了甘油→LA→4HV的全生物合成路线,补料分批发酵4HV达28.77 mM;再将生物源4HV供给高产PHA的贪铜菌,获得4HV摩尔分数38.53%、PHA含量60.21%的三元共聚物,断裂伸长率提高、玻璃化转变与结晶温度下降。
研究背景
4HV是生物可降解聚酯合成中用到的单体之一,可调节聚合物的物理与力学性能;它同时也是γ-戊内酯(GVL)的前体,而GVL是制备液体运输燃料用烃类的重要中间体。目前4HV主要经催化加氢从LA制得:以钌基过渡金属催化剂将LA选择性转化为4HV,后者随即自发内酯化为GVL。这条化学催化路线的固有缺陷很明显——4HV在催化转化过程中易发生分子内内酯化,生成热力学更稳定的GVL,导致4HV难以作为主产物积累和回收;同时该过程需要高温、水相中的高氢压以及昂贵催化剂。作为替代,全细胞生物催化与酶法转化已被研究,大肠杆菌和恶臭假单胞菌中均有从LA生产4HV的报道。例如在大肠杆菌中,通过过表达来源于粪产碱杆菌的工程化3-羟基丁酸脱氢酶(3hbdh),可用全细胞催化从LA生产4HV。本研究则另辟蹊径:以甘油为起点,在恶臭假单胞菌中重建从中心代谢到4HV的完整生物合成路径,并将其产物用于三元共聚物合成。
研究方法
2.1 化学试剂
乙酰丙酸和γ-戊内酯(GVL)购自Sigma-Aldrich(美国密苏里州圣路易斯)。蔗糖和甘油购自Junsei(日本东京)。果糖购自Daehwa Fine-Chem(韩国首尔),其余所有培养基组分购自Difco(美国密歇根州底特律)。
【数据】试剂:乙酰丙酸、GVL(Sigma-Aldrich);蔗糖、甘油(Junsei);果糖(Daehwa Fine-Chem);培养基组分(Difco);浓度:原文未详述;温度:原文未详述;时间:原文未详述
2.2 质粒构建与菌株
细菌菌株与质粒的详细信息汇总于表3。恶臭假单胞菌KT2440与贪铜菌PHB-4为本实验室保存。大肠杆菌DH5α用作基因重组的宿主。为生产PHA,将phaC BP-M-CPF4克隆至pBBR1MCS2载体;为实现LA向4HV的转化,将代谢基因lvaD和lvaE克隆至pBBR1MCS2载体。这些基因通过T4克隆插入质粒,随后经热激转化进入大肠杆菌DH5α。
【数据】菌株:P. putida KT2440、C. necator PHB-4、E. coli DH5α;质粒:pBBR1MCS2::phaC BP-M-CPF4、pBBR1MCS2::lvaD::lvaE;方法:T4克隆、热激转化;温度:原文未详述;时间:原文未详述
2.3 恶臭假单胞菌KT2440染色体DNA缺失突变体与基因组整合菌株的构建
采用sacB介导的pK19mobsacB载体,通过同源重组构建恶臭假单胞菌KT2440的染色体DNA缺失突变株。为缺失pcaIJ和lvaR基因,分别扩增各基因上下游约500 bp片段并连接成基因盒,插入pK19mobsacB载体。质粒通过电泳导入恶臭假单胞菌KT2440。菌落首先在含卡那霉素(50 μg/mL)的LB平板上筛选,随后在含25%蔗糖的溶菌肉汤(LB)平板上进行反向筛选。筛选出卡那霉素敏感、蔗糖不敏感的菌落,并通过菌落PCR和测序验证。采用相同的sacB介导同源重组策略,将aroG、asbF和adc通过Gibson Assembly组装进pK19mobsacB载体,并组装于各靶基因的上下游片段之间以实现染色体整合。所得质粒经电转化导入恶臭假单胞菌KT2440,采用相同的抗生素筛选与蔗糖反向筛选程序获得基因组整合菌株[17]。
【数据】载体:pK19mobsacB;同源臂长度:约500 bp;抗生素:卡那霉素50 μg/mL;反筛剂:蔗糖25%;组装方法:Gibson Assembly;导入方法:电泳/电转化;基因:pcaIJ、lvaR、aroG、asbF、adc;温度:原文未详述;时间:原文未详述
2.4 贪铜菌PHB-4合成PHA的培养条件
将携带pBBR1MCS2::phaC BP-M-CPF4载体的贪铜菌PHB-4(C. necator PHB-4/pBBR1MCS2::phaC BP-M-CPF4)种子液在5 mL胰酶大豆肉汤(TSB)中、30°C培养24 h,按需添加10 µg/mL庆大霉素和300 µg/mL卡那霉素。Ralstonia eutropha基础培养基(ReMM;pH 6.8)含4.0 g/L NaH2PO4、4.6 g/L Na2HPO4、0.45 g/L K2SO4、0.39 g/L MgSO4、62 mg/L CaCl2以及1 mL/L微量元素溶液。微量元素溶液由15 g/L FeSO4·7H2O、2.4 g/L MnSO4·H2O、2.4 g/L ZnSO4·7H2O和0.48 g/L CuSO4·5H2O溶于0.1 M盐酸配制。细胞经2862 ×g离心15 min回收,用无菌蒸馏水洗涤后用于后续实验。果糖和4HVA等碳源用于PHA生产。尿素(1 g/L)作为氮源。除另有说明外,培养基组分购自Sigma-Aldrich(美国密苏里州圣路易斯)。
【数据】培养基:TSB、ReMM(pH 6.8);温度:30°C;时间:24 h;抗生素:庆大霉素10 µg/mL、卡那霉素300 µg/mL;氮源:尿素1 g/L;离心:2862 ×g、15 min;培养基组分:NaH2PO4 4.0 g/L、Na2HPO4 4.6 g/L、K2SO4 0.45 g/L、MgSO4 0.39 g/L、CaCl2 62 mg/L、微量元素1 mL/L
2.5 恶臭假单胞菌KT2440合成LA与4HV的培养条件
将携带pBBR1MCS2::lvaD::lvaE载体的恶臭假单胞菌KT2440 ΔpcaIJ::aroG::asbF::adc ΔlvaR菌株种子液在5 mL LB培养基中、30°C、200 rpm振荡培养18 h。添加卡那霉素(50 μg/mL)以维持质粒。为生产LA和4HV,将预培养液按1:50(v/v)比例稀释至5 mL含4%甘油或50 mM LA的terrific broth(TB;酪蛋白12 g/L、酵母提取物24 g/L、磷酸氢二钾9.4 g/L、磷酸二氢钾2.2 g/L)中,于37°C培养24–144 h。
【数据】培养基:LB、TB(酪蛋白12 g/L、酵母提取物24 g/L、K2HPO4 9.4 g/L、KH2PO4 2.2 g/L);温度:种子培养30°C、生产培养37°C;时间:种子18 h、生产24–144 h;转速:200 rpm;接种比例:1:50(v/v);碳源:4%甘油或50 mM LA;抗生素:卡那霉素50 μg/mL
2.6 生产4HV的补料分批发酵
补料分批发酵在5 L发酵罐(CNS,韩国大田)中以2 L规模进行。初始培养基为TB培养基,补充4%甘油和0.5%酵母提取物,补料源为50%甘油和20%酵母提取物。补料控制以维持甘油浓度在4%。pH控制以磷酸为酸、氨水为碱。温度维持37°C,pH调至7.0,溶解氧(DO)水平设定为20%。初始搅拌速率200 rpm,培养过程中提高至600 rpm以维持DO水平。
【数据】发酵罐:5 L(工作体积2 L);温度:37°C;pH:7.0;DO:20%;搅拌:初始200 rpm、最高600 rpm;初始甘油:4%;初始酵母提取物:0.5%;补料:50%甘油、20%酵母提取物;补料控制目标:甘油4%;酸:磷酸;碱:氨水
2.7 4-HVA的开环方法
4HVA通过GVL的皂化反应制备。将2 mL纯GVL(99%纯度)与2 mL蒸馏水(DW)混合。随后通过碱性水解开环:与2 mL蒸馏水混合后,加入10 N NaOH(2.5 mL)至pH 12。为将4HVA溶液加入培养基,用HCl将pH降至7.0,并加入适量DW配制成10 mL 20% 4HVA溶液。所得4HVA溶液经冻干,并在MSTFA衍生化后用气相色谱-质谱联用(GC-MS)确认。
【数据】原料:GVL 2 mL(99%纯度);DW:2 mL+2 mL;碱:10 N NaOH 2.5 mL;开环pH:12;中和pH:7.0;终浓度:20% 4HVA(10 mL);衍生化试剂:MSTFA;检测:GC-MS
2.8 贪铜菌PHB-4的PHA分析方法
培养结束后,细胞经离心(13,000 ×g;15 min)收获,沉淀用1 mL己烷和1 mL蒸馏水各洗涤两次。洗涤后的细胞转入玻璃瓶,冻干后记录细胞干重。甲醇解反应中,向瓶中加入等体积氯仿和15%(v/v)H2SO4甲醇溶液,100°C处理2 h。样品冷却至室温,向甲酯溶液中加入1 mL去离子水,涡旋5 s;将氯仿层转移至含无水Na2SO4的微量离心管中。样品用0.22 μm PVDF滤膜过滤后转入洁净硼硅酸盐瓶。随后,制备好的样品通过GC-FID系统(Young In Chromass 6500;韩国首尔)在分流模式(1/10)下分析,配备熔融石英毛细管柱(DB-FFAP,柱长30 m、内径0.320 mm、膜厚0.25 μm;Agilent Technologies,美国加州圣克拉拉)。载气为氦气,流速3.0 mL/min。柱温初始80°C保持5 min,然后以20°C/min升至220°C并保持5 min。进样口和FID温度分别维持210°C和230°C。
【数据】离心:13,000 ×g、15 min;洗涤:己烷1 mL×2、蒸馏水1 mL×2;甲醇解:氯仿与15%(v/v)H2SO4甲醇等体积、100°C、2 h;过滤:0.22 μm PVDF;色谱柱:DB-FFAP(30 m×0.320 mm×0.25 μm);载气:氦气3.0 mL/min;柱温:80°C 5 min→20°C/min→220°C 5 min;进样口:210°C;FID:230°C;分流比:1/10
2.9 恶臭假单胞菌KT2440中LA与4HV的分析方法
含LA和4HV的上清液经离心(13,000 ×g,15 min)收集。采用HPLC-RID分析恶臭假单胞菌KT2440的LA和4HV产量。分析使用配备示差折光检测器(RID)和Aminex HPX-87H离子柱(Bio-Rad,美国加州赫拉克勒斯)的HPLC系统(Shimadzu,日本京都)。流动相为硫酸(0.008 N),流速恒定0.6 mL/min,柱温维持60°C[18]。
【数据】离心:13,000 ×g、15 min;色谱柱:Aminex HPX-87H;流动相:0.008 N H2SO4;流速:0.6 mL/min;柱温:60°C;检测器:RID
2.10 统计分析
所有数据均为两次实验的代表值,使用MiniTab 18进行单因素方差分析(ANOVA)。p < 0.05表示具有统计学显著性。
【数据】重复数:两次实验;统计方法:单因素ANOVA(MiniTab 18);显著性阈值:p < 0.05
2.11 物理与热学特性的鉴定
使用万能试验机(UTM)测定各样品的拉伸强度、杨氏模量和断裂伸长率。样品裁成10×60 mm的条状,并据此定义标距。测试以10 mm/min的横梁速度进行。断裂伸长率(EL)按式(1)计算:(1)EL = (d_after − d_before)/d_before × 100,其中d表示样品断裂前后夹持夹具之间的距离。采用GPC测定数均摩尔质量(Mn)、重均摩尔质量(MW)和分散度。GPC使用HPLC系统(Young In Chromass,韩国首尔)进行,该系统包括环路进样器(Rheodyne 7725i)、双头等度泵系统(YL9112)、柱温箱(YL9131)及三根色谱柱(K-G 4A保护柱;K……)
【数据】样品尺寸:10×60 mm;横梁速度:10 mm/min;EL公式:(d_after − d_before)/d_before × 100;GPC系统:Rheodyne 7725i进样器、YL9112泵、YL9131柱温箱、K-G 4A保护柱;温度:原文未详述;时间:原文未详述
研究结果
3.1 向恶臭假单胞菌KT2440引入lvaE和lvaD后LA消耗与4HV生产的比较
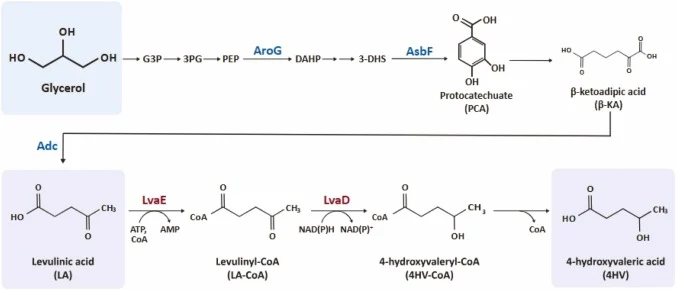
鉴于4HV由LA衍生而来,我们利用已工程化产LA的恶臭假单胞菌KT2440 HP301设计了生物4HV生产路径。LA首先由ATP和CoA依赖的酰基-CoA合成酶(LvaE)活化为乙酰丙酰-CoA,随后由4-羟基戊酰-CoA脱水酶(LvaD)以NAD(P)H还原为4HV-CoA[20];将lvaD和lvaE引入恶臭假单胞菌KT2440 HP301以增强从甘油生产4HV(图1)。
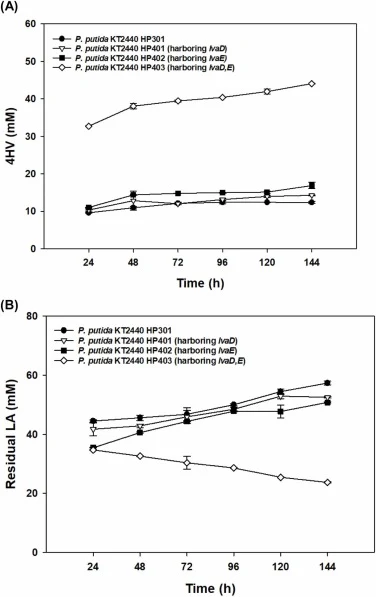
在补充LA的条件下,分析了分别或同时携带lvaD和lvaE的恶臭假单胞菌KT2440 HP301菌株的4HV生产和LA消耗。共表达lvaD和lvaE的菌株4HV滴度最高,在补充50 mM LA的TB培养基中144 h后达到44.15 mM。值得注意的是,供给的LA中残留23.88 mM,消耗26.12 mM(图2A、B)。相比之下,恶臭假单胞菌KT2440 HP301菌株及单独表达lvaE或lvaD的菌株4HV产量仅有轻微增加。这些结果表明lvaE和lvaD的协同表达增强了LA向4HV的转化,但大量残留LA说明实现LA完全转化仍需进一步路径优化。此前研究通过缺失lvaAB阻断4HV进一步分解代谢、并表达大肠杆菌硫酯酶TesB促进4HV-CoA水解为游离4HV,提高了恶臭假单胞菌KT2440的4HV产量[7,21]。因此,将tesB表达、lvaAB缺失与增强的4HV胞外输出相结合,可促进LA向4HV的连续代谢流并减少残留LA。此外,可利用不同强度的启动子和核糖体结合位点或改变表达构建体中的顺序来优化lvaE和lvaD的相对表达水平。由于lvaE表达对LA消耗和4HV生产的影响大于单独lvaD表达,可在维持足够lvaD活性的同时增强lvaE表达。最优表达平衡可通过比较所得构建体的4HV产量与胞内乙酰丙酰-CoA积累来确定。
【数据】4HV滴度:44.15 mM(144 h,50 mM LA);LA残留:23.88 mM;LA消耗:26.12 mM;培养基:TB;时间:144 h;单独表达lvaE/lvaD菌株:仅轻微增加(具体数值原文未详述)
3.2 通过lvaD和lvaE表达在恶臭假单胞菌KT2440中从甘油生产4HV
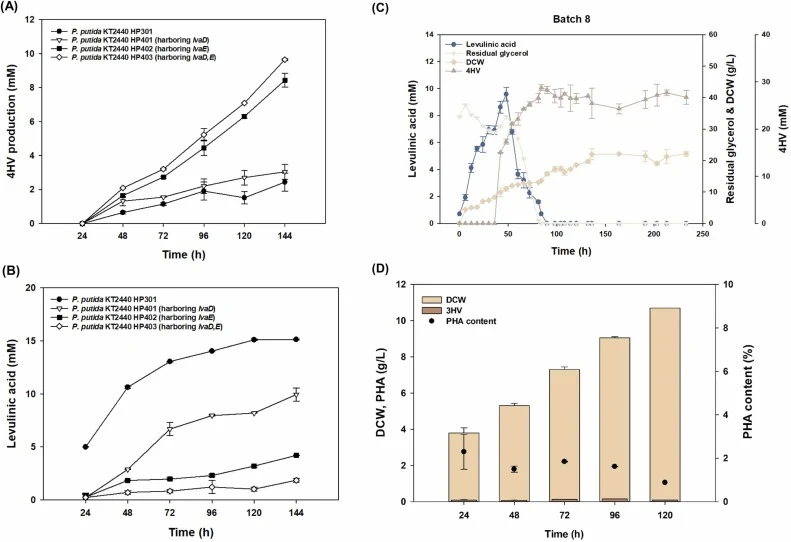
恶臭假单胞菌能高效利用甘油作为碳源进行代谢和贵重化学品生产。与有机酸或葡萄糖相比,甘油较不易受Crc/Hfq介导的碳分解代谢阻遏影响,从而最大限度减少对异源基因表达或代谢途径工程的调控干扰[22–24],并实现无溢流代谢物的稳定碳分配[25,26]。此外,葡萄糖主要经Entner–Doudoroff途径代谢,导致代谢流受限;而甘油转化为磷酸二羟丙酮(DHAP)后进入中心代谢,有利于在ED-EMP代谢网络中灵活再分配碳流[27,28]。甘油还可因其高还原状态增强NADH和NADPH的生成,有助于提高依赖氧化还原的生物合成途径效率,包括莽草酸途径、β-酮己二酸途径以及LA和4HV的下游生物合成[29–31]。基于这些观察,用分别或组合携带lvaD和lvaE的恶臭假单胞菌KT2440 HP301,在补充4%甘油(40 g/L)和0.5%酵母提取物的TB培养基中评估了从甘油生产4HV的能力(图3A)。共表达lvaE和lvaD的菌株恶臭假单胞菌KT2440 HP403在144 h后4HV滴度最高,为9.61 mM,而仅表达lvaE或lvaD的菌株分别积累8.15 mM和2.74 mM 4HV。恶臭假单胞菌KT2440 HP301积累的LA最高,144 h后为15.12 mM,而恶臭假单胞菌KT2440 HP403最低,144 h后仅残留1.73 mM(图3B)。为评估大规模生产4HV的潜力,使用恶臭假单胞菌KT2440 HP403在5 L生物反应器、2 L工作体积中进行233 h补料分批发酵;该菌株缺失pcaIJ和lvaR,aroG、asbF和adc整合于基因组pcaIJ位点,并共表达lvaD和lvaE(图3C)。初始培养基为补充4%甘油和0.5%酵母提取物的TB。随后供给含50%甘油和20%酵母提取物的补料液以维持甘油浓度在4%。LA产量随甘油补加而增加,48 h时最高达9.58 mM。然而此后由于甘油快速消耗,合成的LA逐渐减少。消耗的LA转化为4HV,84 h时最高积累至28.77 mM。发酵结束时产生22.15 mM 4HV。这表明工程菌株合成的LA通过lvaD和lvaE的联合活性被高效消耗并转化为4HV。这证明向产LA的恶臭假单胞菌KT2440中引入lvaD和lvaE,能够从廉价底物甘油有效生产高值平台分子4HV。考虑到4HV是PHA合成的关键单体,我们评估了恶臭假单胞菌以胞内PHA形式积累4HV的能力。尽管甘油来源的LA被高效转化为4HV,恶臭假单胞菌的胞内PHA积累仍相对较低。120 h后细胞干重(DCW)增至10.7 g/L,而仅积累0.09 g/L PHA,导致PHA含量和产率均低(图3D)。低PHA积累主要与恶臭假单胞菌KT2440天然PHA合酶的底物特异性有关。PhaC1和PhaC2属II类PHA合酶,优先聚合mcl单体,对4HV等scl单体活性有限[32,33]。因此,尽管HP403能高效从甘油生产4HV,其天然PhaC酶不太可能高效地将4HV衍生单体掺入PHA。此外,补料分批培养中甘油和酵母提取物的持续供给并未建立通常有利于PHA积累的碳过量、氮限制条件,使供给的碳流向生物质形成和4HV生产而非PHA储存[34]。再者,天然PhaZ对胞内PHA的降解可进一步限制PHA积累。PhaZ是恶臭假单胞菌KT2440的胞内mcl-PHA解聚酶,在甘油基培养下缺失phaZ可使PHA滴度提高约34%,PHA含量最高达47 wt%[35,36]。
【数据】4HV滴度:9.61 mM(HP403,144 h)、8.15 mM(仅lvaE)、2.74 mM(仅lvaD);LA积累:15.12 mM(HP301,144 h)、1.73 mM(HP403,144 h);培养基:TB+4%甘油(40 g/L)+0.5%酵母提取物;补料分批:233 h、5 L罐、2 L工作体积;LA峰值:9.58 mM(48 h);4HV峰值:28.77 mM(84 h);终点4HV:22.15 mM;DCW:10.7 g/L(120 h);PHA:0.09 g/L;phaZ缺失效应:PHA滴度+约34%、含量最高47 wt%
3.3 以化学LA和4HV在贪铜菌中生产P(3HB-co-3HV-co-4HV)三元共聚物的评估
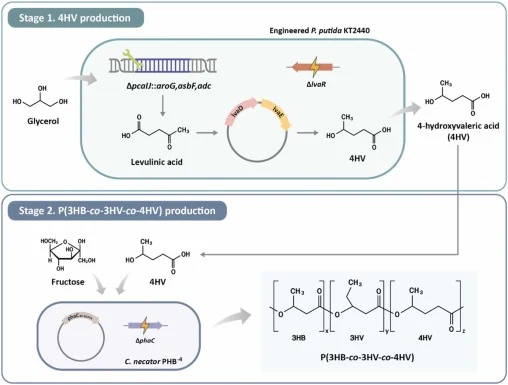
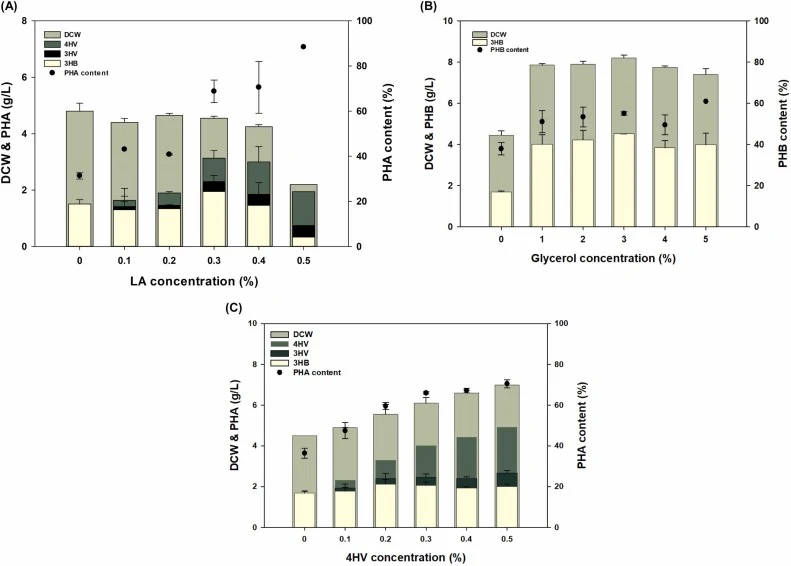
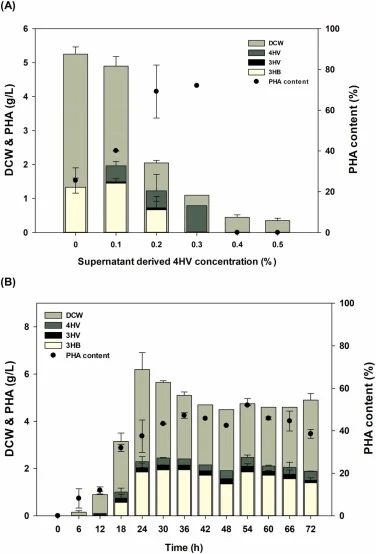
将4HV掺入PHA可降低熔融温度并提高韧性,而不影响降解温度[37,38]。然而,尽管含4HV聚合物可用石油来源前体(如GVL)合成,其实际应用仍受限[39]。已有若干研究在包括恶臭假单胞菌在内的多种微生物宿主中,以LA和葡萄糖为前体进行含4HV PHA的微生物生产(表4)。例如,一项在假单胞菌中以LA为底物的研究合成了P(3HB-co-3HV-co-4HV),但所得含3HV、4HV的PHA仅占DCW约40%[11]。假单胞菌中观察到的低PHA含量可归因于两个关键因素。第一,假单胞菌具有高PHA解聚酶活性,促进胞内积累PHA的快速降解,限制其作为稳定PHA储库的能力[40]。此外,由于II类PHA合酶的底物特异性,恶臭假单胞菌KT2440主要产生m……
【数据】含4HV PHA占DCW:约40%(文献[11]);本研究三元共聚物组成:3HB 54.49 mol%、3HV 6.98 mol%、4HV 38.53 mol%;PHA含量:60.21%;4HV添加浓度:0.2%(v/v);生物源4HV(0.1% v/v)4HV摩尔分数:约21.9%;化学源4HV:15.2%
讨论与解读
本研究在工程化恶臭假单胞菌KT2440 HP403中建立了从甘油合成4HV的新生物合成路线:在ΔpcaIJ ΔlvaR背景、整合aroG/asbF/adc的基础上共表达内源lvaD和lvaE。与单独表达lvaD或lvaE的菌株相比,双基因同时表达使LA消耗与4HV滴度均最大化。在40 g/L甘油培养中,HP403生产9.61 mM 4HV,分别比仅表达lvaE和仅表达lvaD的菌株提高1.18倍和5.56倍;补料分批发酵达到28.77 mM 4HV。为实现含4HV PHA的高水平积累,将生物源4HV用作贪铜菌PHB-4/phaC BP-M-CPF4的前体,在0.2%(v/v)添加量下获得组成为P(54.49 mol% 3HB-co-6.98 mol% 3HV-co-38.53 mol% 4HV)、PHA含量60.21%的三元共聚物。生物源4HV在0.1%(v/v)时给出的4HV摩尔分数约21.9%,高于化学源4HV的15.2%。4HV掺入增加使结晶度和熔融温度下降,同时改善力学性能。该研究首次展示了基于内源LA分解代谢操纵子在恶臭假单胞菌中从甘油生物合成4HV,并通过将恶臭假单胞菌介导的转化与贪铜菌聚合相耦合,建立了高含量4HV三元共聚物的可持续平台。
编译者解读:这条路线把"廉价甘油—LA—4HV—三元共聚物"串成一条链,亮点在于不依赖化学催化加氢,绕开了4HV易内酯化为GVL的热力学陷阱。但瓶颈同样清晰:胞内4HV-CoA水解与外排机制未强化,LA仍有残留;假单胞菌自身PhaC对4HV掺入效率低,只好把聚合环节"外包"给贪铜菌,两步法增加了工艺复杂度。后续若在HP403中补齐tesB/phaZ缺失并优化lvaE-lvaD表达比例,或可一步实现含4HV PHA的直接积累。
参考来源
期刊:New Biotechnology, 2026
DOI: 10.1016/j.nbt.2026.10.010
DOI: 10.1016/j.nbt.2026.10.010