来源:Bioengineering and physicochemical optimization of ergothioneine production by Aspergillus oryzae(New Biotechnology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
麦角硫因(EGT)是组氨酸的稀有含硫衍生物,在医药、食品和护肤领域应用广泛。本研究以工业丝状真菌米曲霉(Aspergillus oryzae)为底盘,先解析三个EGT合成酶(AoEgtA/B/C)的亚细胞定位,发现AoEgtB的N端113个氨基酸为内在无序区(IDR),其过表达会形成聚集体并拖累产量;随后从12株工程菌中筛出共过表达AoegtA与AoegtC的EgtACO为最优生产菌,在CZYP培养基中5天产量达699 mg/L,并进一步通过添加L-甲硫氨酸、硫酸锌、蓝光照射与重复接种将产量推至1895 mg/L,最后用马铃薯皮和甘薯皮实现低成本生产(293与308 mg/L)。
研究背景
EGT于1909年首次从麦角菌(Claviceps purpurea)中分离,后被证实存在于人及某些动物的红细胞中,但动物、人类和多数植物无法自行合成,只能从膳食中摄取并在特定组织累积。因其在神经退行性疾病、海马神经发生、年龄相关脑损伤、心血管疾病和糖尿病中的保护与治疗潜力,EGT被称为"长寿维生素"。2017年获得GRAS地位后,凭借强抗氧化与抗衰老特性,EGT成为众多护肤品中的多功能成分,尤其在修复皮肤屏障和刺激胶原合成方面发挥作用;其抗氧化活性通过中和自由基、清除活性氧保护细胞免受氧化应激。在食品工业中,EGT同样具备应用前景。面对日益增长的需求,利用微生物进行天然生产成为优化方向,而米曲霉凭借强大的生物工程潜力被视为有吸引力的生产工具。本研究即从基因组与理化因素两个层面考察其对米曲霉EGT产量的影响。
研究方法
2.1 DNA克隆与重组米曲霉菌株的构建
DNA克隆以野生型米曲霉RIB40菌株的基因组DNA为模板。本研究所用米曲霉菌株汇总于表S1。含PAotef1、egfp和AosC的质粒载体通过反向PCR扩增,所用引物为KI1(5’-CATAGTTGATAATTCACTGGCCG-3’)和KI2(5’-CTTGTACAGCTCGTCCATGC-3’),使用PrimeSTAR MAX DNA聚合酶(Takara)。随后以引物KI3(5’-GACGAGCTGTACAAGATGTCACCGTTGGCTCTTTC-3’)和KI4(5’-GAATTATCAACTATGCTAAAGATCCCGCACTAGGCG-3’)、PrimeSTAR GXL DNA聚合酶(Takara)扩增AoegtA,用In-Fusion HD Cloning Kit(Takara)与上述载体连接,构建pPtGEgAS。类似地,以KI5(5’-GACGAGCTGTACAAGATGATGTCTAATGTTACCCAATCAGCC-3’)和KI6(5’-GAATTATCAACTATGTTAATGTTGACTCCATTCGATCGTG-3’)扩增AoegtB,以KI7(5’-GACGAGCTGTACAAGATGACCACACCCTTCGGAG-3’)和KI8(5’-GAATTATCAACTATGTCAAATCTTCGCAGAAGAAACCC-3’)扩增AoegtC,分别与载体连接构建pPtGEgBS和pPtGEgCS。将pPtGEgAS、pPtGEgBS和pPtGEgCS分别转化NSlDN1菌株,得到GEgtA、GEgtB和GEgtC菌株。接下来为去除egfp,以pPtGEgAS为模板、引物KI1和KI14(5’-CGCACCACCTTCAAAATGTCACCGTTGGCTCTTTCTC-3’)进行反向PCR,再用In-Fusion连接所得片段,构建pPtEgAS。类似地,以pPtGEgBS和pPtGEgCS为模板,分别用引物KI1/KI15(5’-CGCACCACCTTCAAAATGATGTCTAATGTTACCCAATCAGC-3’)和KI1/KI16(5’-CGCACCACCTTCAAAATGACCACACCCTTCGGAG-3’)制备pPtEgBS和pPtEgCS。将pPtEgAS、pPtEgBS和pPtEgCS分别转化NSlDN1菌株,产生EgtAO、EgtBO和EgtCO菌株。此外,通过将AosC标记替换为niaD和ptrA标记,制得pPtEgBN、pPtEgCN和pPtEgCP。随后用pPtEgBN和pPtEgCN转化EgtAO菌株,分别生成EgtABO和EgtACO菌株。最后用pPtEgCP转化EgtABO菌株,生成EgtABCO菌株。
为将EGFP融合至C端,以pPtEgAN为模板、引物KI1和KI25(5’-CTAAAGATCCCGCACTAGGCG-3’)反向PCR扩增载体。随后用引物KI28(5’-GTGCGGGATCTTTAGATGGTGAGCAAGGGCGAG-3’)和KI31(5’-GAATTATCAACTATGCTTGTACAGCTCGTCCATGCC-3’)扩增egfp,用In-Fusion与上述载体连接,生成pPtEgAGN。类似地,AoegtB载体用引物KI1和KI26(5’-TTAATGTTGACTCCATTCGATCGTG-3’)扩增,AoegtC载体用引物KI1和KI27(5’-TCAAATCTTCGCAGAAGAAACCCC-3’)扩增,分别与egfp连接生成pPtEgBGN和pPtEgCGN。将pPtEgAGN、pPtEgBGN和pPtEgCGN分别转化NSlDS1菌株,生成EgtAG、EgtBG和EgtCG菌株。
pPtEgBS用引物FR19(5’-TTTGAAGGTGGTGCGAACTTTG-3’)和FR40(5’-ATGATGTCTAATGTTACCCAATCAGC-3’)及PrimeSTAR MAX DNA聚合酶反向PCR扩增。随后用引物FR38(5’-CGCACCACCTTCAAAATGGTCAGCAAGGGCGA-3’)和FR39(5’-AACATTAGACATCATCTTGTACAGCTCATCCATGCC-3’)扩增mcherry,用In-Fusion与上述载体连接,构建pPtChEgBS。接着,含PAotef1、mcherry和AosC的质粒载体用引物FR19和FR42(5’-ATGGTCAGCAAGGGCGAAG-3’)及PrimeSTAR MAX DNA聚合酶反向PCR扩增。然后用引物FR40和FR41(5’-GCCCTTGCTGACCATATGTTGACTCCATTCGATCGTG-3’)扩增AoegtB,用In-Fusion与上述载体连接,构建pPtEgBChS。为去除AoEgtB的内在无序区(IDR),用引物FR19和FR43(5’-CGCACCACCTTCAAAATGGGAACGCGACCGATCTATCT-3’)进行反向PCR,经In-Fusion连接,构建pPtEgBΔIDRChS。类似地,为删除AoEgtB的半胱氨酸脱硫酶(CD)结构域,用引物FR42和FR44(5’-GCCCTTGCTGACCATTTGGTCCATGACAGTGGCC-3’)进行反向PCR,经In-Fusion连接,构建pPtEgBΔCDChS。将pPtChEgBS、pPtEgBChS、pPtEgBΔIDRChS和pPtEgBΔCDChS分别转化NSlD1菌株,创建ChEgtB、EgtBCh、EgtBΔIDRCh和EgtBΔCDCh菌株。
【数据】模板:野生型米曲霉RIB40基因组DNA;质粒:pPtGEgAS、pPtGEgBS、pPtGEgCS、pPtEgAS、pPtEgBS、pPtEgCS、pPtEgBN、pPtEgCN、pPtEgCP、pPtEgAGN、pPtEgBGN、pPtEgCGN、pPtChEgBS、pPtEgBChS、pPtEgBΔIDRChS、pPtEgBΔCDChS;菌株:GEgtA、GEgtB、GEgtC、EgtAO、EgtBO、EgtCO、EgtABO、EgtACO、EgtABCO、EgtAG、EgtBG、EgtCG、ChEgtB、EgtBCh、EgtBΔIDRCh、EgtBΔCDCh;删除片段:AoEgtB N端IDR、CD结构域;原文未详述:酶用量与PCR循环参数
2.2 培养条件
米曲霉菌株在Czapek-Dox(CD)培养基上于30°C培养5天。按需补充0.0015%甲硫氨酸以弥补菌株营养缺陷。培养后向平板加入10 mL无菌0.01% Tween 20(SIGMA),用无菌涂布器轻缓混匀,将分生孢子收集于15 mL离心管(VIOLAMO),经Miracloth(Merck)过滤。混合物离心(2000 rpm,5 min),弃上清,向沉淀中加入1 mL无菌水混匀,4°C保存。将10⁶/100 μL分生孢子接种至20 mL DPY培养基(2%糊精、1%多聚蛋白胨、0.5%酵母提取物、0.5%磷酸二氢钾、0.05%七水硫酸镁)或Czapek酵母胨培养基(CZYP:1%葡萄糖、1%蛋白胨、0.2%酵母提取物、0.3%硝酸钠、0.1%磷酸二氢钾、0.05%七水硫酸镁、0.05%氯化钾、0.001%七水硫酸亚铁[31])中,置于100 mL三角瓶,150 rpm培养5天。
【数据】培养基:CD、DPY、CZYP;温度:30°C;时间:5天;甲硫氨酸:0.0015%;Tween 20:0.01%、10 mL;接种量:10⁶/100 μL;装液量:20 mL;转速:150 rpm;离心:2000 rpm、5 min;保存温度:4°C
2.3 HPLC提取与定量EGT
真菌菌丝经Miracloth过滤,用MilliQ水多次洗涤以去除残留生产培养基。去除MilliQ后,将载有菌丝的Miracloth冻干24 h。取0.1 g干燥菌丝置于15 mL管中,加2 mL无菌水,搅拌,98°C加热15 min。混合物于4°C、15,000 rpm离心5 min,回收上清。最后上清经0.45 μm滤膜过滤,收集滤液。EGT定量采用Prominence系统(Shimadzu),配备光电二极管阵列检测器(SPD-M20A)和COSMOSIL填充柱HILIC 4.6 × 250 mm(Nacalai tesque)。流动相使用前超声脱气30 min,为10 mM乙酸铵(A)和100%乙腈(B)。梯度程序:0 min,80% B;15 min,60% B;15.1–20 min,100% B;20.1–25 min,0% B;25.1–35 min,80% B。检测在30°C、流速1 mL/min、检测波长254 nm下进行。EGT标准品(Enzo Life Sciences BML-FR111)用于峰识别。
【数据】菌丝用量:0.1 g;提取液:2 mL无菌水;加热:98°C、15 min;离心:15,000 rpm、4°C、5 min;滤膜:0.45 μm;色谱柱:HILIC 4.6 × 250 mm;流动相:10 mM乙酸铵/100%乙腈;流速:1 mL/min;柱温:30°C;检测波长:254 nm;冻干:24 h
2.4 荧光显微镜观察
荧光显微镜采用ECLIPSE Ti2-A倒置显微镜(Nikon),配备CFI Plan Apo Lambda 100 ×物镜(数值孔径1.45)、DS-Qi2数码相机、LED-DA/FI/TX-A三带滤光片(Semrock:激发FF01–378/474/575;发射FF01–432/523/702;二色镜FF409/493/596-Di02)、LED光源X-LED1及微分干涉相差(DIC)。图像数据由NIS Elements AR软件(Nikon)采集。将约10⁴个观察菌株的分生孢子接种至200 µL相应液体培养基中,培养基置于多聚赖氨酸包被的玻璃底培养皿(Matsunami),30°C过夜培养后进行荧光显微镜观察。
【数据】孢子接种量:约10⁴个;培养基体积:200 µL;温度:30°C;时间:过夜;物镜:100 ×、NA 1.45;培养皿:多聚赖氨酸包被玻璃底
2.5 结构预测分析
为预测EGT合成酶的三维结构、活性位点与内在无序区,使用AlphaFold(https://alphafold.ebi.ac.uk/)、InterPro(https://www.ebi.ac.uk/interpro/)和IUPred3(https://iupred3.elte.hu/)[32]。AoEgtB(UniProt登录号A0A1S9DH15)的预测结构由AlphaFold蛋白结构数据库生成[33,34]。使用InterPro 109.0版分析,在"Applications"栏下选择全部选项进行结构域预测[35,36]。IUPred分析部分原文节选未完整给出。
【数据】数据库:AlphaFold、InterPro 109.0、IUPred3;蛋白:AoEgtB;UniProt:A0A1S9DH15;原文未详述:IUPred具体参数设置
研究结果
3.1 米曲霉EGT合成酶的亚细胞定位分析
EGT生产是一个多因素过程,受影响生产菌株及其产EGT能力的多种理化参数调控。生物工程虽是增强EGT生物合成的有力长期策略,但许多理化培养条件仍是提高产量的基础手段,控制培养条件可进一步放大生物工程取得的进展。为此,本研究先基于米曲霉EGT合成酶的亚细胞定位分析开展生物工程策略,再从构建的转化子中筛选最高产菌株,随后考察一系列理化参数以优化EGT生产。
近期,AoEgt1和AoEgt2被鉴定为米曲霉中粗糙脉孢菌(N. crassa)Egt-1和Egt-2的直系同源物[5,29]。本研究进一步鉴定出Egt-2的一个新米曲霉直系同源物,命名为AoEgtB(AO090020000619)。此外,将米曲霉Egt-1和Egt-2的直系同源物分别命名为AoEgtA(AO090012000265)和AoEgtC(AO090026000291)。首先,为分析这些合成酶的亚细胞定位,将EGFP融合至AoEgtA、AoEgtB和AoEgtC的N端或C端,构建在Aotef1启动子下过表达这些融合蛋白的菌株。荧光显微镜定位分析显示,AoEgtA和AoEgtC主要定位于细胞质(图1A)。相反,AoEgtB在N端融合EGFP时定位于细胞质,而C端融合时则发生聚集(图1A)。
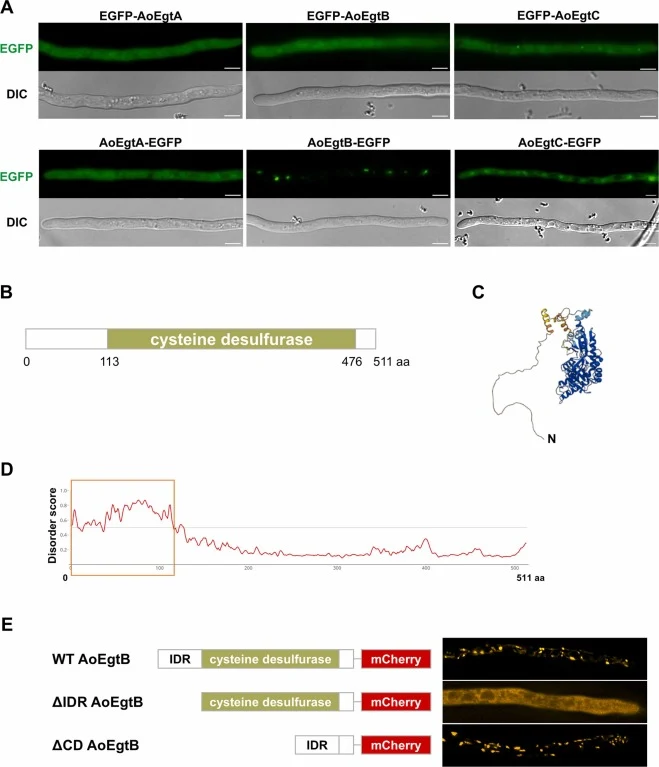
接下来对AoEgtB的定位作进一步分析。由于已知EGFP通常形成弱二聚体,推测AoEgtB-EGFP可能因融合蛋白结构而形成聚集体[44]。因此,改用单体mCherry作为荧光融合蛋白分析AoEgtB定位;与EGFP情形相同,AoEgtB-mCherry在细胞内观察到聚集(图S1A)。对AoEgtB-mCherry的延时观察显示,点状结构反复发生融合与分离(图S1B)。这些特性是相分离结构的特征,提示AoEgtB-mCherry形成此类结构。基于AoEgtB的一级结构进行三级结构预测,结果提示AoEgtB N端113个氨基酸残基不形成特定三维结构(图1B和1C)。此外,内在无序区(IDR)预测表明AoEgtB N端113个氨基酸残基确为IDR(图1D)。因此,删除AoEgtB N端113个氨基酸残基并将mCherry融合至C端观察时,蛋白均匀定位于细胞质(图1E)。进一步发现,仅将AoEgtB的IDR区域融合至mCherry即可导致聚集体形成(图1E)。这些结果表明,AoEgtB N端区域的IDR是聚集体形成所必需且充分的。
【数据】基因:AoegtA(AO090012000265)、AoEgtB(AO090020000619)、AoEgtC(AO090026000291);IDR长度:N端113个氨基酸残基;融合标签:EGFP、mCherry;启动子:Aotef1;观察条件:30°C过夜;聚集体行为:点状结构反复融合与分离
3.2 生产菌株筛选与EGT生产培养条件
本研究构建了在米曲霉中单独、两两或三个一组过表达各EGT合成基因(含或不含EGFP融合)的菌株。共构建12株菌,在DPY和CZYP两种不同生产培养基上测试其EGT生产能力(表1)。结果所有菌株均表现出不同的EGT生产能力。过表达AoEgtA、AoEgtB和AoEgtC的EgtABCO菌株,其EGT产量低于过表达AoEgtA和AoEgtC的EgtACO菌株。推测这是由于AoEgtB过表达引起的IDR效应导致聚集体形成,限制了细胞内酶促反应可用空间,阻碍了高效EGT生产。事实上,EgtACO菌株在DPY和CZYP培养基中EGT产量最高(分别为476.5和699 mg/L)。CZYP培养基中EGT产量更高可归因于硝酸钠、氯化钾和硫酸亚铁的存在,以及其组分丰富,实现了碳摄取与双重氮同化的平衡(有机氮来自酵母提取物和蛋白胨,无机氮来自硝酸钠)。此外,CZYP含可作为酶辅因子的金属以及维持渗透稳定性所需的氯化钾,从而增强酶活性并最终提高EGT产量。
培养周期是影响真菌次级代谢产物生产的关键因素。尤其随培养期延长,代谢物开始累积,营养物质被消耗。如表S2所示,延长培养期对EGT生产有负面影响,无论使用何种培养基,EgtACO菌株均在培养5天后记录到最高浓度。然而CZYP培养基中的EGT产量始终高于DPY培养基。此外,干重随培养期延长而下降。至第7天,营养物质耗竭,自溶开始,数天后形成孢子并进入饥饿状态,对EGT生产产生负面影响。这与先前研究一致:由于第6天进入死亡期,5天是米曲霉生产脂肪酸的最佳收获期[45]。
【数据】菌株数:12株;培养基:DPY、CZYP;EgtACO产量:DPY 476.5 mg/L、CZYP 699 mg/L;最优培养期:5天;EgtABCO产量:低于EgtACO;干重:随培养期延长下降;自溶起始:第7天;死亡期:第6天(文献[45])
3.3 米曲霉与乳酸菌共培养对EGT生产的影响
与细菌共培养,尤其是与乳酸菌(LAB)共培养,因其对真菌代谢产物生产的影响而成为常见研究策略。竞争与共存可提高酶活性、提升蛋白水平,有时还产生新代谢物[46]。先前研究中,米曲霉与植物乳植杆菌(Lactiplantibacillus plantarum)共培养获得最高氨基酸产量[47]。另有报道,米曲霉与L. plantarum共培养增强了酶生产力和发酵能力[48]。另一方面,有研究描述米曲霉Huniang 3.042(作为曲的主要生产菌)与戊糖片球菌(Pediococcus pentosaceus)WT9及黑曲霉(A. niger)3.350共培养,增强了酶活性并提高了功能成分含量[49]。本研究中,米曲霉EgtACO菌株分别与三种不同乳酸菌属共培养,即植物乳植杆菌JCM 1149、戊糖片球菌JCM 5885和乳酸乳球菌(Lactococcus lactis)JCM 7638。共培养选用DPY培养基而非CZYP培养基,因为DPY培养基中观察到更好的细菌生长(植物乳植杆菌JCM 1149、戊糖片球菌JCM 5885和乳酸乳球菌JCM 7638的OD600分别为1.65 ± 0.17、1.58 ± 0.18和1.43 ± 0.07,而CZYP培养基中三者OD600分别为1.60 ± 0.18、1.44 ± 0.15和1.01 ± 0.12)。暗条件培养结果显示,共培养使EGT产量略有下降(表2)。这可能归因于细菌快速生长消耗营养物质和氨基酸前体,轻微影响其供真菌利用及EGT生产。这一可忽略的变化表明,在这些条件下共培养未对EGT生产产生实质性抑制。蓝光对EGT生产的影响……(原文节选至此中断)。
【数据】共培养菌株:EgtACO + 植物乳植杆菌JCM 1149、戊糖片球菌JCM 5885、乳酸乳球菌JCM 7638;培养基:DPY;OD600:DPY中1.65 ± 0.17、1.58 ± 0.18、1.43 ± 0.07;CZYP中1.60 ± 0.18、1.44 ± 0.15、1.01 ± 0.12;共培养结果:EGT产量略降;原文未详述:共培养具体产量数值(见表2)
3.4 硫酸锌、L-甲硫氨酸、蓝光与重复接种的优化(据摘要与图注)
在生产培养基中补充硫酸锌可提高EgtACO菌株的EGT产量。培养在30°C、150 rpm、黑暗条件下好氧进行5天。
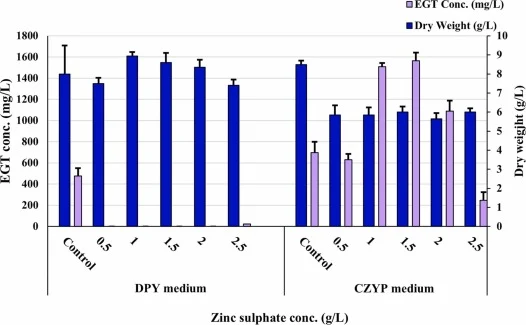
补充L-甲硫氨酸或硫酸锌均改善EGT生产(分别为1468.5或1565 mg/L)。此外,重复接种生产菌株EgtACO并结合蓝光培养是EGT生产的最优条件(1895 mg/L)。
【数据】L-甲硫氨酸添加产量:1468.5 mg/L;硫酸锌添加产量:1565 mg/L;重复接种+蓝光产量:1895 mg/L;培养条件:30°C、150 rpm、黑暗、5天(硫酸锌实验)
3.5 利用农业废弃物经济生产EGT
最后,在最优培养条件下利用农业废弃物——马铃薯皮和甘薯皮,实现了米曲霉EgtACO菌株的低成本EGT生产(分别为293和308 mg/L)。米曲霉EgtACO菌株在DPY(对照1)或CZYP培养基(对照2)中培养,30°C好氧静置培养5天。
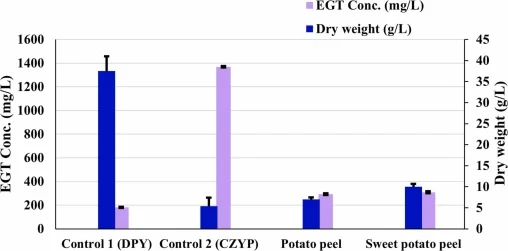
【数据】废弃物:马铃薯皮、甘薯皮;产量:马铃薯皮293 mg/L、甘薯皮308 mg/L;对照:DPY(对照1)、CZYP(对照2);培养:30°C、静置、5天
讨论与解读
本研究围绕米曲霉EGT生产,从基因组与理化两个层面展开优化。核心发现是AoEgtB含N端IDR,其过表达通过形成聚集体对EGT生产产生不利影响——这解释了为何三基因过表达的EgtABCO反而不及双基因的EgtACO。与乳酸菌共培养虽未提升EGT产量,但广谱抗菌活性不抑制生产菌生长,提示细菌素有助于降低长期培养的污染风险。据作者所知,这是首次利用乳酸菌共培养与重复接种优化EGT生产的报道。添加L-甲硫氨酸或硫酸锌分别将产量提升至1468.5与1565 mg/L,重复接种结合蓝光达1895 mg/L,而马铃薯皮与甘薯皮分别提供293与308 mg/L的低成本路线。作者鼓励开展进一步研究以推动这些策略的规模化应用。
编译者解读:该研究的亮点在于把"定位—结构—产量"串成一条线:先通过荧光融合锁定AoEgtB的IDR聚集问题,再据此取舍基因组合,避免了盲目叠加表达盒的常见陷阱。理化优化部分(金属离子、光照、重复接种)成本低、易放大,对工业化有直接参考价值。局限也明显:废弃物产量较优化培养基下降近一个数量级,且共培养与蓝光协同机制尚未在节选中给出分子层面解释。对合成生物学而言,IDR可作为底盘表达盒设计的"负调控元件"纳入考量。
参考来源
期刊:New Biotechnology, 2026
DOI: 10.1016/j.nbt.2026.09.002
DOI: 10.1016/j.nbt.2026.09.002