来源:A tri-modular biocatalytic workflow for PET valorization: From depolymerization and enhanced uptake to organized biosynthesis(Chemical Engineering Journal)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
PET生物升级回收受制于三个紧密耦合的环节:解聚、底物跨膜递送与生物合成转化。该研究构建了一条半集成、分步式的全细胞—酶法联合工作流:先在革兰氏阴性菌表面展示工程化PETase并共表达胞内MHET水解酶,获得高纯度TPA料流;再用游离FtpM将TPA瞬态酯化为MMT以绕过膜通透性瓶颈,胞内再生TPA后经CipB支架组织多酶级联转化为没食子酸。全流程最终以96%转化率产出4.8 mM没食子酸。
研究背景
PET是最常见、用量最大的聚酯塑料之一,其抗自然降解能力极强,废弃积累对生态与健康构成长期威胁。机械与化学回收能耗高,还可能带来二次污染,难以兼顾可持续减废与资源回收。温和条件下的生物降解因此被视为有前景的替代路线。目前已鉴定的PET水解酶包括IsPETase、TfCut2、LCC、TurboPETase等,多为角质酶或类角质酶水解酶,催化机制相似,将PET解聚为BHET、MHET、TPA和乙二醇的混合物。与此配套,MHETase及相关酯酶被开发用于消除抑制性中间体MHET、推动水解平衡向TPA和EG移动,从而提高PET生物降解与回收效率。不过,解聚只是起点——革兰氏阴性宿主对TPA的外膜通透性低,且下游合成途径效率有限,如何把解聚、递送与转化三步真正串起来,仍是PET生物升级回收的核心难题。
研究方法
2.1 通用材料、菌株与试剂
实验使用无定形PET膜(0.25 mm,Goodfellow GmbH,伦敦,英国)、商业PET粉末(DuPont,上海,中国)以及消费后PET瓶膜(农夫山泉)。聚己二酸-对苯二甲酸丁二醇酯(PBAT)粉末购自商业渠道。BHET、MHET、TPA、MMT、DMT、IPTG、刚果红(CR)及其他生化试剂购自上海阿拉丁生化科技股份有限公司(上海,中国)。所用细菌菌株包括大肠杆菌BL21(DE3)、大肠杆菌Shuffle T7、大肠杆菌DH5α和大肠杆菌MG1655(DE3)。
【数据】PET膜厚度:0.25 mm;商业PET粉末结晶度:48.1%;瓶源PET粉末结晶度:12.5%;消费后PET瓶膜结晶度:35.9%;无定形PET膜结晶度:5.67%;菌株:BL21(DE3)、Shuffle T7、DH5α、MG1655(DE3);试剂来源:上海阿拉丁;原文未详述其他试剂浓度
2.2 模块1:胞外PET解聚界面
#### 2.2.1 卷曲展示PETase生物催化剂的构建
PET解聚模块构建于大肠杆菌MG1655(DE3) ΔcsgA中,该菌株通过CRISPR/Cas9介导的染色体csgA缺失获得[28]。选择K-12 MG1655背景是为了便于构建ΔcsgA卷曲展示底盘。将TurboPETase、ThermoPETase、FAST-PETase和Thermobifida fusca角质酶(TfCut)[29]分别通过柔性连接肽与CsgA融合,克隆入pRSFDuet-1,分别得到MC-Turbo、MC-Thermo、MC-FAST和MC-TfCut(图S1A)。连接肽用于最小化空间干扰,同时保持独立折叠与底物可及性。随后将TfCa插入每个PETase质粒的第二个克隆位点,生成MCT-Turbo、MCT-Thermo和MCT-FAST(图S2A、C)。TfCa在胞内表达,不与CsgA融合。
【数据】宿主:E. coli MG1655(DE3) ΔcsgA;基因缺失方法:CRISPR/Cas9;载体:pRSFDuet-1;融合变体:MC-Turbo、MC-Thermo、MC-FAST、MC-TfCut;双功能变体:MCT-Turbo、MCT-Thermo、MCT-FAST;连接肽:柔性连接肽(序列原文未详述);温度:原文未详述;时间:原文未详述
#### 2.2.2 CsgA-PETase融合蛋白的表达
以大肠杆菌MG1655 ΔcsgA作为表面展示的宿主菌株。为缓解CsgA-PETase融合蛋白异源生产可能带来的折叠压力与聚集,共表达GroEL/GroES伴侣系统以促进正确折叠、具备组装能力的融合蛋白形成[30]。groES/groEL表达受L-阿拉伯糖诱导的araBAD启动子控制,以1 g L⁻¹ L-阿拉伯糖诱导。表达条件在含IPTG的LB和TB培养基以及ZYP自诱导培养基中筛选,并比较有无GroEL/GroES,最终选定含GroEL/GroES的ZYP自诱导。单菌落于20 mL LB中37 °C过夜培养,以2%(v/v)接种至含1 g L⁻¹ L-阿拉伯糖的ZYP培养基。培养物于37 °C、220 rpm培养至OD₆₀₀ = 1.5,转至20 °C,220 rpm继续培养24 h,采用改编自Studier[31]的乳糖自诱导策略。OD₆₀₀用SPECORD 250分光光度计(Analytik Jena,德国)测定,高密度样品稀释至测定OD₆₀₀ < 0.8并按稀释倍数校正,本研究报道的所有OD₆₀₀均按此流程测定。细胞收获(4000 ×g,15 min,4 °C),用50 mM磷酸缓冲液洗涤并重悬于同一缓冲液。
【数据】诱导剂:1 g L⁻¹ L-阿拉伯糖;接种量:2%(v/v);过夜培养:20 mL LB、37 °C;诱导前培养:37 °C、220 rpm至OD₆₀₀ = 1.5;诱导后培养:20 °C、220 rpm、24 h;收获条件:4000 ×g、15 min、4 °C;缓冲液:50 mM磷酸缓冲液;OD测定仪器:SPECORD 250;OD₆₀₀测定上限:< 0.8
#### 2.2.3 卷曲组装与表面展示表征
卷曲形成用刚果红染色评估[32]。细胞重悬于50 mM磷酸缓冲液(pH 7.5)至OD₆₀₀ ≈ 6.0。取1 mL等分样含50 μM CR,于25 °C、250 rpm孵育25 min,12,000 ×g离心10 min,测上清490 nm吸光度。含CR缓冲液与MG1655 ΔcsgA分别作为空白与阴性对照。CsgA-PETase提取时,洗涤后的细胞用膜蛋白提取试剂盒(生工生物,上海,中国)处理。沉淀重悬于提取缓冲液,超声30 s每循环(3–4个循环,间隔1 min),冰上孵育10 min,4 °C、12,000 ×g离心10 min。上清再冰上孵育10 min。收集下层膜蛋白相,用500 μL冰冷无菌水洗涤两次,SDS-PAGE分析。
【数据】CR浓度:50 μM;细胞浓度:OD₆₀₀ ≈ 6.0;染色条件:25 °C、250 rpm、25 min;离心:12,000 ×g、10 min;检测波长:490 nm;超声:30 s/循环、3–4循环、间隔1 min;膜蛋白离心:12,000 ×g、10 min、4 °C;洗涤:500 μL冰冷无菌水×2
#### 2.2.4 游离PETase的表达与纯化
将TurboPETase、ThermoPETase和FAST-PETase分别克隆入pET-30(a),在大肠杆菌Shuffle T7中表达,并与pGro7共表达。过夜培养物(2%,v/v)接种至含1 g L⁻¹ L-阿拉伯糖的ZYP培养基,37 °C培养至OD₆₀₀ = 1.5,转20 °C、220 rpm培养20 h。细胞收获(4000 ×g,15 min,4 °C),洗涤后重悬于缓冲液A(50 mM磷酸缓冲液,pH 7.5)。超声(200 W,开1 s/关1.5 s)后,裂解液澄清(12,000 ×g,1 h,4 °C),经0.22 μm膜过滤,在预平衡的HisTrap柱上纯化,平衡缓冲液为含10 mM咪唑的缓冲液A。用30 mM咪唑洗柱,300 mM咪唑洗脱蛋白。蛋白浓度用Bradford法测定[33]。
【数据】载体:pET-30(a);宿主:E. coli Shuffle T7;伴侣:pGro7;接种量:2%(v/v);L-阿拉伯糖:1 g L⁻¹;诱导前:37 °C至OD₆₀₀ = 1.5;诱导后:20 °C、220 rpm、20 h;超声功率:200 W、开1 s/关1.5 s;澄清:12,000 ×g、1 h、4 °C;滤膜:0.22 μm;平衡咪唑:10 mM;洗杂咪唑:30 mM;洗脱咪唑:300 mM;蛋白定量:Bradford法
#### 2.2.5 PET解聚与条件优化
PET底物包括无定形PET膜(结晶度5.67%)、商业PET粉末(48.1%)、瓶源PET粉末(12.5%)和消费后PET瓶膜(35.9%)。膜片冲压为0.8 cm圆片。反应体系为1 mL缓冲液中含一个PET圆片或10 mg PET粉末及CsgA-PETase全细胞催化剂,150 rpm孵育。以商业PET粉末或无定形PET膜为底物,从40 °C、pH 9.0、OD₆₀₀ = 1.0起始,依次优化温度(30–50 °C)、pH和细胞装载量。40 °C下的pH优化使用100 mM磷酸缓冲液(pH 7.0–7.5)、Tris-HCl(pH 8.0–9.0)或Gly-NaOH(pH 9.0–11.0),随后测试OD₆₀₀为0.6、1、2、4、6、8的条件。反应以等体积含0.2%甲酸的乙腈终止,12,000 ×g离心10 min,经0.22 μm膜过滤。样品按2.5节所述用HPLC定量。
【数据】PET圆片直径:0.8 cm;PET粉末用量:10 mg;反应体积:1 mL;转速:150 rpm;温度范围:30–50 °C;起始条件:40 °C、pH 9.0、OD₆₀₀ = 1.0;缓冲液:100 mM磷酸缓冲液(pH 7.0–7.5)、Tris-HCl(pH 8.0–9.0)、Gly-NaOH(pH 9.0–11.0);OD₆₀₀测试值:0.6、1、2、4、6、8;终止液:等体积含0.2%甲酸乙腈;离心:12,000 ×g、10 min;滤膜:0.22 μm
#### 2.2.6 重复使用性、储存稳定性与pH-stat放大
MC-Thermo的重复使用性在优化条件下以BHET为底物、连续10个10 min循环评估。每循环后离心回收细胞、洗涤并重悬于新鲜BHET反应液,残余活性以第1循环归一化为100%。储存稳定性方面,MC-Thermo细胞(OD₆₀₀ = 1)与纯化ThermoPETase分别于4、25或37 °C保存,每周以瓶源PET粉末在优化条件下测定残余活性。pH-stat放大反应为50 mL体系,含100 mM Gly-NaOH缓冲液,40 °C、150 rpm运行最长10 d。MCT-Thermo与MCT-Turbo分别用于瓶源PET粉末和消费后PET瓶膜,pH维持于8.5–9.0。样品按2.2.5节终止制备,按2.5节HPLC定量。
【数据】重复使用:10个循环、每循环10 min;储存温度:4、25、37 °C;储存时长:56天(每周测定);放大体积:50 mL;缓冲液:100 mM Gly-NaOH;温度:40 °C;转速:150 rpm;时长:最长10 d;pH:8.5–9.0
#### 2.2.7 PET结晶度测定
PET结晶度用差示扫描量热仪(DSC250,TA Instruments)测定。约5 mg样品置于铝盘,30 °C等温平衡2 min,随后以10 °C min⁻¹升温速率从30 °C升至300 °C。结晶度按下式计算:Xc % = (ΔHm − ΔHc)/ΔHf × 100%,其中ΔHm为实测熔融焓,ΔHc为冷结晶焓,ΔHf取100%结晶PET的140.1 J g⁻¹。
【数据】样品量:约5 mg;平衡:30 °C、2 min;升温:30→300 °C、10 °C min⁻¹;ΔHf:140.1 J g⁻¹;仪器:DSC250
2.3 模块2:TPA修饰与胞内再生
#### 2.3.1 FtpM与SAH核苷酶的表达与纯化
FtpM与SAH核苷酶基因分别克隆入pET-30(a)(图S3A、B),在大肠杆菌BL21(DE3)中表达。转化子在含卡那霉素的LB琼脂上筛选,37 °C于LB培养12 h,以2%(v/v)接种至新鲜LB。OD₆₀₀ = 0.6时以0.4 mM IPTG诱导,20 °C、220 rpm表达20 h。蛋白按2.2.4节所述流程纯化。
【数据】载体:pET-30(a);宿主:BL21(DE3);抗生素:卡那霉素;接种量:2%(v/v);诱导前培养:37 °C、12 h;诱导条件:OD₆₀₀ = 0.6、0.4 mM IPTG;诱导后:20 °C、220 rpm、20 h
#### 2.3.2 TPA至MMT的体外单酯化
纯化FtpM与SAH核苷酶用于胞外TPA单酯化。pH优化反应含2 mM TPA(来自稀释的PET解聚液)、4 mM SAM、10 μM FtpM(原文此处节选截断,后续参数未详述)。
【数据】TPA浓度:2 mM;SAM浓度:4 mM;FtpM浓度:10 μM;pH范围:原文节选截断未详述;温度:原文未详述;时间:原文未详述
研究结果
3.1 CsgA-PETase表面展示生物催化剂的构建与功能评价
废弃塑料作为储量丰富的替代资源,有望成为可持续生产高附加值精细化学品的原料。要充分释放这一潜力,关键前提是将固体PET高效解聚为可溶性单体以供给下游升级途径。为此,研究采用大肠杆菌卷曲菌毛的主要结构亚基CsgA——它能高效自组装为胞外纤维,实现目标酶的高密度展示。于是,通过敲除天然csgA基因对大肠杆菌MG1655(DE3)进行遗传改造,构建MG1655 ΔcsgA(图S5A、B),确保所有卷曲纤维仅由与目标重组蛋白融合的CsgA产生。随后,质粒编码的CsgA-PETase融合蛋白经天然CsgDEFG分泌途径表达并分泌至细胞表面(图1A)。为高效降解PET,将三种IsPETase变体(Turbo-PETase[8]、Thermo-PETase[36]和FAST-PETase[37])与CsgA融合,生成三种融合酶,所得工程菌分别命名为MC-Turbo、MC-Thermo和MC-FAST。在所评价的诱导策略中,乳糖基ZYP自诱导联合GroEL/ES共表达提供了最有效的表达条件,支持细胞稳健生长至OD₆₀₀ = 12,而其他测试条件细胞密度显著更低(图S1C)。在此诱导条件下,膜组分SDS-PAGE分析确认了CsgA-PETase融合蛋白的成功表达(图S1D)。电镜显示CsgA-PETase以卷曲介导方式组装于细胞表面(图1B及图S1E、F)。与对照菌株MG1655 ΔcsgA相比刚果红结合量增加,进一步证实CsgA-PETase的成功组装(图S1G)。
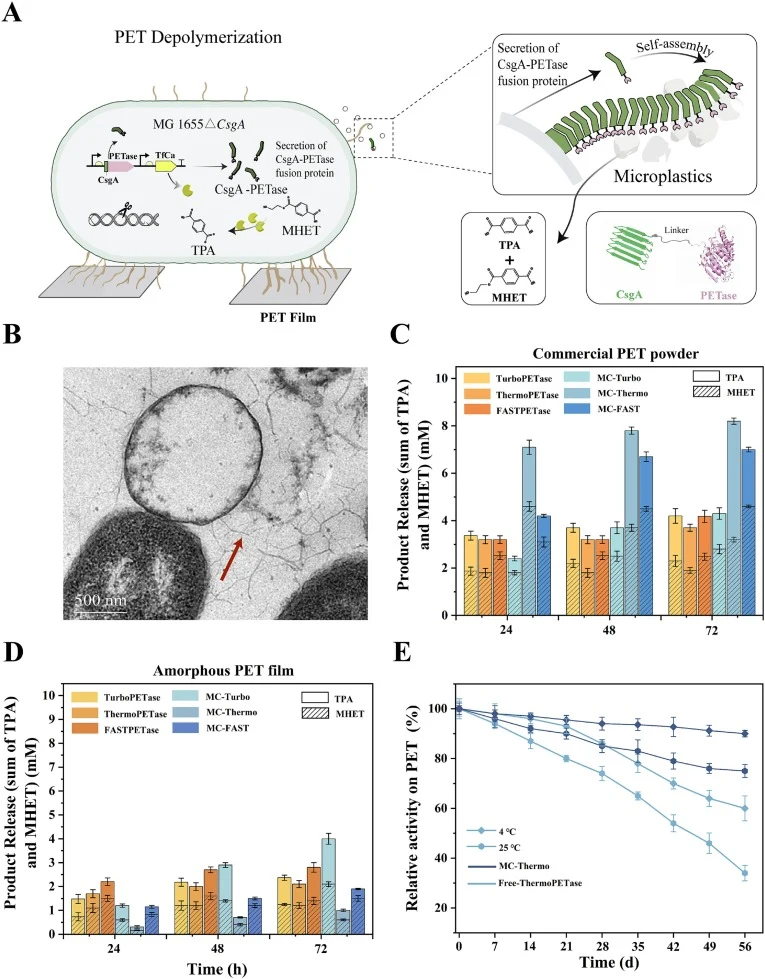
以商业PET粉末为模型底物,考察温度、pH和细胞装载量对三种CsgA-PETase工程菌催化PET解聚的影响(图S6)。结果显示,三种CsgA-PETase融合构建体大多在40–45 °C和pH 9.0–9.5达到最大催化性能(图S6A、B)。考虑持续全细胞生物催化的需求,最终选择40 °C和pH 9.0作为标准反应条件,以最大化长期操作稳定性与工艺稳健性。此外,以商业PET粉末和无定形PET膜为代表底物时,三种CsgA-PETase工程菌均在OD₆₀₀ = 1.0时表现最高降解效率,更高细胞密度反而损害催化性能(图S6C、D)。这一趋势与细胞聚集造成的传质限制一致[38]。在40 °C、72 h条件下,以两种不同形貌底物——商业PET粉末(结晶度48.1%)和无定形PET膜(结晶度5.67%)——系统表征了三种CsgA-PETase工程菌的长期PET解聚性能(图1C、D)。表面展示全细胞催化剂在上述优化条件下评价。作为对照,相应纯化游离酶在相同条件下反应,酶载量针对每种底物独立优化以最大化总可溶性产物生成(图S7)。总水解性能以TPA与MHET浓度之和评价。在各自最优催化剂载量条件下,MC-Thermo和MC-FAST经72 h从商业PET粉末分别产生约8 mM和7 mM可溶性产物,总可溶性产物滴度分别为相应纯化游离酶系统的2.2倍和2.3倍(图1C)。相比之下,MC-Turbo活性与游离酶相当。然而以无定形PET膜为底物时,仅MC-Turbo获得提高的产物产量,72 h达4.0 mM,较游离TurboPETase提高1.7倍;另外两种融合酶产物产量则低于其游离 counterparts(图1D)。这些性能差异凸显了表面展示系统的复杂动力学。表面展示变体的差异性能与酶—底物形貌相互作用及传质动力学密切相关。表面展示变体在碎片化商业粉末上的增强性能,可能归因于卷曲支架上聚集的高局部酶密度,促进了在高可及、高比表面积粉末颗粒上的协同降解。反之,在平整完整的无定形膜上,全细胞催化剂的庞大体积引入空间位阻与传质限制,可能限制锚定酶的表面可及性,从而在某些情况下导致产物产量低于自由扩散的纯化酶。尽管如此,产物谱显示这些反应条件下MHET仍占总可溶性产物的约30–40%。MHET积累会竞争性抑制PETase催化的PET水解,并降低下游升级可用的TPA[9,39]。为评价表面展示系统的操作稳健性,以MC-Thermo为代表模型考察长期耐久性。4 °C和25 °C储存56天后,MC-Thermo保持初始活性的78–90%,而游离ThermoPETase对照仅保持35–60%(图1E)。此外,MC-Thermo在连续10个10 min BHET降解循环后仍保持初始活性的80%以上(图S8)。这些结果表明,CsgA介导的全细胞系统在储存及反复回收再利用过程中有效保持酶活性,支持其作为可重复使用生物催化平台的潜力。
【数据】细胞生长OD₆₀₀:12(ZYP自诱导+GroEL/ES);最适温度:40–45 °C;最适pH:9.0–9.5;选定条件:40 °C、pH 9.0;最优细胞装载:OD₆₀₀ = 1.0;商业PET粉末产物:MC-Thermo约8 mM、MC-FAST约7 mM(72 h);游离酶对比倍数:2.2倍、2.3倍;无定形膜:MC-Turbo 4.0 mM(72 h)、较游离酶1.7倍;MHET占比:总可溶性产物30–40%;储存56天残余活性:MC-Thermo 78–90%、游离酶35–60%;重复使用:10循环后>80%
3.2 PET解聚的TPA主导产物
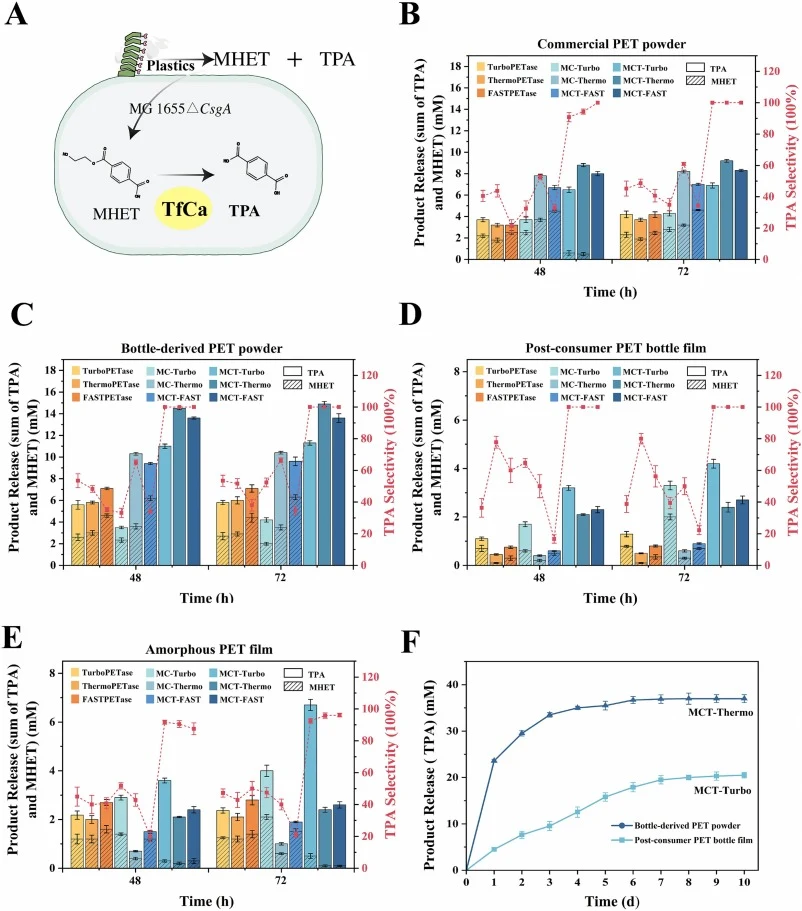
为缓解上述MHET问题,系统评价了IsMHETase[5]、Kls-MHETase[9]和TfCa[10]三种MHET水解酶。这些候选中,TfCa在构建的全细胞催化系统中对MHET表现出最高催化效率(图S2D)。据此,选择TfCa与PETase共表达于三种优化的CsgA-PETase工程菌,生成三种同步双功能级联生物催化剂,命名为MCT-Turbo、MCT-Thermo和MCT-FAST。相应游离PETase及不含TfCa的MC菌株作为对照。在该集成平台中,TfCa的第一个明确作用是在大肠杆菌MG1655(DE3)胞内高效水解进入细胞的中间体MHET,从而解除对表面展示PETase的产物抑制。为评估胞内TfCa共表达对解聚效率与产物分布的影响,首先在商业PET粉末和无定形PET膜上评价级联菌株,相应游离PETase及其无TfCa counterparts作为对照。在商业PET粉末上,MCT菌株72 h后总可溶性产物始终高于两个对照组(图2B)。在无定形PET膜上,TfCa共表达最显著改善MCT-Turbo性能,而对MCT-Thermo和MCT-FAST影响相对温和(图2E)。不同酶变体在不同PET材料上的活性差异,可能源于局部酶(原文此处节选截断,后续内容未详述)。
【数据】候选MHET水解酶:IsMHETase、Kls-MHETase、TfCa;最优:TfCa;级联菌株:MCT-Turbo、MCT-Thermo、MCT-FAST;评价时长:72 h;商业PET粉末:MCT组总可溶性产物高于对照组(具体数值原文节选截断未详述);无定形膜:MCT-Turbo改善最显著(具体数值原文节选截断未详述)
讨论与解读
该研究建立了一条三模块的PET-to-product工作流,把解聚、胞内TPA递送与空间组织化升级三个层面协同起来。卷曲纤维展示PETase并胞内共表达TfCa的解聚模块,有效抑制了抑制性MHET积累,从多种消费后PET材料获得高纯度TPA料流(纯度>98%,pH 8.5–9.0条件下瓶源粉末约35 mM、瓶膜19.5 mM)。针对革兰氏阴性宿主TPA通透性低的问题,采用可逆的TPA修饰—再摄取策略:胞外瞬态单酯化为MMT后被动进入细胞,再由胞内TfCa水解再生TPA,无需破坏性膜透化即可显著提升底物可用性(10 mM TPA在1 h内近乎完全转化为MMT)。将这一递送方式与CipB介导的级联空间组织耦合,系统最大化级联效率与产物产量,最终以96%转化率产出4.8 mM没食子酸。作者也指出,当前瞬态酯化步骤尚属体外概念验证,为探索完全整合的体内流程奠定概念基础,实现该体系仍需进一步研究。
编译者解读:该工作的巧思在于把"膜通透性"当作可工程化的独立模块来处理——用可逆酯化替代传统透化或转运蛋白改造,避免了对细胞生理的破坏,思路干净。三模块分步集成的代价是流程复杂度上升,FtpM酯化仍需外源SAM与纯化酶,离"一锅法"还有距离。对合成生物学而言,其价值在于示范了"底物化学修饰—胞内再生"这一通用策略可迁移至其他难透过膜的芳香族底物。
参考来源
期刊:Chemical Engineering Journal, 2026
DOI: 10.1016/j.cej.2026.183225
DOI: 10.1016/j.cej.2026.183225