来源:The LtrA protein positively regulates borrelidin biosynthesis in Streptomyces rochei by modulating borB expression and interacting with key cellular proteins(International Journal of Biological Macromolecules)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
Borrelidin是一种具有强效抗卵菌活性的聚酮类代谢物,其生物合成调控机制长期不明。本研究以具有良好生防潜力的Streptomyces rochei JK1为对象,通过紫外诱变筛选获得borrelidin合成缺失突变体60 s1,经全基因组重测序锁定LtrA为正调控因子。研究进一步通过部分截短与过表达验证其功能,并揭示LtrA通过上调borB表达、与FtsK/SpoIIIE及Crp/Fnr互作整合基因组稳定性与cAMP信号通路。ltrA过表达使borrelidin产量提升78.84%,为微生物源农药的遗传改良提供了可操作靶点。
研究背景
链霉菌是天然抗生素和生物活性次级代谢产物的主要生产者,其次级代谢调控机制一直是微生物学与合成生物学关注的核心问题。Borrelidin作为聚酮类代谢物,对疫霉等多种病原卵菌具有显著拮抗作用,在土传病害生物防治中应用价值突出。然而,borrelidin生物合成的调控网络——尤其是关键调控基因与分子机制——长期不清楚,严重制约了通过基因工程提升生产菌株合成效率与生防性能的尝试。
Streptomyces rochei JK1是一株具有良好生防潜力的放线菌,通过产生borrelidin等活性代谢物抑制多种土传卵菌,并能稳定定殖于作物根际与根组织,其发酵滤液具有稳定的抑制活性,对减少化学农药依赖、推动生物农药开发具有价值。该菌株对生姜根腐病病原菌Pythium myriotylum表现出显著拮抗活性。生姜作为全球重要经济作物,其生产长期受到根腐病的严重威胁。在此背景下,解析JK1中borrelidin合成的调控枢纽,既是基础科学问题,也是工程化改造的前提。
研究方法
2.1 菌株、质粒与培养条件
Streptomyces rochei JK1保藏于中国普通微生物菌种保藏管理中心(CGMCC No. 17115)。所有链霉菌菌株在28 °C下于高氏一号琼脂培养基上培养,并在28 °C、180 rpm条件下于玉米粉液体培养基中发酵;Pythium myriotylum SWQ7在V8琼脂培养基上培养。大肠杆菌DH5α用于质粒构建,大肠杆菌ET12567/pUZ8002作为大肠杆菌—链霉菌属间接合转移的供体菌,大肠杆菌Rosetta(DE3)用于蛋白表达。实验所需培养基包括:高氏一号培养基(20 g/L可溶性淀粉、0.5 g/L NaCl、0.5 g/L K₂HPO₄、0.5 g/L MgSO₄·7H₂O、0.01 g/L FeSO₄·7H₂O、1 g/L KNO₃、15 g/L琼脂)、玉米粉培养基及其三种改良版本(均含2 g/L NaCl、3 g/L (NH₄)₂SO₄、2 g/L CaCO₃、10 g/L玉米粉,原始版本及改良玉米粉培养基1、2、3的碳源分别为10 g/L蔗糖、果糖、木糖和葡萄糖)、基本培养基(MM:0.5 g/L L-天冬酰胺、0.5 g/L K₂HPO₄、0.3 g/L KOH、0.2 g/L MgSO₄·7H₂O、0.01 g/L FeSO₄·7H₂O、15 g/L琼脂、10 g/L 50%葡萄糖)、V8培养基(100 mL/L V8汁、1 g/L CaCO₃、15 g/L琼脂)、LB培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、15 g/L琼脂)和2×YT培养基(16 g/L胰蛋白胨、10 g/L酵母提取物、5 g/L NaCl)。
【数据】菌株:Streptomyces rochei JK1(CGMCC No. 17115)、Pythium myriotylum SWQ7、E. coli DH5α、ET12567/pUZ8002、Rosetta(DE3);培养温度:28 °C;转速:180 rpm;高氏一号琼脂:可溶性淀粉20 g/L、NaCl 0.5 g/L、K₂HPO₄ 0.5 g/L、MgSO₄·7H₂O 0.5 g/L、FeSO₄·7H₂O 0.01 g/L、KNO₃ 1 g/L、琼脂15 g/L;改良玉米粉培养基碳源:蔗糖/果糖/木糖/葡萄糖各10 g/L;MM:L-天冬酰胺0.5 g/L、K₂HPO₄ 0.5 g/L、KOH 0.3 g/L、MgSO₄·7H₂O 0.2 g/L、FeSO₄·7H₂O 0.01 g/L、琼脂15 g/L、50%葡萄糖10 g/L;V8:V8汁100 mL/L、CaCO₃ 1 g/L、琼脂15 g/L;LB:胰蛋白胨10 g/L、酵母提取物5 g/L、NaCl 10 g/L、琼脂15 g/L;2×YT:胰蛋白胨16 g/L、酵母提取物10 g/L、NaCl 5 g/L
2.2 核酸提取与cDNA合成
基因组DNA采用Quick Plant Genomic DNA Extraction Kit(北京庄盟国际生物基因科技有限公司)提取,总RNA采用Ultra-Pure RNA Extraction Kit(康为世纪生物科技有限公司)提取。DNA与RNA的纯度/浓度通过分光光度法测定260 nm/280 nm及260 nm/230 nm吸光度比值评估。cDNA合成采用Evo M-MLV Reverse Transcription Premix Kit(湖南艾科瑞生物科技有限公司)完成。
【数据】检测波长:260 nm/280 nm、260 nm/230 nm;试剂盒:Quick Plant Genomic DNA Extraction Kit、Ultra-Pure RNA Extraction Kit、Evo M-MLV Reverse Transcription Premix Kit;其他参数:原文未详述
2.3 紫外(UV)诱变与抑制活性改变突变体的筛选
制备Streptomyces JK1孢子悬液并调整至约10⁸ cfu/mL。悬液以30 W紫外灯(距离20 cm)照射60 s(诱变剂量)。诱变后悬液避光放置2 h,梯度稀释后涂布于平板培养基,28 °C培养2–3天。随机挑取约2000个单菌落,采用平板对峙法筛选对Pythium myriotylum拮抗活性改变的突变体。复筛时,将抑菌圈显著增大或减小的突变体用相同方法重新评估以确认表型。
【数据】孢子悬液浓度:约10⁸ cfu/mL;紫外灯功率:30 W;照射距离:20 cm;照射时间:60 s;避光时间:2 h;培养温度:28 °C;培养时间:2–3天;筛选单菌落数:约2000个
2.4 全基因组测序与突变检测
对紫外诱变获得的一株拮抗活性差异突变体(60 s1)进行全基因组重测序。经摇瓶发酵复筛后,将其高纯度基因组DNA送至南京奥维森基因科技有限公司,在Illumina NovaSeq 6000平台测序(150 bp双端[PE150] reads,测序深度≥100×)。原始测序数据用Fastp进行质控,比对至野生型JK1基因组,并使用breseq计算流程预测突变。该流程可检测点突变、缺失及可能指示IS元件插入或其他重排的新序列连接,具体如其在线文档所述。大片段重复与扩增通过检查各基因组读段覆盖深度人工预测。随后,突变位点经PCR扩增;PCR产物由生工生物工程(上海)股份有限公司测序,DNA/推导氨基酸序列通过SnapGene比对,以确认错义、移码或无义突变。原始全基因组重测序数据已存入NCBI Sequence Read Archive(SRA),BioProject登录号PRJNA1463974。
【数据】测序平台:Illumina NovaSeq 6000;读长:150 bp PE150;测序深度:≥100×;质控工具:Fastp;突变预测流程:breseq;SRA登录号:PRJNA1463974;其他参数:原文未详述
2.5 Borrelidin的高效液相色谱(HPLC)分析
取1 mL发酵液转入1.5 mL离心管,离心沉淀菌丝体。弃上清,收集的菌丝沉淀与200 μL 50%甲醇混合。超声溶解提取胞内代谢物后,12000 rpm离心15 min。取100 μL所得上清作为供试品溶液,进样HPLC系统测定峰面积。对照品方面,取5 μL Borrelidin溶液(50.00 μg/mL)进样HPLC系统测定峰面积。另外,取70 μL供试品进样HPLC系统,测定其峰面积。
【数据】发酵液取样量:1 mL;提取溶剂:200 μL 50%甲醇;离心转速:12000 rpm;离心时间:15 min;供试品进样量:100 μL(峰面积测定)/70 μL;对照品:Borrelidin 50.00 μg/mL、进样5 μL;其他参数:原文未详述
2.6 RT-qPCR基因表达分析
实时定量聚合酶链反应(RT-qPCR)使用LightCycler® 96 System(罗氏集团,瑞士)和SYBR Green Pro Taq HS Premix qPCR Kit(湖南艾科瑞生物科技有限公司)进行。所有RT-qPCR数据通过Microsoft Excel中的2−ΔΔCt法分析,目标基因循环阈值(Ct)以参考基因16S rRNA归一化。基因表达分析引物序列列于表S1。每个反应设三个生物学重复和三个技术重复。
【数据】仪器:LightCycler® 96 System;试剂盒:SYBR Green Pro Taq HS Premix qPCR Kit;分析方法:2−ΔΔCt法;参考基因:16S rRNA;重复数:3个生物学重复+3个技术重复;其他参数:原文未详述
2.7 60 s1的转录组分析
将Streptomyces接种于G1液体培养基,28 °C、180 rpm振荡培养48–72 h。随后取5–10 mL菌液于4 °C、8000 ×g离心5 min收集菌丝体,用磷酸盐缓冲液(PBS)洗涤两次,液氮速冻,−80 °C保存并于干冰运输。总RNA采用改良CTAB法提取:液氮研磨破碎细胞壁,随后与65 °C预热的CTAB裂解缓冲液(含2% β-巯基乙醇)孵育20 min。经氯仿/异戊醇抽提、异丙醇沉淀和75%乙醇洗涤后,RNA溶于无RNase水。Agilent 2100检测RIN >7.5、23S/16S ≈ 2:1;Qubit定量显示≥50 ng/μL、总RNA ≥1 μg。使用MGIEasy试剂盒(探针法)去除rRNA并富集mRNA(比例>30%)。mRNA经Mg²⁺片段化至200–300 bp;以随机六聚体合成链特异性cDNA。经末端修复、加A尾、接头连接及12–15个循环PCR构建文库(主峰300–400 bp,浓度≥2 nM),随后在DNBSEQ G400/T7平台进行PE100/150测序(10–30 M clean reads,Q30 ≥ 94%)。通过SOAPnuke(v1.6.5)过滤获得clean data。Bowtie2(v2.4.5)用于参考基因组比对(比对率>80%);TPM由RESM(v1.3.1)计算。StringTie(v2.2.1)预测新转录本;DESeq2筛选DEG(FC ≥2,adj P ≤ 0.001)。结合KEGG/COG/GO注释与antiSMASH次级代谢产物簇预测,采用phyper富集分析(Q ≤ 0.05)和Mfuzz(v2.60.0)分析时序表达模式。原始转录组测序数据已存入NCBI SRA,BioProject登录号PRJNA1463149。
【数据】培养温度:28 °C;转速:180 rpm;培养时间:48–72 h;离心:4 °C、8000 ×g、5 min;菌液量:5–10 mL;CTAB裂解孵育:65 °C、20 min、2% β-巯基乙醇;RIN:>7.5;23S/16S:≈2:1;RNA浓度:≥50 ng/μL;总RNA量:≥1 μg;mRNA比例:>30%;片段化大小:200–300 bp;文库主峰:300–400 bp;文库浓度:≥2 nM;PCR循环:12–15;测序平台:DNBSEQ G400/T7;clean reads:10–30 M;Q30:≥94%;比对率:>80%;DEG标准:FC ≥2、adj P ≤ 0.001;富集标准:Q ≤ 0.05;软件版本:SOAPnuke v1.6.5、Bowtie2 v2.4.5、RESM v1.3.1、StringTie v2.2.1、Mfuzz v2.60.0;SRA登录号:PRJNA1463149
2.8 遗传操作与载体构建
所有遗传构建体均采用标准分子克隆技术创建。ltrA敲除载体以pKC1139为骨架构建。
【数据】骨架质粒:pKC1139;其他参数:原文未详述
研究结果
3.1 LtrA被鉴定为borrelidin合成的关键正调控因子
为鉴定控制野生型JK1拮抗活性的调控元件,我们对JK1单孢子悬液施加不同时长紫外诱变构建突变体库。所得突变体逐一通过针对Pythium myriotylum的平板对峙实验和borrelidin产量的HPLC分析进行筛选,由此获得突变体60 s1。该突变体完全丧失了对P. myriotylum的抑制作用(图1A)。HPLC分析证实该突变体中borrelidin产量低于检测限(图1B)。对60 s1的全基因组重测序仅发现三个基因存在点突变:arr、rpoB和ltrA。ltrA编码序列第122 bp处的点突变(C变为T)产生提前终止密码子,导致翻译提前终止,形成截短的无功能LtrA蛋白。arr与rpoB的详细点突变信息见文件S2。据先前报道,arr与rpoB是与利福平抗性相关的已知基因,且突变体60 s1同样表现出Rif抗性(图1C)。在利福平选择压力下,我们此前筛选到一株突变株JK1–4,全基因组测序证实其携带与突变体60 s1相同的arr和rpoB点突变,但ltrA无突变。重要的是,JK1–4仍正常产生borrelidin(图1D)。因此,我们推断ltrA是borrelidin生物合成的关键调控因子。
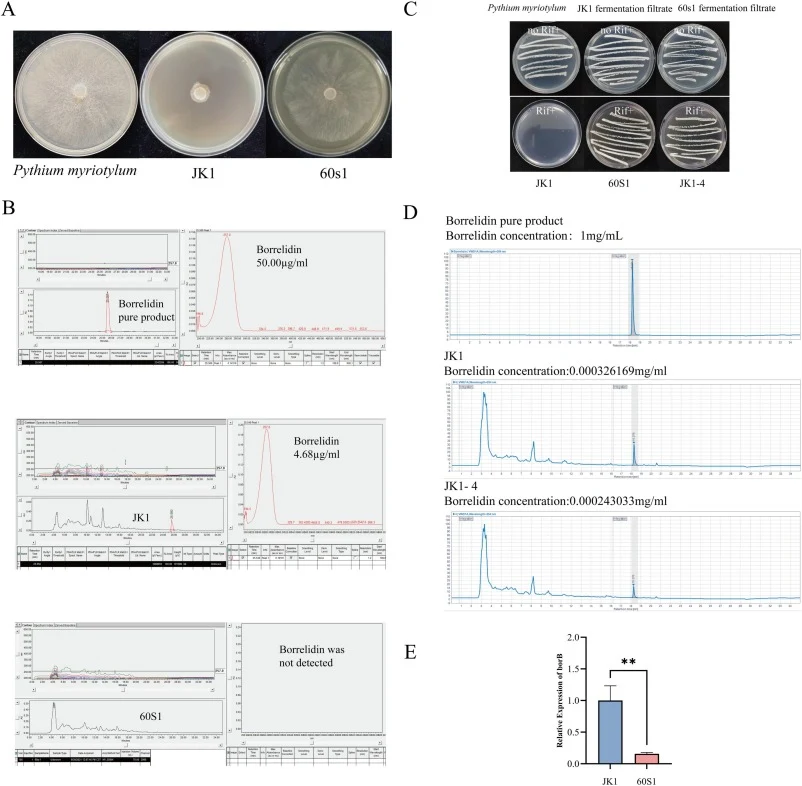
为进一步验证LtrA的功能,我们分析了borB的表达——borB是borrelidin生物合成基因簇中的关键基因,编码II型硫酯酶,负责水解错误酰基中间体以保证途径保真性。RT-qPCR显示,与野生型JK1相比,LtrA缺陷的60 s1中borB转录水平显著下调(图1E)。这表明LtrA缺失通过抑制borB表达阻碍borrelidin骨架的正确组装与释放,最终中止其生物合成。
【数据】突变体:60 s1;突变位点:ltrA编码序列第122 bp处C→T;突变基因:arr、rpoB、ltrA;borrelidin产量:低于检测限;borB转录水平:显著下调(具体倍数原文未详述);其他参数:原文未详述
3.2 突变体60 s1的转录组分析揭示广泛的代谢重编程
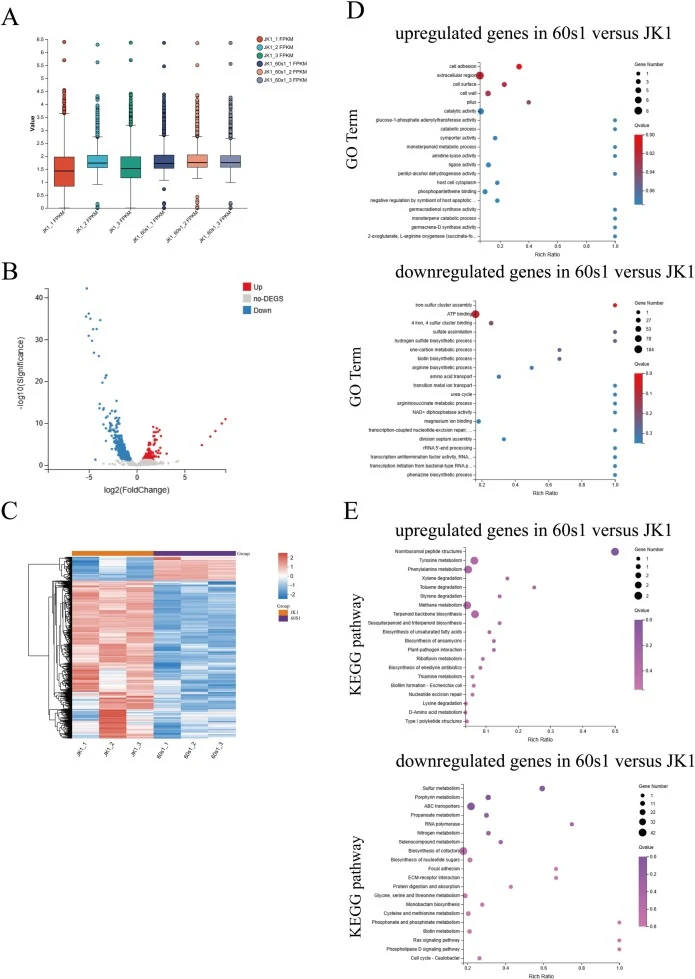
为系统解析LtrA缺陷的分子后果,我们对野生型JK1与突变体60 s1进行了比较转录组分析。共鉴定出960个差异表达基因(DEG),其中126个上调、834个下调(图2A、B)。基因表达模式的层次聚类清晰区分了JK1与60 s1样本,证实LtrA缺失引发全局转录重编程(图2C)。Gene Ontology(GO)与Kyoto Encyclopedia of Genes and Genomes(KEGG)富集分析显示,这些DEG广泛参与核心生物学过程,包括细胞代谢、应激响应、信号转导和转录调控(图2D、E)。高差异表达基因的完整列表,包括Gene ID、FPKM值、log₂倍数变化、P值和Q值,见表S3。
【数据】DEG总数:960个;上调:126个;下调:834个;分析工具:GO、KEGG富集;其他参数:原文未详述
3.3 ltrA基因的部分缺失与过表达验证其对borrelidin生物合成的调控作用
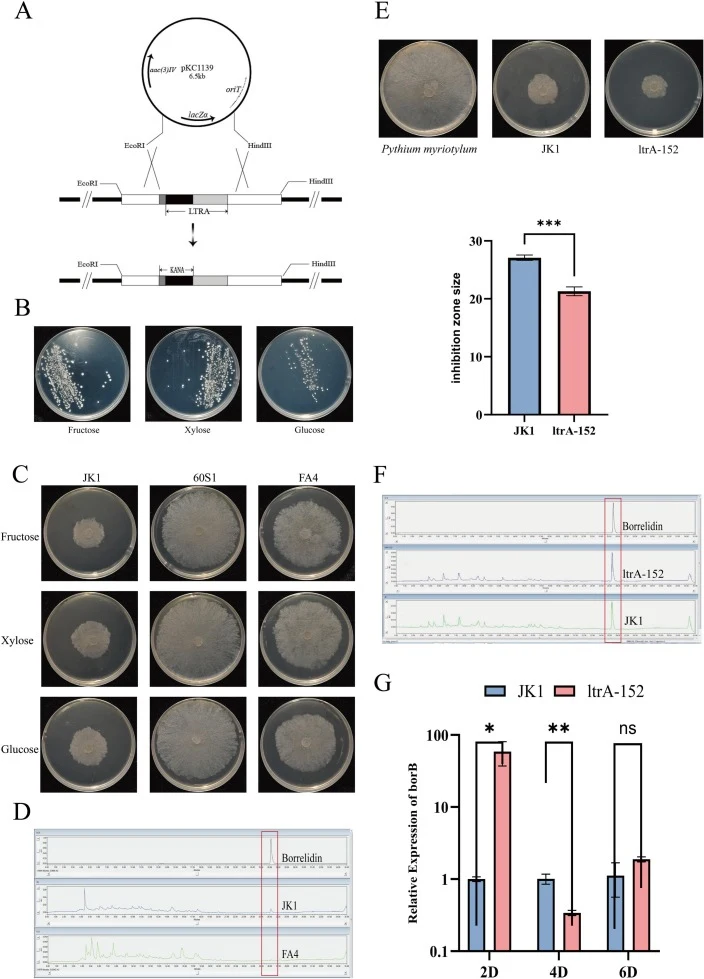
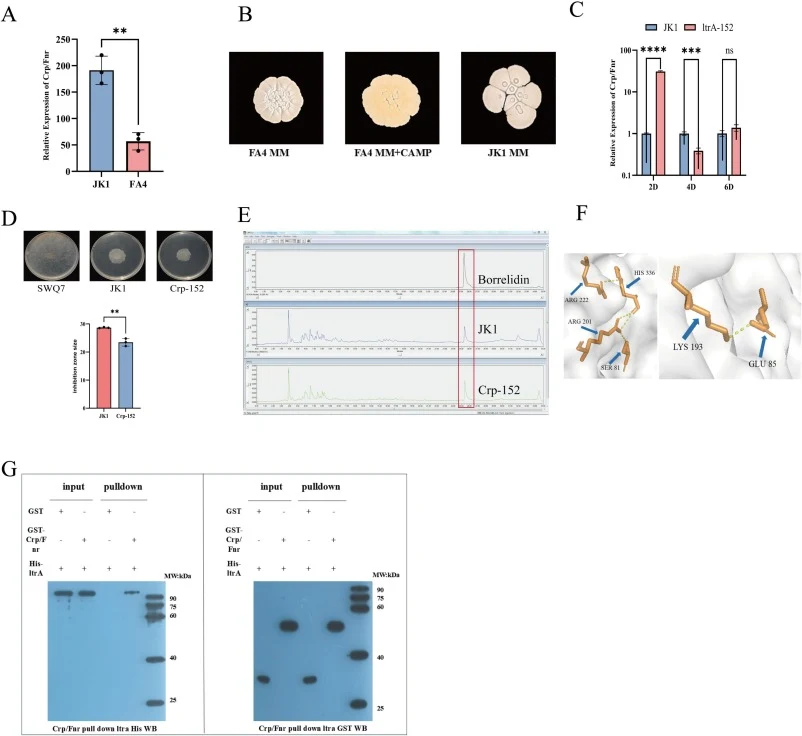
为阐明LtrA在borrelidin合成中的作用,我们最初尝试在野生型菌株JK1中构建ltrA全长缺失突变体,但完全敲除未获成功,推测源于基因必需性。因此,我们通过同源重组在野生型JK1背景中构建了靶向部分截短突变体(FA4)(图3A),移除N端194 bp区域——该区域包含与60 s1中122 bp突变位点对应的功能关键片段。使用引物YZ-LTRA-F/R的菌落PCR扩增出预期条带。Sanger测序证实,突变体FA4的上部片段为194 bp,而野生型菌株相应片段为190 bp。表型分析显示,FA4在原始发酵培养基中生长但产生很少次级代谢产物(图3B),在以蔗糖为碳源的玉米粉培养基中结果类似;然而,在单糖优化培养基中其恢复了次级代谢产物生产,尽管在果糖改良培养基中对Pythium myriotylum的拮抗活性显著低于野生型JK1(图3C、D),证实拮抗功能部分保留。同时构建了ltrA过表达突变体:PCR验证证实pSET152-ltrA成功整合至ltrA过表达菌株ltrA-152基因组中,而野生型JK1中未观察到目标条带。表型分析显示,FA4在标准培养基中次级代谢受损,但在单糖优化培养基中可部分恢复。其拮抗活性仍显著低于野生型,证实功能部分保留但减弱(图3B–D)。与之形成鲜明对比的是,ltrA过表达菌株ltrA-152对P. myriotylum的抑制率提高7.64%(图3E),borrelidin产量显著提升78.84%(增加8.46 μg/mL,图3F)。关键生物合成基因borB的动态表达分析显示,与野生型相比,ltrA-152在培养第2天时borB转录水平上调58.73倍(图3G)。采用对数Y轴以更好显示不同时间点表达变化的较大动态范围。这表明ltrA过表达在早期阶段强效激活borrelidin生物合成级联。综上,这些遗传操作提供了确凿证据:LtrA是borrelidin合成的正调控因子,其N端194 bp区域对其功能至关重要。
【数据】截短区域:N端194 bp;FA4上部片段:194 bp(野生型190 bp);ltrA-152抑制率提升:7.64%;borrelidin产量提升:78.84%(增加8.46 μg/mL);borB转录上调:第2天58.73倍;其他参数:原文未详述
3.4 LtrA通过调控并直接互作FtsK/SpoIIIE来调节遗传稳定性与应激响应
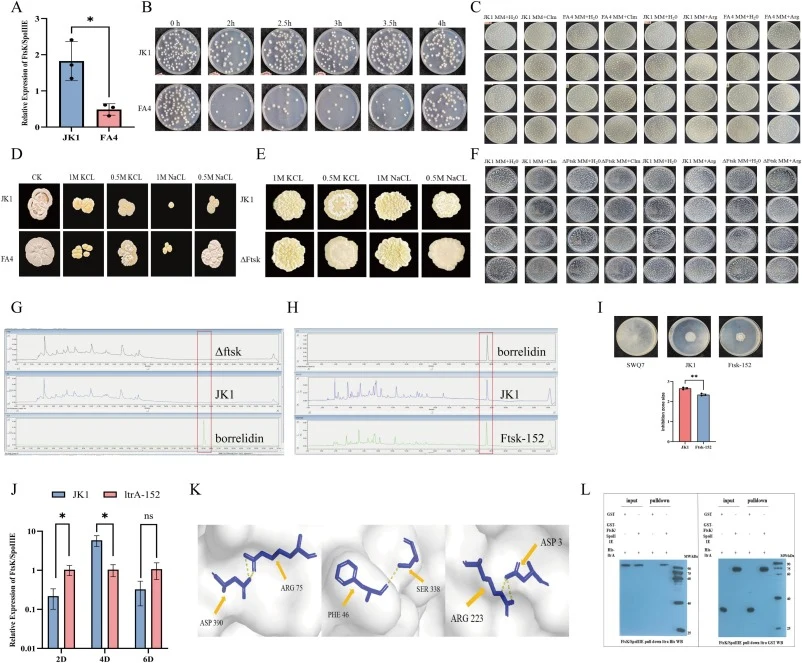
基于上述转录组分析,ftsK/spoIIIE基因表现出显著变化。FtsK/SpoIIIE家族蛋白是染色体分离和基因组完整性维持所必需的DNA转位酶。RT-qPCR(图4A)显示,敲除突变体FA4中ftsK/spoIIIE表达较野生型JK1显著下调3.74倍。表型上,FA4在孢子萌发过程中异常菌落比例显著升高(图4B)。
【数据】基因:ftsK/spoIIIE;FA4中下调:3.74倍;表型:异常菌落比例显著升高;其他参数:原文未详述
3.5 LtrA与Crp/Fnr的调控关联与互作
RT-qPCR分析显示,与野生型JK1相比,FA4中Crp/Fnr表达大幅下调(降低3.36倍)(图5A)。cAMP补充对FA4形态和抗真菌活性的影响实验表明,添加cAMP可恢复ltrA突变体形态,但未能恢复JK1对Pythium myriotylum的抑制活性(图5B),表明LtrA介导的borrelidin调控独立于形态控制。
【数据】基因:Crp/Fnr;FA4中下调:3.36倍;cAMP处理:恢复形态但未恢复抑制活性;其他参数:原文未详述
3.6 ltrA过表达菌株对生姜根腐病的生防效果
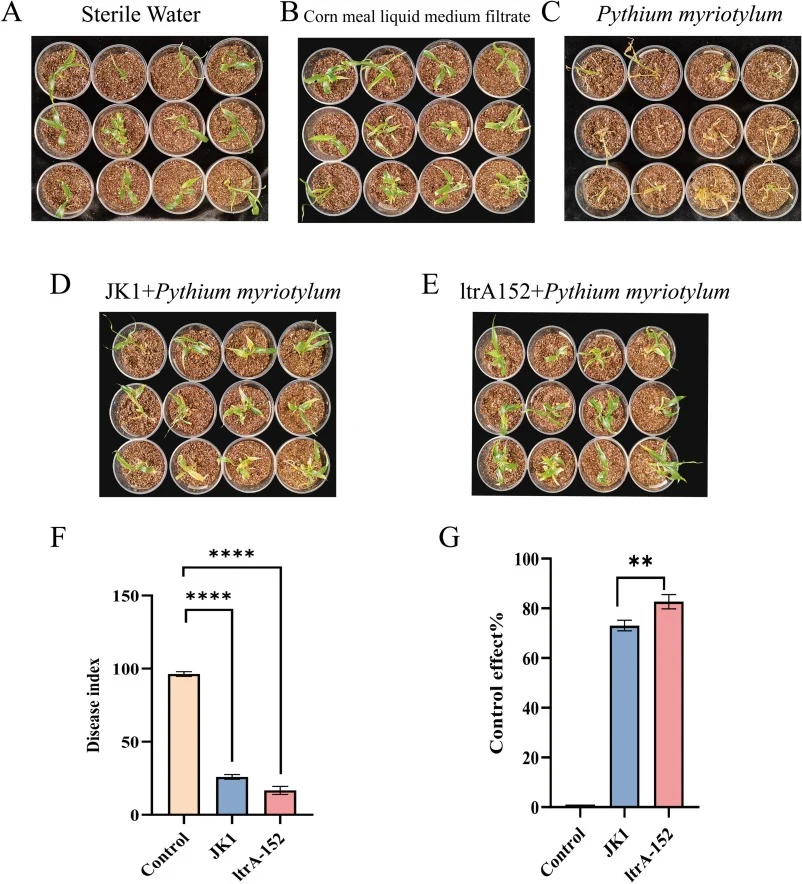
盆栽实验以Pythium myriotylum菌株SWQ7侵染生姜植株,展示不同处理条件下的病害症状(图6A–E)。生防效果比较见图6F、G。
【数据】病原菌:Pythium myriotylum SWQ7;实验类型:盆栽实验;其他参数:原文未详述
3.7 LtrA对borrelidin的预测调控网络图
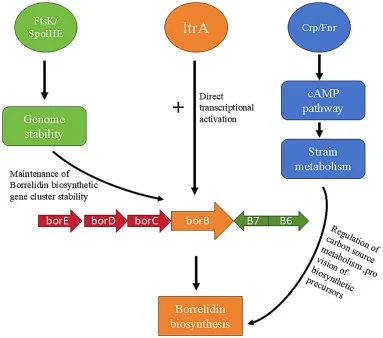
borE、borD、borC、borB、B7与B6之间的关系源自研究"Biosynthesis of the Angiogenesis Inhibitor Borrelidin by Streptomyces parvulus Tü4055: Cluster Analysis and Assignment of Functions"(图7)。
【数据】涉及基因:borE、borD、borC、borB、B7、B6;其他参数:原文未详述
讨论与解读
LtrA在borrelidin生物合成中的核心调控作用,置于次级代谢产物生物合成所涉及的复杂调控网络背景下尤为清晰——其中转录调控因子与必需功能蛋白扮演着特别关键的角色。紫外诱变突变体60 s1完全丧失对Pythium myriotylum的抑制,且检测不到borrelidin;全基因组测序显示ltrA、rpoB和arr发生突变。由于先前研究证实rpoB/arr突变(如菌株JK1–4)仅赋予利福平抗性而不影响borrelidin产量,LtrA的功能丧失是borrelidin合成中断的核心原因。截短突变体FA4(在单糖培养基中部分恢复次级代谢产物合成、拮抗活性降低)与过表达菌株ltrA-152(borrelidin产量提高78.84%、对P. myriotylum抑制率提高7.64%)的表型验证进一步支持这一点,首次提供证据表明LtrA是borrelidin合成的正调控因子,其194 bp N端片段为关键功能区域。类似地,在链霉菌中,亮氨酸响应调控蛋白SlcG_Lrp通过直接激活林可霉素生物合成簇中的结构基因(如lmba、lmbv)、抗性基因(如lmra、lmrb)和调控基因(如lmbu)精确调控林可霉素合成——它通过特异性结合靶基因启动子促进转录。
编译者解读:本研究以经典诱变—测序—遗传验证路径锁定LtrA,逻辑链条完整,且过表达即获78.84%产量提升,工程可行性好。但LtrA作为推测的调控蛋白,其直接靶标(是否结合borB启动子)尚未用EMSA或ChIP验证,与FtsK/SpoIIIE、Crp/Fnr的"互作"也停留在关联层面。对合成生物学而言,ltrA是现成的产量提升元件,但要用作可预测的调控部件,还需补足剂量效应与宿主普适性数据。
参考来源
期刊:International Journal of Biological Macromolecules, 2026
DOI: 10.1016/j.ijbiomac.2026.154974
DOI: 10.1016/j.ijbiomac.2026.154974