来源:Fermentation of tobacco waste using Saccharomyces cerevisiae M01: Insights from whole-genome sequencing, volatile, and non-volatile profiles(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
烟草废弃物是富含多糖、蛋白与高值代谢物的未充分利用生物质。本研究以从高温大曲中分离的酿酒酵母M01发酵烟草粉末悬液,整合生长动力学、全基因组测序、HS-SPME/GC-MS挥发性代谢物分析与非靶向代谢组学,追踪发酵24、48、72 h的代谢重塑。菌株在烟草基质中生长良好,前24 h内可溶性糖、蛋白与游离氨基酸大幅消耗;发酵后酮、醇、酯类增加,赋予花香、果香与甜香;2,875个差异非挥发性代谢物富集于氨基酸、核苷酸与碳代谢;48 h总酚、总黄酮分别提升27.4%与38.3%。
研究背景
烟草(Nicotiana tabacum L.)既是全球重要工业作物,也是研究基础生物学机制的重要模式植物。在农业生产与制造过程中,约25%的烟草物料——包括低等级烟叶、烟秆、烟茎与加工粉尘——因尼古丁含量顾虑而被废弃。但这些废弃物其实是被低估的资源:富含多糖与蛋白,并含吡啶类生物碱、茄尼醇、黄酮、酚类、甾醇及高值挥发性代谢物,可回收用于香料生产、生物活性成分开发及相关生物加工领域。这些代谢物具有抗炎、抗肿瘤、抗菌、抗寄生虫与抗氧化等多种生物活性,从烟草废弃物中提取活性化合物因而成为农业副产物管理的可持续高值策略。近年研究多聚焦烟草提取物的活性成分与生物活性,而利用微生物发酵对烟草废弃物进行整体转化、并同步解析其基因组基础与代谢谱系的工作仍有限。本研究即以酿酒酵母M01为出发菌,系统考察其在烟草粉末悬液中的生长、基因组特征及挥发性与非挥发性代谢物变化,为烟草废弃物的微生物发酵与高值化利用提供理论依据。
研究方法
2.1 材料
烟叶碎片(2022年采收)由陕西中烟工业有限责任公司提供。使用前,碎片于40 °C干燥30 min,室温(23 ± 1 °C)下粉碎,随后过75 μm筛。乙酸-2-苯乙酯与正构烷烃标准混合物(C7–C40)购自Sigma-Aldrich有限公司(中国上海)。乙醇(99%,v/v)购自科密欧化学试剂有限公司(中国天津)。其余化学试剂均为分析纯,购自麦克林生化科技有限公司。
【数据】烟叶采收年份:2022;干燥温度:40 °C;干燥时间:30 min;粉碎温度:23 ± 1 °C;筛孔:75 μm;乙醇纯度:99%(v/v);正构烷烃范围:C7–C40
2.2.1 菌株活化
酿酒酵母M01菌株分离自高温大曲,以50%甘油于−80 °C保存备用。菌株在酵母浸出粉胨葡萄糖(YPD)培养基(Coolaber,中国北京)中于28 °C活化24 h,使用前传代两次。初始接种浓度调整为1 × 10⁷ CFU/mL。
【数据】保存温度:−80 °C;甘油浓度:50%;活化培养基:YPD;活化温度:28 °C;活化时间:24 h;传代次数:2次;接种浓度:1 × 10⁷ CFU/mL
2.2.2 样品制备
烟草粉末悬液(100 g/L)于121 °C灭菌15 min并冷却至室温。发酵设三个平行,于28 °C、200 rpm摇床中进行,使用250 mL三角瓶装液100 mL。按发酵时间点设24 h、48 h、72 h三个实验组。每组加入5 mL酵母悬液启动发酵,未发酵对照(0 h)加入等体积无菌水。发酵通过向每份样品(含对照)加入三倍体积99%乙醇终止,随后回流提取2 h。11,325 × g、4 °C离心10 min去除固体。上清液用旋转蒸发仪于45 °C、减压(50–200 mbar)浓缩至膏状。所得未发酵与发酵烟草提取物于−80 °C保存,最长4周,用于后续HS-SPME/GC-MS、非靶向代谢组学及生物活性化合物分析。
【数据】烟草粉末悬液浓度:100 g/L;灭菌温度:121 °C;灭菌时间:15 min;发酵温度:28 °C;转速:200 rpm;装液量:100 mL/250 mL;接种量:5 mL;时间点:24、48、72 h;乙醇终浓度:三倍体积99%乙醇;回流提取时间:2 h;离心力:11,325 × g;离心温度:4 °C;离心时间:10 min;浓缩温度:45 °C;减压范围:50–200 mbar;保存温度:−80 °C;保存时限:4周
2.2.3 生长曲线与理化指标测定
每4 h用Tecan Spark酶标仪(瑞士Männedorf)记录600 nm光密度(OD600)以监测酵母增殖。烟草基质背景干扰用未发酵对照校正。OD600值用Gompertz方程(式1)建模,方法参照Wang & Guo(2024)。
(1)
式中Y为发酵时间X(h)时的OD600;a为最大渐近OD600与初始值之差;K为拐点处相对生长速率;X_C为达到最大生长速率所需时间。pH与总可溶性固形物(TSS)分别用Mettler Toledo pH计与Abbemat 3100折光仪(中国上海)测定。TSS于24 °C测定,以°Brix表示。可溶性糖含量按改良苯酚-硫酸法(Li et al., 2025b)定量,用UV-5500PC分光光度计(中国上海)于490 nm记录吸光度。可溶性蛋白含量用Bradford蛋白测定试剂盒(Bioss,中国北京)测定,于595 nm记录吸光度。游离氨基酸(FAAs)按改编自Montanari et al.(2018)的方案定量,详细步骤见补充材料。
【数据】OD600监测间隔:4 h;pH计:Mettler Toledo;折光仪:Abbemat 3100;TSS测定温度:24 °C;可溶性糖检测波长:490 nm;可溶性蛋白检测波长:595 nm;Gompertz拟合R²:>0.99(见结果);原文未详述苯酚-硫酸法试剂用量
2.2.4 全基因组测序与注释
提取M01基因组DNA,采用Illumina短读长与Oxford Nanopore长读长联合的杂交策略测序,以获得高质量基因组组装。初始de novo组装用Flye 2.9完成,随后用Racon 1.4.13与Pilon 1.22迭代抛光以提高一致性准确度。组装基因组完整性用BUSCO 3.0.2(Simão et al., 2015)针对fungi_odb10谱系数据集(BUSCO标记数:758)评估。基因功能注释使用非冗余蛋白数据库(NR)、基因本体(GO)、真核生物同源组(KOG)、京都基因与基因组百科全书(KEGG)及碳水化合物活性酶数据库(CAZy)。详细方案见补充材料。
【数据】组装软件:Flye 2.9;抛光软件:Racon 1.4.13、Pilon 1.22;BUSCO版本:3.0.2;谱系数据集:fungi_odb10;BUSCO标记数:758;注释数据库:NR、GO、KOG、KEGG、CAZy
2.2.5 挥发性代谢物测定
样品中挥发性代谢物用顶空固相微萃取(HS-SPME)提取,经配备DB-5MS色谱柱(30 m × 0.25 mm × 0.25 μm)的Thermo TSQ 9000-TRACE 1310气相色谱-质谱(GC-MS)系统分析。SPME纤维(50/30 μm DVB/CAR/PDMS,Thermo,美国)萃取前于250 °C活化10 min。每份样品取1 g与10 μL乙酸-2-苯乙酯(50 μg/mL乙醇溶液)加入20 mL顶空瓶,80 °C平衡10 min,80 °C萃取30 min。分析物于GC进样口250 °C热解吸5 min,不分流模式。柱温50 °C保持3 min,以5 °C/min升至280 °C并保持10 min。高纯氦气(99.999%)为载气,流速1.0 mL/min。质谱全扫描模式采集,电子电离(EI)70 eV,离子源230 °C,传输线280 °C,m/z 35–550。化合物基于质谱与保留指数(RI,用C7–C40正构烷烃系列计算)与NIST 21质谱库(美国国家标准与技术研究院,Gaithersburg,MD)匹配鉴定。乙酸-2-苯乙酯为内标用于半定量。实验方案细节见补充材料。
【数据】色谱柱:DB-5MS(30 m × 0.25 mm × 0.25 μm);纤维规格:50/30 μm DVB/CAR/PDMS;纤维活化温度:250 °C;活化时间:10 min;样品量:1 g;内标:10 μL乙酸-2-苯乙酯(50 μg/mL);顶空瓶:20 mL;平衡温度:80 °C;平衡时间:10 min;萃取温度:80 °C;萃取时间:30 min;解吸温度:250 °C;解吸时间:5 min;不分流模式;柱温程序:50 °C 3 min → 5 °C/min → 280 °C 10 min;载气:氦气99.999%,1.0 mL/min;电离能:70 eV;离子源温度:230 °C;传输线温度:280 °C;扫描范围:m/z 35–550;质谱库:NIST 21
2.2.6 相对气味活度值分析
按Huang et al.(2025)方法,相对气味活度值(rOAV)计算为各挥发性代谢物相对浓度(半定量内标法获得)与其在水中的气味阈值之比,见式(2):
(2)
式中C_i(μg/kg)为挥发性代谢物相对浓度,OT_i(μg/kg)为其在水中的相应气味阈值。rOAV > 1的挥发性代谢物被归为推定香气贡献物。
【数据】rOAV阈值:>1;浓度单位:μg/kg;原文未详述各化合物具体气味阈值数值
2.2.7 非挥发性代谢物测定
非靶向代谢组学分析使用Vanquish超高效液相色谱系统联用Orbitrap Exploris 120质谱仪(UHPLC-MS/MS)。极性代谢物用BEH Amide柱(2.1 mm × 100 mm,1.7 μm)分离,流动相A为25 mmol/L乙酸铵与氢氧化铵水溶液(pH = 9.75),B为乙腈。非极性代谢物用Kinetex C18柱(2.1 mm × 100 mm,2.6 μm,Phenomenex)分离,A为0.01%乙酸水溶液,B为异丙醇:乙腈(1:1,v/v)。自动进样器保持4 °C,进样量2 μL。数据以信息依赖采集(IDA)模式在正、负电喷雾电离(ESI+与ESI−)下采集。ESI源条件:鞘气流速50 Arb;辅助气流速15 Arb;毛细管温度320 °C;全MS分辨率60,000;MS/MS分辨率15,000;碰撞能20/30/40阶梯归一化碰撞能(SNCE)模式;喷雾电压分别为3.8 kV(正)或−3.4 kV(负)。非挥发性代谢物用BiotreeDB 3.0内置MS2数据库鉴定,相似度评分阈值0.7。详细方案见补充材料。
【数据】极性柱:BEH Amide(2.1 mm × 100 mm,1.7 μm);流动相A:25 mmol/L乙酸铵+氢氧化铵,pH 9.75;流动相B:乙腈;非极性柱:Kinetex C18(2.1 mm × 100 mm,2.6 μm);流动相A:0.01%乙酸水;流动相B:异丙醇:乙腈(1:1,v/v);进样器温度:4 °C;进样量:2 μL;鞘气:50 Arb;辅助气:15 Arb;毛细管温度:320 °C;全MS分辨率:60,000;MS/MS分辨率:15,000;碰撞能:20/30/40 SNCE;喷雾电压:3.8 kV(正)/−3.4 kV(负);数据库:BiotreeDB 3.0;相似度阈值:0.7
2.2.8 生物活性化合物测定
总酚含量用Folin-Ciocalteu法测定(原文节选至此结束,后续步骤未详述)。
【数据】方法:Folin-Ciocalteu法;原文节选未详述试剂用量、反应温度与时间、检测波长
研究结果
3.1 酿酒酵母M01在烟草粉末悬液中的生长表现
为评估M01在烟草粉末悬液中的生长表现,对其生长动力学进行了监测。如图1A所示,YPD培养基与烟草粉末悬液中的生长曲线均呈典型S形,Gompertz模型拟合良好(R² > 0.99)。YPD培养基与烟草粉末悬液的延滞期分别为6 h与7 h。随后酵母进入对数期,最大比生长速率分别为3.42×10⁻³/min与1.55×10⁻³/min。随着营养耗尽与代谢副产物积累,菌株进入稳定期。两种培养基中最大细胞密度(OD600)均超过1.6。YPD与烟草粉末悬液固体平板上观察到相似菌落形态,表明M01在烟草粉末悬液中生长能力稳健(图S1)。
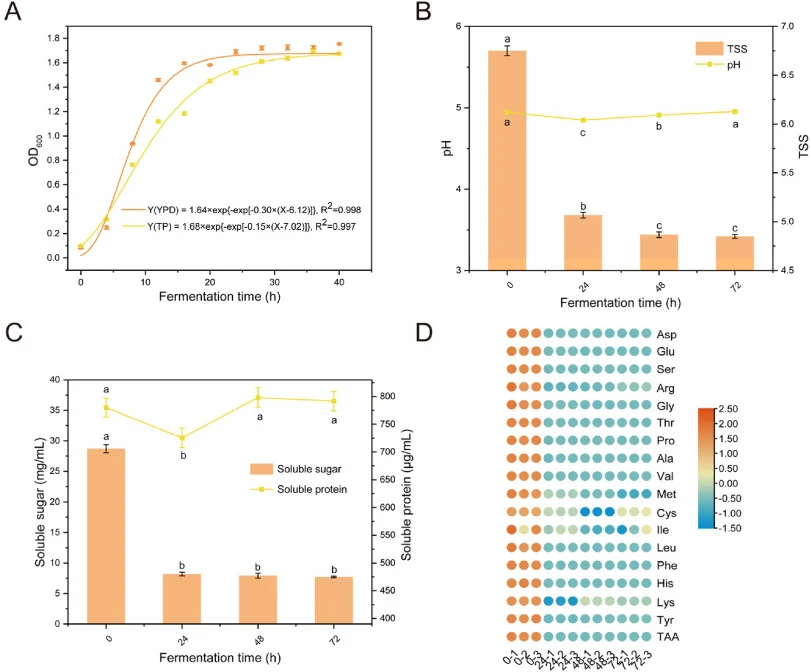
【数据】拟合模型:Gompertz,R² > 0.99;延滞期:YPD 6 h、烟草悬液7 h;最大比生长速率:3.42×10⁻³/min(YPD)、1.55×10⁻³/min(烟草悬液);最大OD600:>1.6(两种培养基)
为进一步探究发酵过程中的理化变化,测定了pH、TSS、可溶性糖、可溶性蛋白与FAAs等关键参数。如图1B所示,pH在发酵中先降后升。早期酸化可能与碳源消耗及酵母增殖过程中有机酸与CO₂的代谢生成有关。随后pH升高可能归因于糖耗竭与酒精同步生成,减轻了有机酸的进一步积累,同时这些酸与乙醇发生酯化(Li et al., 2025a)。这与Wang et al.(2023)报道一致——干白葡萄酒发酵前期总酸升高、后期下降的类似趋势。发酵前24 h内,TSS与可溶性糖含量均显著下降。具体而言,TSS从6.75降至5.06 °Brix,可溶性糖从28.71降至8.18 mg/mL,分别对应25.0%与71.5%的降幅。这种快速消耗表明烟草粉末悬液中糖类在发酵期间被大量利用,与既往文献一致(Ye et al., 2021)。
【数据】pH趋势:先降后升;TSS:6.75 → 5.06 °Brix(降幅25.0%);可溶性糖:28.71 → 8.18 mg/mL(降幅71.5%);时间窗:前24 h
蛋白与FAAs是菌株生长的重要氮源。如图1C所示,可溶性蛋白含量在前24 h先降,48 h回升。该波动可能与营养匮乏、氧耗尽及酵母代谢活动有关(Garge et al., 2024)。如表1所示,未发酵样品中检出17种FAAs,总含量1751.23 μg/mL。FAAs主要由脯氨酸(75.8%)、丙氨酸(5.9%)、天冬氨酸(5.0%)与苯丙氨酸(3.7%)组成。如图1D所示,发酵期间多数FAAs含量总体呈下降趋势。24 h时降幅显著:FAAs总含量从1751.23降至209.93 μg/mL,脯氨酸、丙氨酸、天冬氨酸与苯丙氨酸分别下降89.8%、74.0%、83.3%与94.2%,组氨酸完全耗尽。FAAs下降可能反映其在酒精发酵中被酵母消耗——它们是挥发性醇与醛形成的重要前体(Lu et al., 2023)。总体而言,这些结果表明M01能有效利用烟草粉末悬液中的营养进行生长与代谢。Mai et al.(2024)报道了类似结果:烟草水提物可有效支持红法夫酵母的生物量积累,证实烟草衍生物适合作为酵母生长的营养源。
【数据】FAAs种类:17种;未发酵总含量:1751.23 μg/mL;主要组分:脯氨酸75.8%、丙氨酸5.9%、天冬氨酸5.0%、苯丙氨酸3.7%;24 h总含量:209.93 μg/mL;降幅:脯氨酸89.8%、丙氨酸74.0%、天冬氨酸83.3%、苯丙氨酸94.2%;组氨酸:完全耗尽
3.2 酿酒酵母M01的基因组特征
为进一步评估其生长与代谢能力的遗传基础,对M01基因组进行了全面测序与分析。基因组组装得到20个contig(含线粒体基因组),N50长度885,913 bp。基因组总大小12,494,077 bp,平均GC含量39.75%。基因预测鉴定出4,583个蛋白编码基因(平均长度1,607 bp),占基因组58.93%(表2)。BUSCO分析显示基因组完整性高达89.4%,其中完整单拷贝BUSCOs占87.2%(661个基因),完整重复BUSCOs占2.2%(16个基因),仅0.1%片段化BUSCOs(1个基因)与10.5%缺失BUSCOs(80个基因)。全局基因组特征用Circos图可视化(图2A)。
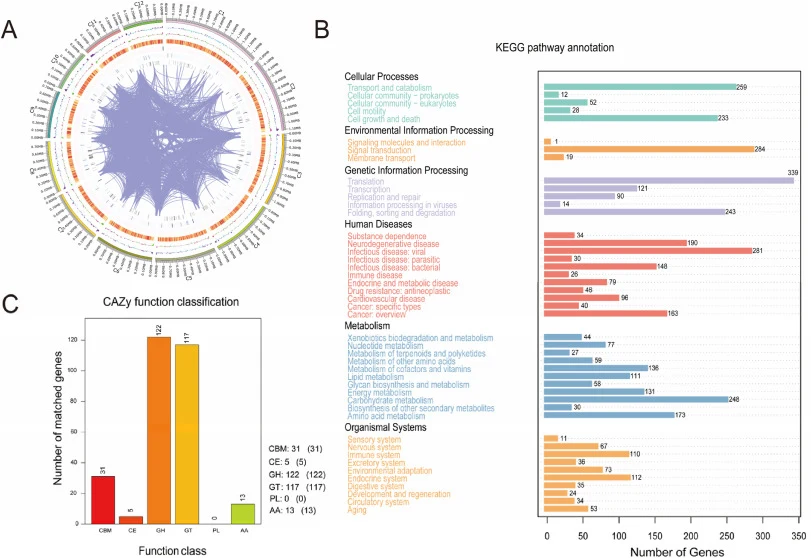
【数据】contig数:20(含线粒体基因组);N50:885,913 bp;基因组总大小:12,494,077 bp;平均GC:39.75%;蛋白编码基因:4,583个;平均基因长度:1,607 bp;编码区占比:58.93%;BUSCO完整性:89.4%;单拷贝:87.2%(661);重复:2.2%(16);片段化:0.1%(1);缺失:10.5%(80)
基于NR数据库的功能注释鉴定出4,401个与酿酒酵母相关的基因,在分子水平确认M01为典型酿酒酵母菌株(图S2A)。GO功能注释鉴定出6,224个生物学过程基因、3,854个细胞组分基因与3,950个分子功能基因。生物学过程域中细胞过程与代谢过程最为突出,分别有1,646与1,631个基因,表明M01代谢活性高。分子功能域中结合与催化活性为最突出类别,分别有1,847与1,458个基因,提示M01具有较强催化潜力与底物结合能力(图S2B)。KOG数据库注释3,742个基因,其中945个参与代谢,主要包括氨基酸转运与代谢(190)、能量产生与转换(182)、碳水化合物转运与代谢(160)及脂质转运与代谢(111)(图S2C)。KEGG通路注释显示,注释基因分为六大类,主要富集于遗传信息处理与代谢(图2B)。这些发现凸显其在细胞功能与发酵活性中的关键作用。具体而言,富集最多的通路如碳水化合物代谢(248)、氨基酸代谢(173)、辅因子与维生素代谢(136)、能量代谢(131)与脂质代谢(111),展示了营养转化与代谢能力的强遗传基础(Lu et al., 2026)。
【数据】NR注释:4,401个基因;GO:生物学过程6,224、细胞组分3,854、分子功能3,950;GO生物学过程前二:细胞过程1,646、代谢过程1,631;GO分子功能前二:结合1,847、催化活性1,458;KOG:3,742个基因,代谢类945个(氨基酸转运与代谢190、能量产生与转换182、碳水化合物转运与代谢160、脂质转运与代谢111);KEGG富集:碳水化合物代谢248、氨基酸代谢173、辅因子与维生素代谢136、能量代谢131、脂质代谢111
CAZy注释鉴定出288个编码碳水化合物活性酶的基因(图2C),表明M01具有降解复杂碳水化合物的潜在能力。最丰富的类别为糖苷水解酶(122个结构域),其次为糖基转移酶(117个结构域)、辅助活性(13个结构域)与碳水化合物酯酶(5个结构域)。12个编码β-葡萄糖苷酶(EC 3.2.1.21)的基因分布于GH1(3)、GH3(1)与GH5(8)家族;GH5家族中8个基因同时编码内切葡聚糖酶(EC 3.2.1.4)、纤维二糖水解酶(EC 3.2.1.91)与β-葡萄糖苷酶(EC 3.2.1.21)。此外鉴定出31个碳水化合物结合模块,与糖苷水解酶结构域偶联时可能增强底物识别(Su et al., 2026)。总体而言,这些结果展示了M01显著的代谢潜力,尤其是其碳水化合物活性酶系统,为其在生物技术过程中的应用提供了坚实基础。
【数据】CAZy基因:288个;糖苷水解酶:122个结构域;糖基转移酶:117个;辅助活性:13个;碳水化合物酯酶:5个;β-葡萄糖苷酶基因:12个(GH1 3个、GH3 1个、GH5 8个);GH5中8个基因兼编码内切葡聚糖酶、纤维二糖水解酶与β-葡萄糖苷酶;碳水化合物结合模块:31个
3.3 HS-SPME/GC-MS分析
#### 3.3.1 挥发性代谢物分析
未发酵与发酵烟草提取物中共鉴定出54种挥发性代谢物,分为7类:21种酮、11种酯、7种醇、4种醛、6种烃、3种杂环与2种酚(表3,图3A)。在未发酵样品中(原文节选至此结束,后续分析未详述)。
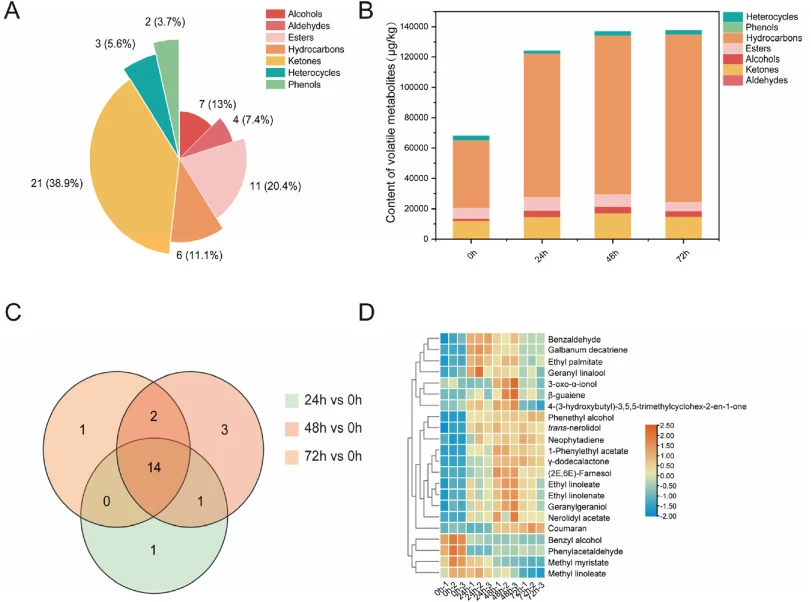
【数据】挥发性代谢物总数:54种;酮:21种;酯:11种;醇:7种;醛:4种;烃:6种;杂环:3种;酚:2种;原文节选未详述未发酵样品具体含量
讨论与解读
本研究证实酿酒酵母M01在烟草粉末悬液中生长稳健、代谢适应性强。HS-SPME/GC-MS鉴定出22种差异挥发性代谢物。rOAV大于1的推定香气贡献物——包括苯乙醇、D-茄尼酮、4,7,9-巨豆三烯-3-酮B、γ-十二内酯与(2E,6E)-法尼醇——发酵后含量显著增加,贡献花香、果香与甜香。非靶向代谢组学鉴定出2,875种差异非挥发性代谢物,富集通路主要涉及氨基酸、核苷酸与碳代谢。发酵48 h后总酚与总黄酮含量分别显著提升27.4%与38.3%。作者亦指出研究局限:其一,未发酵对照未在24、48、72 h同步孵育,孵育或氧化引起的非生物理化变化无法与M01发酵所致变化完全区分;其二,rOAV基于半定量GC-MS数据与水相气味阈值计算,未做外标定量、气相色谱-嗅闻及香气提取物稀释分析;其三,发酵烟草提取物的生物活性(原文节选至此结束)。
【数据】差异挥发性代谢物:22种;rOAV > 1的香气贡献物:苯乙醇、D-茄尼酮、4,7,9-巨豆三烯-3-酮B、γ-十二内酯、(2E,6E)-法尼醇;差异非挥发性代谢物:2,875种;总酚提升:27.4%(48 h);总黄酮提升:38.3%(48 h)
编译者解读:该研究把基因组注释(CAZy、氨基酸与碳代谢基因)与发酵代谢谱对接,为烟草废弃物定向转化提供了可追溯的基因-代谢物线索,方法组合(杂交测序+HS-SPME/GC-MS+UHPLC-MS/MS)在同类基质研究中较为完整。但对照未同步孵育削弱了因果归属,rOAV仅半定量,缺乏外标与嗅闻验证;酚类、黄酮提升的分子机制亦未落到具体酶与通路。对合成生物学而言,M01的β-葡萄糖苷酶与GH5多酶基因簇是后续底盘改造与风味模块移植的潜在靶点。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110275
DOI: 10.1016/j.fbio.2026.110275