来源:Orchestrating polyketide synthase-derived aldehyde metabolism for Streptomyces biomanufacturing(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
聚酮合酶(PKS)末端硫酯还原酶(TR)可释放醛中间体,再经下游酶转化获得二醇、氨基醇与羟基酸等产物。但醛中间体毒性强,工程菌株在基因组层面付出了代价。本研究在白色链霉菌J1074中发现PKS-TR菌株积累数百个全基因组单核苷酸变异,其中PKS与TR保守残基的错义突变会削弱酶活。作者以"醛毒性"为假设,将TR催化与下游醇脱氢酶通过基因共整合或PKS-TR-ADH融合的方式耦联,降低醛积累,突变率随之下降,生物反应器中二醇总滴度达14.2 g/L(其中1,3-丁二醇10.8 g/L)。该策略还扩展到氨基醇与羟基酸途径,产量分别提升79%和145%。
研究背景
微生物发酵是人类最古老的技术之一,用于食品与饮料生产已有9000余年历史。直到20世纪30年代,许多大宗化学品仍由生物质发酵生产。裂解与重整工艺出现后,石油工业主导了大宗与精细化学品的生产。现代石化制造每年生产近10亿吨、数万种分子,2020年排放约1.30 Gt CO2当量。减少化石CO2排放、转向可持续生物经济,已成为现实需求。
生物制造在替代部分石化路线方面展现出潜力——1,3-丙二醇(天然代谢物)与1,4-丁二醇(非天然化合物)均已实现商业规模微生物生产。但许多非天然化学品的生物合成平台开发仍然困难,需要与可编程途径设计相匹配的复杂酶工具。模块化聚酮合酶(PKS)是装配线式巨型合成酶,被广泛用于构建此类平台。
作者此前在白色链霉菌(Streptomyces albus)J1074中开发了基于模块化PKS的平台,可生产17种二醇、氨基醇和羟基酸。该平台中,末端硫酯还原酶(TR)释放醛中间体,再由post-PKS酶转化以控制产物化学性质。本研究聚焦一个此前被忽视的问题:这些醛中间体对宿主细胞做了什么。
研究方法
材料、质粒与菌株
本研究所构建的全部质粒与菌株列于补充表11,E. coli BL21(DE3)、DH5α与DH10β细胞购自New England Biolabs。本研究所用全部基因序列列于补充表12。质粒构建、SAGE整合与S. albus J1074产孢实验均按此前发表的方案执行(Dan et al., 2025)。质粒序列经纳米孔测序验证。
【数据】菌株:E. coli BL21(DE3)、DH5α、DH10β(NEB);质粒/基因清单:补充表11、补充表12;验证方法:纳米孔测序;原文未详述其他试剂用量
24孔板与摇瓶中的白色链霉菌培养
取30 μl野生型或工程化S. albus J1074孢子接种于3 ml含萘啶酸(25 μg ml⁻¹)的胰酪大豆肉汤(TSB)中,置于10 ml 24孔板内,30 °C、200 rpm培养2 d,获得种子液。24孔板培养实验:取100 μl种子液接种于3 ml含1% w/v葡萄糖与萘啶酸(25 μg ml⁻¹)的R5培养基中,30 °C、200 rpm继续培养3 d。摇瓶培养:取1 ml种子液加入30 ml含萘啶酸(25 μg ml⁻¹)及不同浓度葡萄糖的R5培养基中,30 °C、200 rpm培养设定时长。所有培养实验均加入2–5颗无菌玻璃珠(4.5 mm)以减少链霉菌结团效应。
【数据】接种量:30 μl孢子/3 ml TSB;种子液培养:30 °C、200 rpm、2 d;24孔板接种:100 μl种子液/3 ml R5;葡萄糖:1% w/v;萘啶酸:25 μg ml⁻¹;培养:30 °C、200 rpm、3 d;摇瓶:1 ml种子液/30 ml R5;玻璃珠:2–5颗、4.5 mm
生物反应器中的分批与补料分批培养
生物反应器种子液制备:取1 ml工程化S. albus J1074孢子接种于250 ml摇瓶中的50 ml含萘啶酸(25 μg ml⁻¹)TSB,30 °C、200 rpm培养2 d。使用4台Eppendorf DASGIP生物反应器,最大工作体积1.8 l,起始体积1 l R5培养基(含25 μg ml⁻¹萘啶酸)加33 ml种子液。溶氧级联设定点30%,空气流量102–120 sl/h,由DASGIP MX4x4模块控制无菌干燥空气。搅拌转速300–600 rpm,Rushton叶轮间距为1.5倍直径。取样时先弃去取样口死体积。pH设定点7,死区范围0.2;酸(H2SO4,15% w/v)与碱(NH4OH,15% w/v)均由DASGIP MP8模块控制。培养温度30 °C。QD101补料分批培养(图1E):第4、6、8天通过DASGIP MP8模块以20 ml增量、历时1小时补入50% w/v葡萄糖。QD125补料分批培养(补充图6c–d):葡萄糖或蔗糖补料由MP8模块与反应性脉冲补料控制,搅拌转速300–600 rpm。
【数据】种子液:1 ml孢子/50 ml TSB、30 °C、200 rpm、2 d;反应器:4台DASGIP、最大1.8 l、起始1 l R5+33 ml种子液;溶氧:30%;空气流量:102–120 sl/h;搅拌:300–600 rpm;pH:7(死区0.2);酸:15% w/v H2SO4;碱:15% w/v NH4OH;温度:30 °C;QD101补料:第4/6/8天、20 ml增量/1 h、50% w/v葡萄糖
HPLC与LC-MS分析
1,3-PDO、1,3-HDO、氨基醇与羟基酸产物的定量采用Agilent LC/MSD iQ单四极杆质谱仪,方法同此前描述(Dan et al., 2025)。所有标准品均为市售。葡萄糖、蔗糖与1,3-BDO采用Sigma标准品,在配备示差折光检测器(RID)与Aminex HPX-87H色谱柱(Bio-Rad)的Agilent 1200系列Infinity HPLC系统上分析定量。流动相为4 mM H2SO4(水溶液),流速0.40 ml min⁻¹。每次色谱运行45 min。柱温箱与RID全程维持45 °C。
【数据】流动相:4 mM H2SO4;流速:0.40 ml min⁻¹;运行时间:45 min;柱温/RID:45 °C;色谱柱:Aminex HPX-87H;检测器:RID;质谱:Agilent LC/MSD iQ单四极杆
蛋白质组分析
从细胞沉淀中提取蛋白,按既定蛋白质组样品制备方案(Chen et al., 2023)制备胰酶肽段。简述如下:细胞沉淀重悬于Qiagen P2裂解缓冲液(Qiagen,德国)以促进裂解。加入1 mM NaCl与4倍体积丙酮沉淀蛋白,随后用80%丙酮水溶液再洗涤两次。回收的蛋白沉淀用含100 mM碳酸氢铵的20%甲醇反复吹打匀质。蛋白浓度用DC蛋白测定法(BioRad,美国)测定。还原采用5 mM三(2-羧乙基)膦(TCEP)室温30 min,烷基化采用10 mM碘乙酰胺(IAM,终浓度)室温避光30 min。胰酶按1:50(胰酶:总蛋白)比例过夜消化。所得肽段样品在Agilent 1290 UHPLC系统上分析,耦合Thermo Scientific Orbitrap Exploris 480质谱仪进行发现蛋白质组学(Chen et al., 2022)。简述:肽段样品上样至Ascentis® ES-C18柱(Sigma–Aldrich,美国),用10分钟梯度从98%溶剂A(0.1%甲酸水溶液)与2%溶剂B(0.1%甲酸乙腈溶液)洗脱至65%溶剂A与35%溶剂B。洗脱肽段以正离子模式进入质谱,采用数据非依赖采集(DIA)模式,占空比为3次全扫描(m/z 380至m/z 985)加45次串联质谱(MS2)扫描,前体隔离窗口13.5 m/z以覆盖质量范围。DIA原始数据用DIA-NN集成软件套件分析(Demichev et al., 2020)。DIA-NN搜索数据库(无库模式)为Streptomyces albus J1074最新Uniprot蛋白质组FASTA序列,加上异源蛋白序列与常见蛋白质组污染物。DIA-NN基于首轮分析自动确定质量容差与最佳质量精度。保留时间提取窗口通过DIA-NN内置自动优化流程对每个MS运行单独确定。启用蛋白推断,定量策略设为Robust LC = High Accuracy。DIA-NN主报告输出在母离子水平与蛋白组水平均以全局错误发现率0.01(FDR ≤ 0.01)过滤。采用Top3法(每个鉴定蛋白三条最强胰酶肽段的平均MS信号响应)绘制样品中目标蛋白的丰度(Ahrné et al., 2013; Silva et al., 2006)。
【数据】裂解液:Qiagen P2;沉淀:1 mM NaCl+4倍体积丙酮;洗涤:80%丙酮×2;复溶:100 mM碳酸氢铵/20%甲醇;还原:5 mM TCEP、室温、30 min;烷基化:10 mM IAM、室温、避光、30 min;消化:胰酶1:50、过夜;梯度:10 min、98%→65% A;扫描:m/z 380–985、45次MS2、隔离窗口13.5 m/z;FDR:≤0.01;定量:Top3法
TR7定点突变、酶纯化与体外反应
携带D128N或S173L突变的pHIS_TR7质粒,以野生型pHIS_TR7质粒为模板、使用Agilent QuikChange XL定点突变试剂盒构建。质粒序列经纳米孔测序验证。重组TR7突变蛋白的表达、纯化与酶活测定均按此前野生型TR7蛋白的相同方法进行(Dan et al., 2025)。
【数据】突变:D128N、S173L;模板:pHIS_TR7野生型;试剂盒:Agilent QuikChange XL;验证:纳米孔测序;表达/纯化/酶活:同野生型TR7方法(Dan et al., 2025)
含TR7基因簇的基因组组装与注释
以Streptomyces sp. TRM70350的基因组组装ASM1921982v1对推定含TR7的生物合成基因簇(BGC)进行进一步组装与注释。由于该组装无原始reads、也无近缘完整基因组可用,共检查153个contig并基于序列相似性进行连接。所有contig两两比较以识别相似区域,使用Nucmer命令(Marçais et al., 2018):nucmer --maxmatch --minmatch 15 --mincluster 40 --nosimplify -p contigs_all;show-coords -rcl contigs_all.delta > contigs_all.coords。共生成3908个两两比对,比对上的contig用自编Python脚本(scaffold_from_coords.py)连接成scaffold。简述:contig按长度降序处理。选一个未使用的contig作为新scaffold的种子,迭代构建下游延伸。每次延伸时,在所有与当前contig存在重叠的未使用contig中,算法选择重叠长度最大的候选。下一个contig通过修剪重叠区域后仅追加或前插的方式合并。
【数据】基因组:ASM1921982v1;contig数:153;Nucmer参数:--maxmatch --minmatch 15 --mincluster 40 --nosimplify;两两比对:3908个;脚本:scaffold_from_coords.py
研究结果
在工程化白色链霉菌中鉴定改善二醇生产的推定TR
作者此前对八组选定TR在二醇生产中的活性做了初步筛选,发现二醇滴度随所用TR不同而差异显著(Dan et al., 2025)。引入TR7——一个源自Streptomyces sp. TRM70350的推定TR(补充图2)——后,QD35(RimM0M1-TR7)菌株的二醇产量无法检出。八种受试TR中,整合rimM1-TR7基因的成功率显著低于其他任何TR。对代表性菌株QD35m0的全基因组测序进一步发现,RimM1-TR7存在导致翻译提前终止的突变(补充图3),使二醇生产丧失。为更好理解TR7的特殊性,作者建立了S. albus J1074培养平台,可在24孔板中3天快速检测二醇产量,随后对QD35转化子进行大规模筛选(图1b)。该实验发现了三个代表性菌落,二醇滴度创纪录,优于此前表现最好的QD27(RimM0M1-TR1,来自Streptomyces coelicolor M145的coelimycin PKS TR)与QD28(RimM0M1-TR2,Streptomyces sp. NRRL-B24891 TR)菌株(Awodi et al., 2017)。作者将这三个携带TR7的菌株命名为QD35m1、QD35m2与QD35m3(图1b;补充图4)。全基因组测序显示,QD35m2与QD35m3存在TR7突变,三个菌株均存在Rim PKS突变(补充表1)。尽管如此,作者决定对QD35m1进行工程改造以提升二醇滴度,因其TR7为野生型、且RimM0与RimM1-TR7蛋白丰度最佳(补充图5)。在QD35m1中引入yjgB ADH以改善醛中间体向二醇的转化。共整合羧酸还原酶(CAR)基因SrCAR(Gahloth et al., 2017),以促进羟基酸回收为醛、最终生成二醇。所得菌株QD101在R5+2%葡萄糖培养基中摇瓶培养10天后,生产2939.0 mg/L 1,3-BDO、849.1 mg/L 1,3-PDO与87.4 mg/L 1,3-HDO(图1c)。同时,以替代ADH基因yahK从QD35m1构建了QD125。与QD101相比,QD125总体二醇生产率相近(图1c)。为检验基于RimPKS-TR7的平台是否保留PKS产物可调性,将fkbS CCR基因引入QD101构建QD102,期望增加丁酰辅酶A通量、使产物池向1,3-HDO偏移。结果符合预期,QD102的二醇组成发生剧烈变化:在R5+2%葡萄糖培养基并补充100 mM L-缬氨酸(丁酰辅酶A直接前体,Gläser et al., 2021)条件下培养12天后,1,3-BDO与1,3-PDO滴度分别降至78.4 mg/L与70.2 mg/L,1,3-HDO产量增至3005.5 mg/L。相比之下,QD101生产的不同二醇比例大致均等:1019.7 mg/L 1,3-BDO、1473.1 mg/L 1,3-PDO与1490.4 mg/L 1,3-HDO(图1d)。改变辅酶A底物浓度改变了二醇产物分布,而总产物滴度未显著受损,证实优化后的RimPKS-TR7平台保留了产物可调性。接下来,鉴于1,3-BDO的工业相关性(Liu et al., 2024),选择QD101与QD125进行放大。QD101在1-L生物反应器中以R5为起始培养基、葡萄糖为补充碳源进行补料分批培养,12天培养后1,3-BDO产量达7.0 g/L,最终OD600为24.5(图1e)。连同2.0 g/L 1,3-PDO与129.3 mg/L 1,3-HDO,二醇总滴度达9.1 g/L(图1f)。出乎意料的是,作者在生物反应器中观察到蔗糖作为第二碳源被缓慢但可重复地消耗。R5培养基含103 g/L蔗糖,主要作为链霉菌生长的渗透稳定剂(Elibol and Mavituna, 1998),而摇瓶培养实验中未观察到S. albus J1074消耗蔗糖(补充图6a–b)。与QD101补料分批结果相比,QD125菌株在以葡萄糖(补充图6c)或蔗糖(补充图6d)为补充碳源时,呈现相似的生产趋势与滴度。
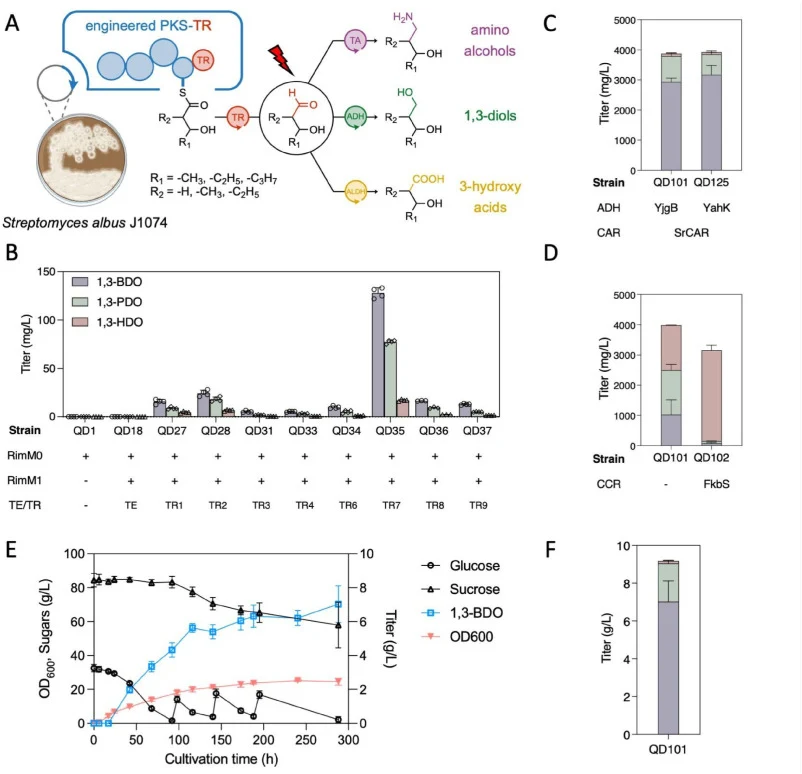
【数据】QD101摇瓶(R5+2%葡萄糖、10 d):1,3-BDO 2939.0 mg/L、1,3-PDO 849.1 mg/L、1,3-HDO 87.4 mg/L;QD102(R5+2%葡萄糖+100 mM L-缬氨酸、12 d):1,3-BDO 78.4 mg/L、1,3-PDO 70.2 mg/L、1,3-HDO 3005.5 mg/L;QD101对照(12 d):1,3-BDO 1019.7 mg/L、1,3-PDO 1473.1 mg/L、1,3-HDO 1490.4 mg/L;QD101生物反应器(12 d):1,3-BDO 7.0 g/L、1,3-PDO 2.0 g/L、1,3-HDO 129.3 mg/L、总二醇9.1 g/L、OD600 24.5;R5蔗糖:103 g/L
TR整合对工程化白色链霉菌基因组的影响
接下来作者系统分析了工程化S. albus J1074菌株的全基因组突变。发现常用的phiC31位点特异性整合系统在所有受试S. albus菌株中均以100%效率将重复的rimM0基因整合到天然attB及另一个假attB位点(补充图7)。相比之下,rimM1-TR基因以单拷贝整合到天然VWB attB位点(补充图7)。所有菌株都在一定程度上积累了单核苷酸突变、插入与缺失,但全基因组测序显示,与对照相比,rimM1-TR整合后SNP consistently显著增加(图2a;补充图8),提示TR对基因组稳定性存在特异性影响。相反,无论是否整合TR或选择何种TR,全基因组插入与缺失的频率在各菌株间相当,表明TR相关诱变主要导致核苷酸替换(补充图9)。此外,TR7整合的QD35菌株SNP突变频率显著高于携带TR1的QD27与携带TR2的QD28菌株(图2a–b)。与这些结果一致,TR整合菌株主要积累错义突变:QD28在401个总SNP中有308个错义突变,QD35m1在896个总SNP中有694个错义突变(补充图S8)。结合QD35突变体遗传整合效率更低、二醇产量更高的事实,这些结果提示SNP频率与TR活性呈正相关。加之在S. albus培养过程中未确认检测到羟基醛(PKS-TR的直接产物),作者假设这些醛高度反应性、可能对S. albus细胞有毒,对宿主施加了强选择压力,最终导致更高的突变率。SNP分析显示两种氨基酸替换占主导:天冬氨酸到天冬酰胺(D→N,由GAC变为AAC密码子)与丝氨酸到亮氨酸(S→L,由TCG变为TTG密码子)(图2c;补充表1–2)。链特异性突变率分析显示,G→A与C→T转换是最频繁的碱基替换(补充图10)。由于这些转换直接产生所观察到的D→N与S→L替换,其普遍性最初可归因于GC-rich的S. albus基因组中G:C碱基对的普遍突变偏倚。然而,即使在校正菌株特异性碱基替换频率与S. albus天然密码子使用后,该偏倚依然存在,表明观察到的模式不能完全由背景突变过程解释(补充表2)。此外,受影响的GAC与TCG密码子在S. albus J1074中使用频繁,排除了罕见密码子使用作为可能解释(补充表3)。而且,这些特定氨基酸替换在所有测得的含TR菌株中一致富集,强化了与TR整合相关的、出乎意料保守的诱变模式这一观点(补充表4)。这些突变也在整合于SAGE靶位点的RimPKS-TR基因内被检测到(补充表1)。氨基酸偏好与整合构建体参与的基础尚不清楚。
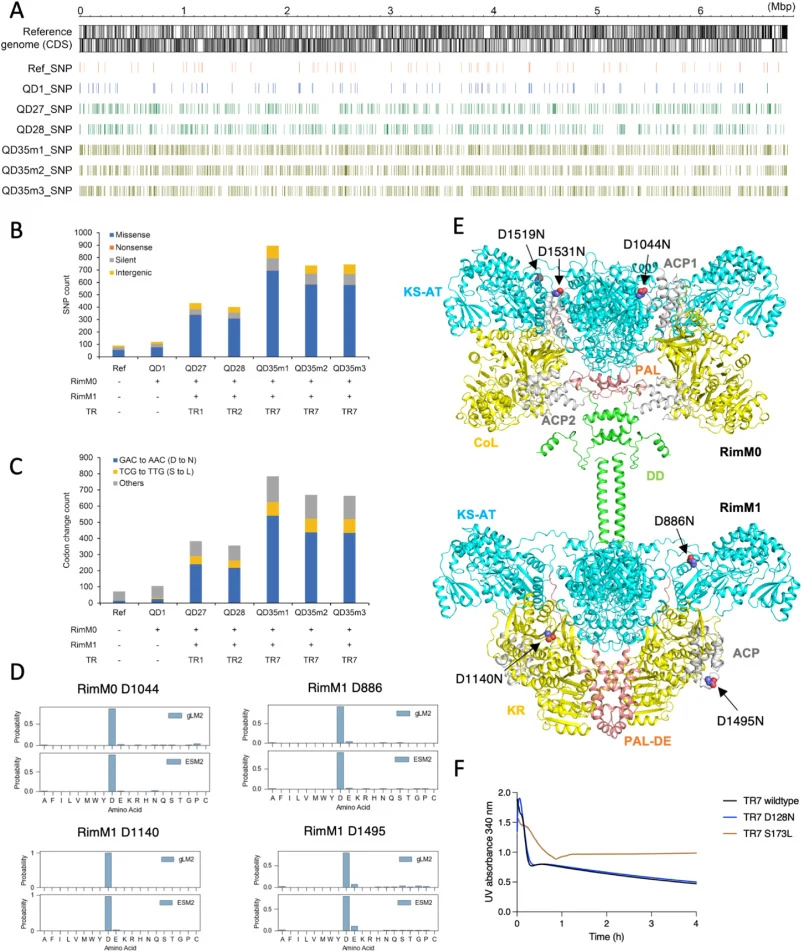
【数据】phiC31整合效率:100%;QD28:401个总SNP、308个错义突变;QD35m1:896个总SNP、694个错义突变;主导替换:D→N(GAC→AAC)、S→L(TCG→TTG);高频替换类型:G→A、C→T转换;原文未详述其他菌株具体SNP数
ADH协同表达提升工程化白色链霉菌的二醇产量
为评估RimPKS-TR是否……
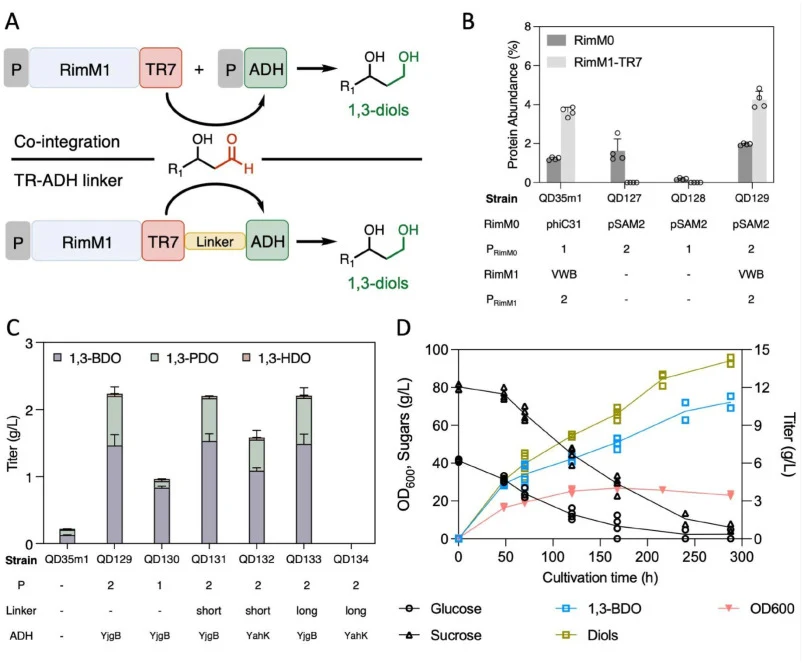
【数据】原文节选至此中断,本节后续内容原文未详述
共整合策略扩展至氨基醇与羟基酸生产
(原文节选未包含2.4节正文,以下内容依据摘要与图表清单)
摘要指出,整合PKS-TR与转氨酶或padA醛脱氢酶的工程菌株,总氨基醇滴度较此前报道提高79%,2-甲基-3-羟基己酸滴度提高145%,同时从优化后的羟基酸途径中消除了二醇副产物。图4展示了通过post-TR酶共整合与AT交换实现产物多样化的示意:丙二酰辅酶A延伸生成无支链3-羟基醛,经转氨酶转化为氨基醇;甲基丙二酰辅酶A延伸则生成带支链的醛中间体。
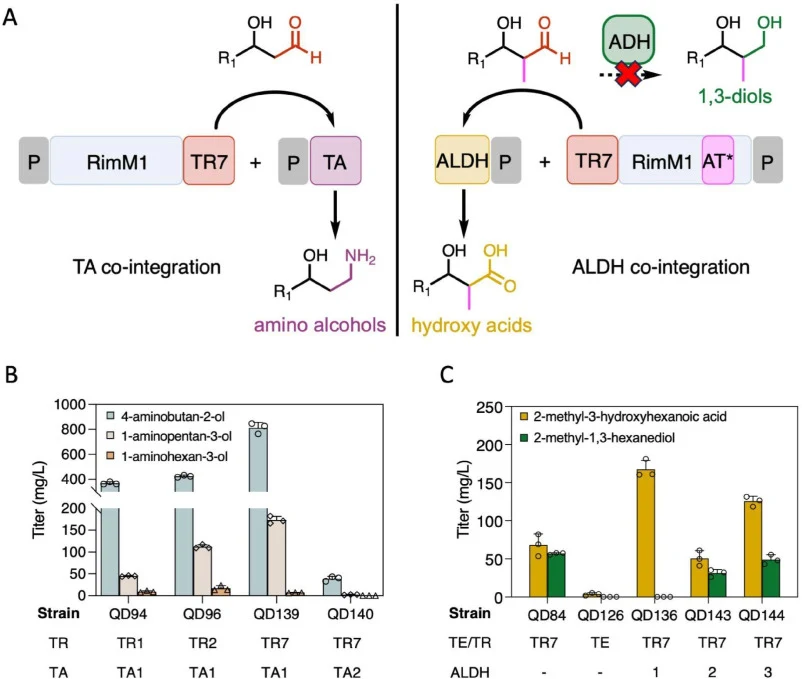
【数据】氨基醇总滴度提升:79%;2-甲基-3-羟基己酸滴度提升:145%;二醇副产物:消除;其他具体数值原文未详述
讨论与解读
过去数十年,基因组挖掘与定向进化的进展极大拓展了可用于生命系统的化学反应 repertoire。将这些新反应完整整合进细胞代谢已成为快速兴起的领域,并引出一个根本问题:微生物如何回应我们工程化赋予它们的新反应?作者利用二醇生物合成管线开始探索这一问题——设计的PKS-TR产生大量醛中间体,可能对宿主细胞有毒。作者假设这种胁迫导致数百个全基因组突变(多为SNP)的积累。通过详细研究,作者采用途径共整合策略缓解细胞负担,结果显著降低了突变率,并在生物反应器中实现14.2 g/L的二醇滴度。
醛是工程代谢途径中的常见中间体,包括脂肪醇与二醇生物合成途径。但据作者所知,此前没有报道呈现本研究观察到的这种量级的细胞胁迫与基因组不稳定性。作者推断至少两个因素可能起关键作用:醛生产的酶架构与宿主细胞的解毒能力。E. coli中脂肪醇生物合成通常采用脂酰辅酶A还原酶……(原文节选至此中断)
编译者解读:本研究把一个常被当作"背景噪音"的现象——工程菌基因组突变——变成了可操作的工程变量。作者没有停留在描述醛毒性,而是用基因共整合与融合蛋白两种拓扑方案把TR与ADH在空间和时间上耦联,用产量与突变率双重指标验证假设,逻辑闭环相当漂亮。14.2 g/L的二醇滴度在链霉菌底盘上已具备中试想象空间。局限也很明显:醛中间体始终未被直接检出,"毒性"仍是间接推断;突变率下降与产量提升之间的因果链缺乏定量模型;共整合策略在产物谱扩展时是否普遍适用,仍需更多途径验证。
参考来源
期刊:Metabolic Engineering, 2026
DOI: 10.1016/j.ymben.2026.102570
DOI: 10.1016/j.ymben.2026.102570