来源:Development of selective medium for rapid pre-enrichment of Bacillus cereus from infant formula powder(International Journal of Food Microbiology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
蜡样芽孢杆菌芽孢常污染婴儿配方粉(PIF),威胁婴儿健康。ISO推荐的常规多粘菌素B增菌液会抑制痕量目标芽孢,而MYP琼脂和分子检测需长时间培养。本研究采用Plackett-Burman设计与Box-Behnken响应面法优化液体基础营养,使蜡样芽孢杆菌6小时活菌数较商业培养基提高37%;从五种抗菌剂中筛选出1.0 mg/100 mL头孢他啶,可完全抑制大肠杆菌、阪崎克罗诺杆菌和鼠伤寒沙门菌,四种蜡样芽孢杆菌菌株在<10 CFU低接种量下回收率均超70%。人工污染乳粉试验验证其优于标准多粘菌素-TSB,分离菌落MALDI-TOF MS鉴定得分均高于2.00。该6小时选择性前增菌培养基为PIF微生物安全监测提供了高效快速的前处理策略。
研究背景
蜡样芽孢杆菌是广泛分布于土壤、生乳原料和食品加工环境中的革兰阳性产芽孢菌。其芽孢耐热性极强——乳品厂采用的标准巴氏杀菌和常规高温灭菌均无法完全灭活,芽孢在温暖、营养丰富的复水条件下迅速萌发为增殖性营养细胞。矛盾的是,常规热处理步骤可能杀灭竞争的革兰阴性菌群,反而为存活的蜡样芽孢杆菌芽孢创造选择性富集生态位,加速病原从工厂环境储库向终端消费者传播。污染可发生于生乳收购、配料混合至成品包装的任何环节。婴儿配方粉是非母乳喂养新生儿的唯一营养来源,其免疫系统未成熟,对食源性病原感染极为易感。2026年,多个主流PIF品牌因产蜡样毒素的蜡样芽孢杆菌菌株引发大规模跨国召回,污染批次流向近50个国家,引起全球对乳品安全隐性危害的关注。临床观察证实六月龄以下婴儿易发生严重脱水性腹泻等重症。因此,亟需构建一种短时液体前增菌系统,在消除革兰阴性杂菌的同时对痕量蜡样芽孢杆菌几乎无抑制,以匹配PCR和微流控快速检测平台的操作需求。
研究方法
2.1 菌株与培养基
本研究使用的非标准菌株蜡样芽孢杆菌A分离自南通金汉生物技术开发有限公司(Kinghunt)生产车间。该分离株的种水平身份经基质辅助激光解吸/电离飞行时间质谱(MALDI-TOF MS,Kinghunt i4000)验证,鉴定得分为2.28(≥2.00,可靠的种水平鉴定),并进一步通过全基因组测序(WGS)确认,明确归属为蜡样芽孢杆菌。此外,基于PCR的计算机毒素基因谱分析显示,该分离株携带三个非溶血性肠毒素(NHE)基因(nheA、nheB、nheC)、两个溶血素BL(HBL)基因(hblC、hblD),以及蜡样毒素基因cer、蜡样芽孢杆菌肠毒素T(BceT)基因bceT、肠毒素FM(EntFM)基因entFM和细胞毒素K(CytK)基因cytK。蜡样芽孢杆菌CMCC(B)63303取自中国医学细菌保藏管理中心。蜡样芽孢杆菌CICC 10317获自中国工业微生物菌种保藏管理中心。其他菌株包括蜡样芽孢杆菌ATCC 14579、大肠杆菌ATCC 25922、大肠杆菌ATCC 8739、阪崎克罗诺杆菌ATCC 29544、鼠伤寒沙门菌ATCC 14028,均取自美国典型培养物保藏中心。所有菌株以50%(v/v)甘油为冷冻保护剂保存于BHI肉汤中,置于−80 °C。实验前,菌株在TSB培养基中于37 °C好氧培养16 h进行活化。所有商业培养基均购自Kinghunt。选择性前增菌培养基开发的整体实验流程见图1。
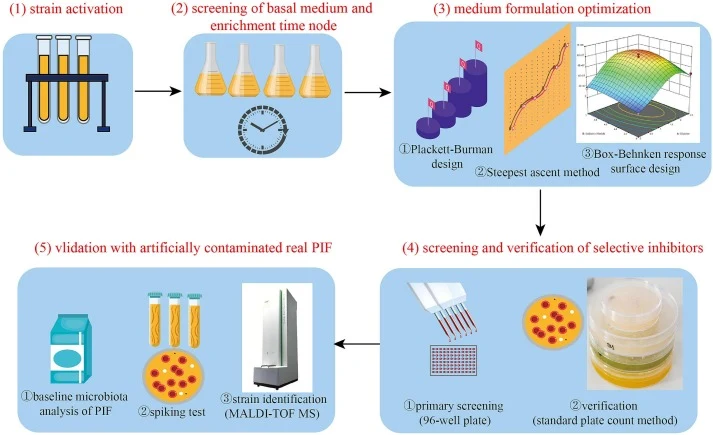
【数据】菌株:蜡样芽孢杆菌A(MALDI-TOF MS得分2.28)、CMCC(B)63303、CICC 10317、ATCC 14579、大肠杆菌ATCC 25922/ATCC 8739、阪崎克罗诺杆菌ATCC 29544、鼠伤寒沙门菌ATCC 14028;保存温度:−80°C;甘油浓度:50%(v/v);活化培养基:TSB;活化温度:37°C;活化时间:16 h
2.2 基础对照培养基筛选与增菌时间节点确定
蜡样芽孢杆菌CMCC(B)63303的培养与生长检测程序参照先前报道方法并作适当修改(Somerton and Morgan, 2024)。简述如下:挑取单个纯化蜡样芽孢杆菌菌落,于37 °C在TSB培养基中过夜培养以制备活化种子悬液。活化后,将细菌悬液定量稀释,每种培养基接种总计约1000 CFU的蜡样芽孢杆菌。四种典型微生物肉汤——TSB、BHI、NB和改良MYP肉汤——作为本筛选试验的候选基础对照培养基。将等体积稀释菌悬液接种至20 mL各无菌培养基中,随后于37 °C静置好氧培养6 h。培养期间以1 h间隔监测细菌生长动态。同步采用传统平板计数法对各时间点蜡样芽孢杆菌活菌进行定量。所有实验设两个生物学重复(n = 2)。所有菌落计数操作均使用0.9%无菌生理盐水进行梯度稀释,平板菌落数控制在25–250 CFU的有效计数范围内。基于所获实时活菌计数数据,综合比较和评价蜡样芽孢杆菌在不同基础对照培养基中的生长速率和最大增殖能力。筛选出对蜡样芽孢杆菌促生长效果最佳的培养基,作为后续响应面配方优化的参考基础对照基质。同时,根据目标菌株0–6 h连续生长特征确定快速短时前增菌的最佳时间节点。
【数据】接种量:约1000 CFU;培养基体积:20 mL;候选培养基:TSB、BHI、NB、改良MYP;培养温度:37°C;培养时间:6 h;监测间隔:1 h;稀释液:0.9%无菌生理盐水;有效计数范围:25–250 CFU;重复数:n=2
2.3 实验设计与统计分析
#### 2.3.1 主要因素筛选设计
Plackett-Burman设计(PBD)是一种两水平部分析因设计,能以最少实验次数从大量候选因素中高效识别显著主效应。采用PBD筛选影响蜡样芽孢杆菌生长的关键营养物(Plackett and Burman, 1946)。本实验将七种培养基组分——蛋白胨、牛肉浸粉、酵母浸粉、葡萄糖、蔗糖、甘露醇和氯化钠——设为自变量(表1)。上述生化原料均购自Kinghunt。所有培养基配方在高压灭菌前用碳酸钠调节,以确保121 °C高压蒸汽灭菌15 min后pH稳定在7.2 ± 0.1,安排12次无中心点的PBD运行。每种培养基接种约100 CFU蜡样芽孢杆菌CMCC(B)63303,于37 °C培养6 h。每项试验做双份(n = 2),以6 h生物量浓度(CFU/mL)为响应值(表1)。数据通过Design-Expert 13.0以线性模型式(A)处理:Y1 = α0 + α1A + α2B + α3C + α4D + α5E + α6F + α7G。
【数据】因素数:7(蛋白胨、牛肉浸粉、酵母浸粉、葡萄糖、蔗糖、甘露醇、氯化钠);实验运行数:12(无中心点);pH:7.2 ± 0.1;灭菌条件:121°C、15 min;接种量:约100 CFU;培养温度:37°C;培养时间:6 h;重复数:n=2;响应值:6 h生物量(CFU/mL)
#### 2.3.2 最陡爬坡实验确定关键因素最优浓度范围
最陡爬坡法(SAM)缩小PBD筛选出的三个显著因素(葡萄糖、甘露醇和氯化钠)的浓度窗口,以逼近蜡样芽孢杆菌最大活菌数的最优范围。最陡爬坡实验参照Wei描述的方法并作适当修改(Wei et al., 2025)。各变量的移动方向和步长由编码线性PBD方程的回归系数确定,以绝对系数最大的因素(葡萄糖)为参考单位计算其他两组分的步长增量。各因素初始中心浓度定义为PBD设计高低水平的中点:葡萄糖5.5 g/L、氯化钠3 g/L、甘露醇2.5 g/L。葡萄糖理论步长计算为3.21 g/L,实际试验中调整为1.5 g/L,以避免浓度下降过快跳过最优生长区。氯化钠理论步长增量为0.91 g/L;为防止高盐含量渗透压过高引起生长抑制,实际步长设为0.5 g/L。甘露醇理论步长为0.97 g/L,采用0.5 g/L的精细步长以精确捕捉增殖响应峰值。制备六种培养基配方(表3),蛋白胨固定为10.0 g/L,pH经碳酸钠调至7.2 ± 0.1。所有测定做三次重复(n = 3)。每种培养基接种约100 CFU蜡样芽孢杆菌,于37 °C静置培养6 h。以平板计数定量的活菌落浓度(CFU/mL)为响应值,选取生物量最大的组作为后续Box-Behnken响应面设计的中心点浓度。
【数据】中心浓度:葡萄糖5.5 g/L、氯化钠3 g/L、甘露醇2.5 g/L;理论步长:葡萄糖3.21 g/L、氯化钠0.91 g/L、甘露醇0.97 g/L;实际步长:葡萄糖1.5 g/L、氯化钠0.5 g/L、甘露醇0.5 g/L;蛋白胨:10.0 g/L;pH:7.2 ± 0.1;配方数:6;接种量:约100 CFU;培养温度:37°C;培养时间:6 h;重复数:n=3
#### 2.3.3 Box-Behnken响应面设计优化最佳因素水平
基于最陡爬坡最优浓度(葡萄糖1.0 g/L、NaCl 4.5 g/L、甘露醇1.0 g/L),采用Box-Behnken设计进行精细优化。Box-Behnken响应面优化参照Zalila-Kolsi等描述的方法并作适当修改(Zalila-Kolsi et al., 2022)。葡萄糖浓度范围设为0–2.5 g/L。氯化钠和甘露醇浓度范围分别设为4.0–5.0 g/L和0.5–1.5 g/L,涉及17次运行含5个中心重复(表4)。蛋白胨固定为10.0 g/L作为稳定氮源,培养基pH用碳酸钠调至7.2 ± 0.1。所有试验做三个生物学重复(n = 3)。每种培养基接种约100 CFU蜡样芽孢杆菌CMCC(B)63303,于37 °C静置培养6 h,以平板计数测定的活菌浓度(CFU/mL)为响应值。
【数据】中心浓度:葡萄糖1.0 g/L、NaCl 4.5 g/L、甘露醇1.0 g/L;葡萄糖范围:0–2.5 g/L;NaCl范围:4.0–5.0 g/L;甘露醇范围:0.5–1.5 g/L;运行数:17(含5个中心重复);蛋白胨:10.0 g/L;pH:7.2 ± 0.1;接种量:约100 CFU;培养温度:37°C;培养时间:6 h;重复数:n=3
研究结果
3.1 不同基础培养基短时增菌效果比较
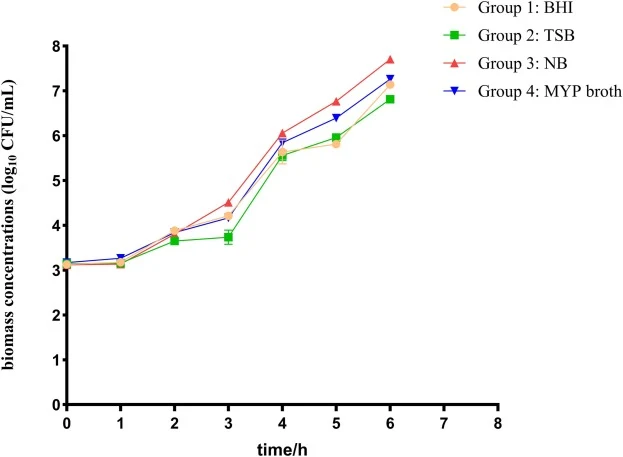
图2展示了蜡样芽孢杆菌在四种基础培养基中0–6 h的生长动态。尽管该菌株在所有培养基中均能生长,但增殖效率存在明显差异。短时增菌能力对病原快速检测至关重要。本研究中,蜡样芽孢杆菌的快速生长期出现在培养5–6 h。生长曲线比较显示,NB培养基促生长能力最佳。静置培养6 h内,NB培养基支持的蜡样芽孢杆菌活菌生物量和增殖速率显著高于TSB、BHI和MYP肉汤,对目标菌株呈现优越的短时增菌性能。考虑快速前处理需求,最终选择NB培养基作为后续配方优化的最佳参考基础培养基。同时,6 h培养时间点被确认为评价蜡样芽孢杆菌增菌效率的核心观察窗口。该时间节点对应菌株旺盛的对数生长期,生理活性稳定、繁殖能力强,避免了早期增殖不足和后期稳定期代谢物积累干扰。因此,6 h增菌时长作为后续单因素实验和响应面优化试验的统一检测时间。
【数据】培养时间:0–6 h;快速生长期:5–6 h;培养温度:37°C;最佳培养基:NB;比较培养基:TSB、BHI、MYP;6 h活菌生物量:NB显著高于其他三种(原文未给出具体CFU数值);重复数:n=2
3.2 PBD筛选显著培养基组分
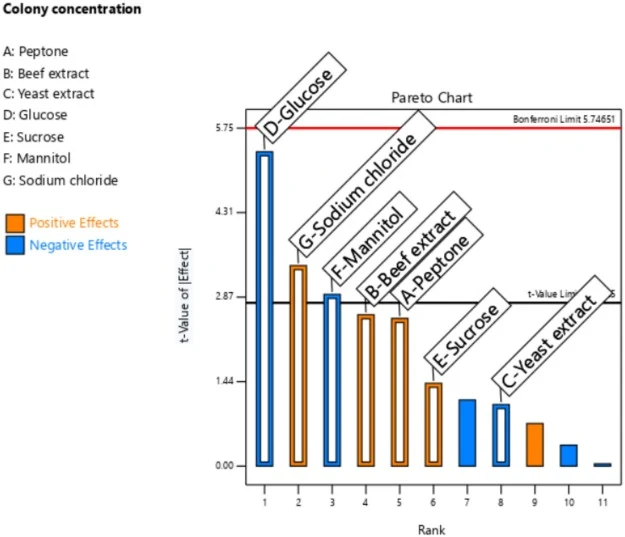
采用Plackett-Burman设计筛选影响蜡样芽孢杆菌6 h增殖的关键营养因素。七种培养基成分——蛋白胨、牛肉浸膏、酵母浸膏、葡萄糖、蔗糖、甘露醇和氯化钠——设为自变量(表1)。蛋白胨和牛肉浸膏作为综合有机氮供体,富含氨基酸和小肽,可被蜡样芽孢杆菌直接吸收以合成胞内蛋白质和遗传物质,无需额外分解代谢耗能(Madoromae et al., 2025)。酵母浸膏提供微量维生素和生长因子,促进菌株基础代谢活动(Dhayalan et al., 2026)。葡萄糖、蔗糖和甘露醇是典型的碳底物,为细菌能量代谢供能(Chang et al., 2021)。图3直观呈现了各营养因素主效应对应的绝对t值,排序了每种培养基组分对蜡样芽孢杆菌活菌生物量影响的大小。相应方差分析结果进一步量化了各变量的统计显著性(表2)。整体回归模型达到显著水平(p = 0.0242),验证了其解释细菌生物量变化的可靠性。菌落浓度的编码线性回归方程建立如下:Y = 7.154 × 10⁶ + 1.329 × 10⁶ A + 1.363 × 10⁶ B − 5.542 × 10⁵ C − 2.829 × 10⁶ D + 7.458 × 10⁵ E − 1.546 × 10⁶ F + 1.804 × 10⁶ G。系数分析显示,葡萄糖施加极显著负效应(p = 0.0059),甘露醇呈现显著负影响(p = 0.0433)。高剂量葡萄糖和甘露醇对蜡样芽孢杆菌短时增菌产生强烈抑制,过量糖诱导酸性代谢物积累,扰乱胞内微环境并损害对数增殖(Vyklicka et al., 2025)。相反,氯化钠对细菌生长显示显著正效应(p = 0.0271)。作为必需无机盐,氯化钠维持培养系统最佳渗透压,调节细菌细胞膜离子交换,稳定核心代谢酶活性,从而加速目标菌株繁殖(Kim et al., 2024)。蛋白胨和牛肉浸粉对生物量产生正效应但不显著(p > 0.05)。结合前述基础培养基筛选结果,蜡样芽孢杆菌对氮源营养需求简单,NB培养基中添加的10.0 g/L蛋白胨足以支持其旺盛短时生长。为简化后续优化实验,蛋白胨固定为10.0 g/L,不纳入后续变量筛选。总之,葡萄糖、甘露醇和氯化钠被确定为关键因素,选入最陡爬坡实验以缩小其最优浓度范围,为后续Box-Behnken响应面优化提供基础。
【数据】因素数:7;模型p值:0.0242;葡萄糖p值:0.0059(极显著负效应);甘露醇p值:0.0433(显著负效应);氯化钠p值:0.0271(显著正效应);蛋白胨和牛肉浸粉p值:>0.05;回归方程:Y = 7.154×10⁶ + 1.329×10⁶A + 1.363×10⁶B − 5.542×10⁵C − 2.829×10⁶D + 7.458×10⁵E − 1.546×10⁶F + 1.804×10⁶G;蛋白胨固定浓度:10.0 g/L
3.3 最陡爬坡法优化
按照PBD模型导出的梯度方向进行最陡爬坡试验,以定位使蜡样芽孢杆菌6 h活菌生物量最大化的浓度。葡萄糖和甘露醇浓度分别从中心点5.5 g/L和2.5 g/L逐步下降,氯化钠浓度从3 g/L依次上升。随爬坡过程推进,蜡样芽孢杆菌活菌落浓度持续增加,在第二实验组达到最大值,此时葡萄糖、氯化钠和甘露醇分别为1.0 g/L、4.5 g/L和1.0 g/L。该组合被采用为后续Box-Behnken设计的中心点。
【数据】葡萄糖:从5.5 g/L降至1.0 g/L;甘露醇:从2.5 g/L降至1.0 g/L;氯化钠:从3 g/L升至4.5 g/L;最大活菌落浓度出现在第二实验组;中心点组合:葡萄糖1.0 g/L、NaCl 4.5 g/L、甘露醇1.0 g/L;培养时间:6 h;培养温度:37°C;重复数:n=3
3.4 BBD优化所选培养基组分
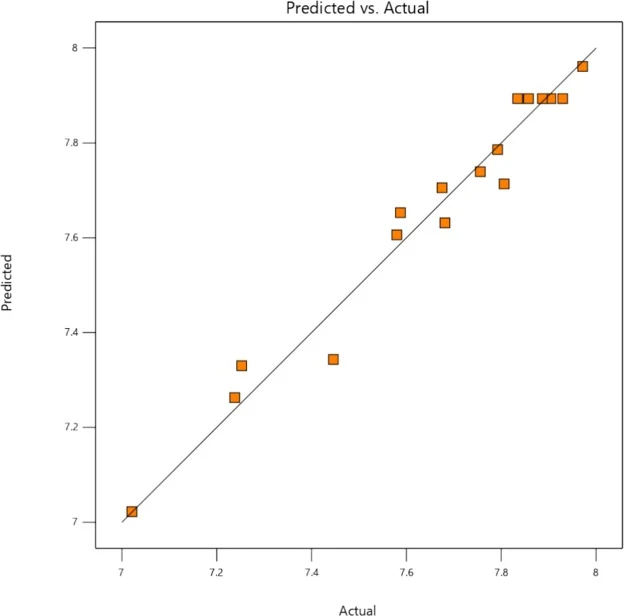
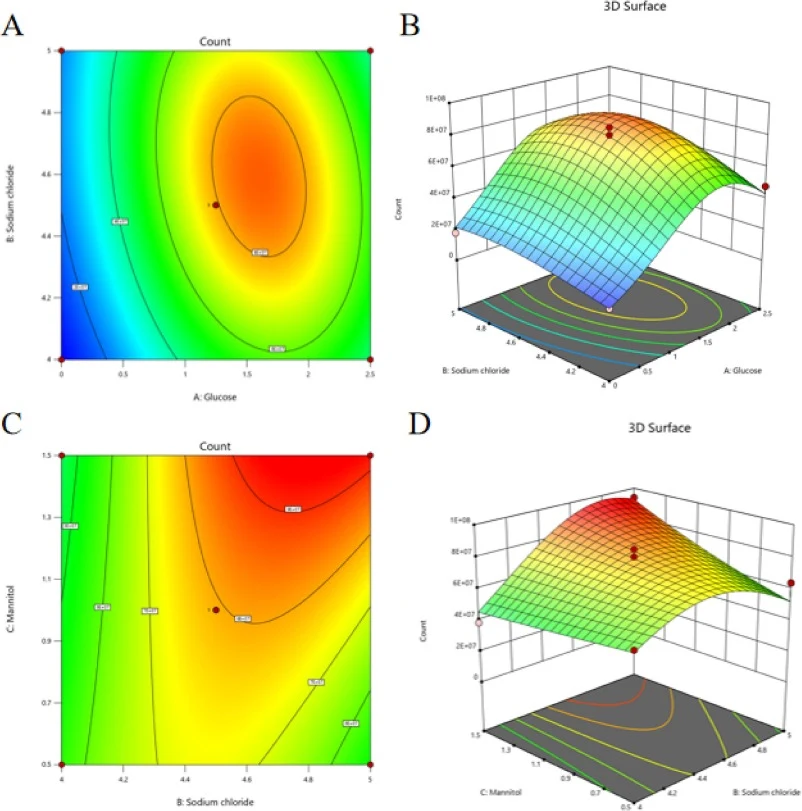
基于最陡爬坡试验筛选的最优浓度组合,选择葡萄糖(X1)、氯化钠(X2)和甘露醇(X3)三个关键培养基因素进行三因素三水平Box-Behnken设计。以6 h短时增菌后蜡样芽孢杆菌活菌落计数为响应值Y,共安排17组实验运行,包括5个中心重复用于纯误差估计(表4)。应用二次回归拟合建立培养基组成与细菌生长相关的二阶多项式方程。
【数据】因素:葡萄糖(X1)、氯化钠(X2)、甘露醇(X3);水平:三因素三水平;运行数:17(含5个中心重复);响应值:6 h活菌落计数;培养时间:6 h;培养温度:37°C;重复数:n=3
#### 3.4.1 模型统计分析
二次回归模型的方差分析结果汇总于表5。模型极显著(p < 0.001),R²和校正R²均接近1,证明菌落产量的多数变异可由三个所选培养基因素解释。失拟项不显著(p > 0.05)进一步证实所建模型的高拟合度和可靠性。对于线性项,葡萄糖(X1)和氯化钠(X2)显著影响细菌生长(p < 0.05),而甘露醇(X3)无显著影响,这与PBD筛选结果一致。作为必需碳源,葡萄糖可支持蜡样芽孢杆菌基础生长,但过高葡萄糖浓度对菌株短时增菌产生明显抑制(Flamholz et al., n.d.; Zhang et al., 2023)。相反,氯化钠通过调节细胞跨膜渗透平衡正向促进细菌增殖(Martinez-Rios et al., 2025)。甘露醇在测试浓度范围内表现出弱调节效应,表明甘露醇用量的小幅波动不能大幅改变蜡样芽孢杆菌的最大活菌产量。二次项中,葡萄糖(X1²)和氯化钠(X2²)的二次项显著,表明对其浓度呈抛物线生长响应。甘露醇二次项不显著,在模型简化中剔除。对于两两交互项,葡萄糖与氯化钠的交互作用(X1X2)以及氯化钠与甘露醇的交互作用(X2X3)均达到显著水平(p < 0.05)。然而,葡萄糖与甘露醇的交互作用(X1X3)无统计学显著性(p > 0.05),意味着在设计范围内葡萄糖与甘露醇之间不存在明显的协同或拮抗联合效应。
【数据】模型p值:<0.001(极显著);R²和校正R²:均接近1;失拟项p值:>0.05(不显著);葡萄糖(X1)p值:<0.05;氯化钠(X2)p值:<0.05;甘露醇(X3)p值:>0.05;X1²显著;X2²显著;X3²不显著(剔除);X1X2显著(p<0.05);X2X3显著(p<0.05);X1X3不显著(p>0.05)
3.5 抗菌剂筛选与选择性培养基性能验证
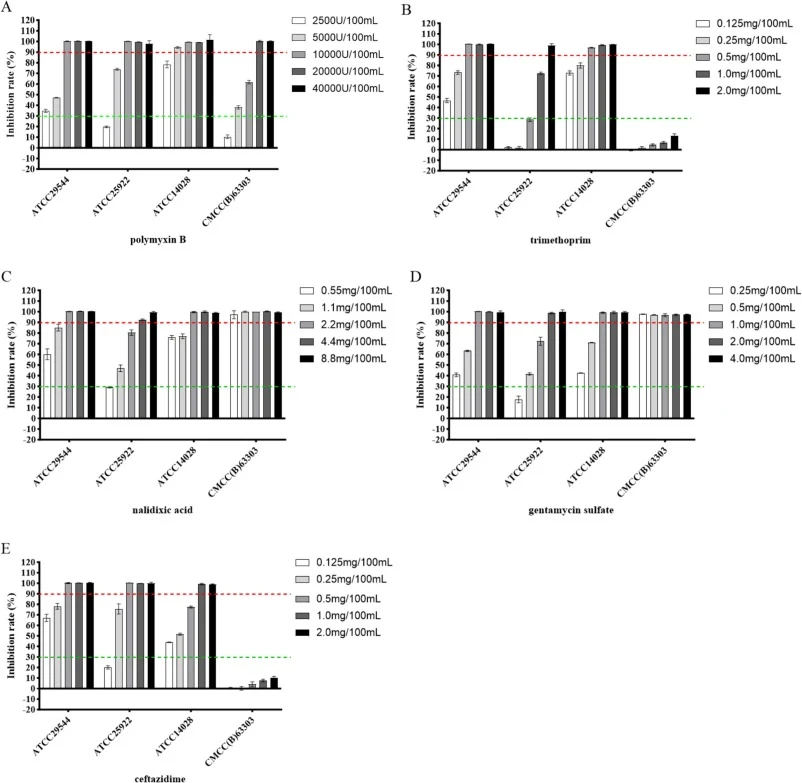
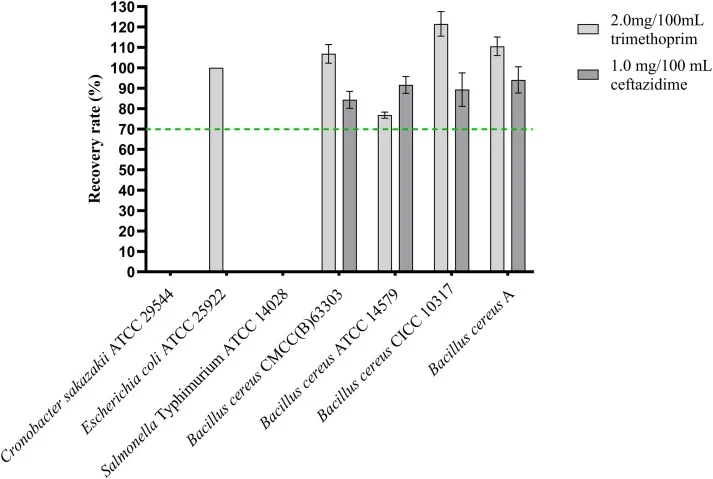
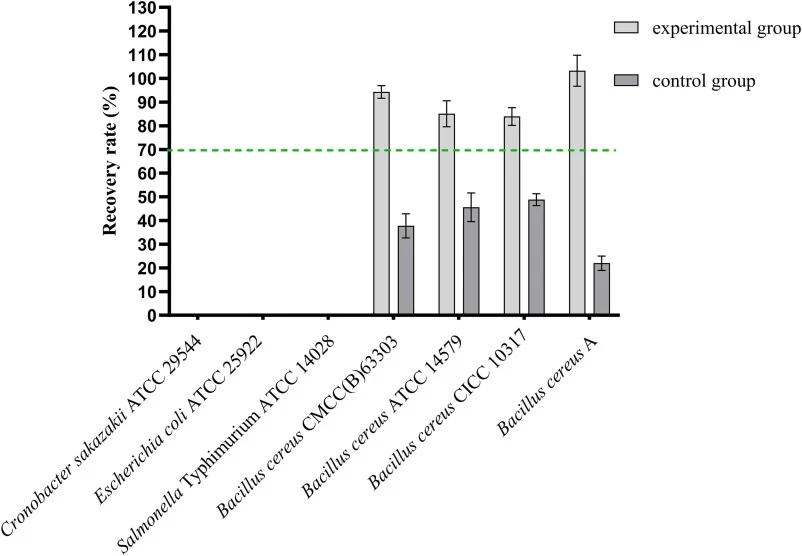
图6展示了五种候选抗菌剂对阪崎克罗诺杆菌ATCC 29544、鼠伤寒沙门菌ATCC 14028、大肠杆菌ATCC 25922和蜡样芽孢杆菌CMCC(B)63303的抑制率。多粘菌素B(A)、甲氧苄啶(B)、萘啶酸(C)、硫酸庆大霉素(D)和头孢他啶(E)在测试浓度下的抑制效果各异。经筛选,1.0 mg/100 mL头孢他啶被选定用于选择性前增菌培养基。该浓度下头孢他啶完全抑制大肠杆菌、阪崎克罗诺杆菌和鼠伤寒沙门菌,同时对四种蜡样芽孢杆菌菌株在<10 CFU低接种量下回收率均超过70%(图7)。人工污染乳粉加标试验验证了其优于标准多粘菌素-TSB(图8)。所有分离菌落经MALDI-TOF MS鉴定得分均高于2.00。
【数据】候选抗菌剂:多粘菌素B、甲氧苄啶、萘啶酸、硫酸庆大霉素、头孢他啶;选定抗菌剂:头孢他啶;浓度:1.0 mg/100 mL;抑制对象:大肠杆菌ATCC 25922、阪崎克罗诺杆菌ATCC 29544、鼠伤寒沙门菌ATCC 14028(完全抑制);蜡样芽孢杆菌菌株数:4;接种量:<10 CFU;回收率:>70%;MALDI-TOF MS鉴定得分:>2.00;前增菌时间:6 h
讨论与解读
蜡样芽孢杆菌芽孢耐热性极强,能存活常规乳品灭菌流程,在生产和包装过程中污染PIF(Yuan et al., 2025)。免疫系统发育不完善的婴儿食用含蜡样毒素的配方粉后面临严重健康风险,可诱发需住院治疗的严重胃肠道疾病,因此痕量蜡样芽孢杆菌监测已成为全球食品安全法规的必要内容(Park et al., 2022; Soni and Brightwell, 2024; Zhuang et al., 2019)。目前主流检测策略分为两类:使用MYP琼脂的选择性固体培养和PCR分子检测(Nguyen et al., 2026; Soni and Brightwell, 2024; Tian et al., 2024)。两种流程均需长时间培养以获得足够细菌生物量用于菌落计数或核酸提取,大幅拖慢整体检测周转。在此背景下,亟需构建短时液体前增菌系统,在完全消除革兰阴性杂菌的同时对痕量蜡样芽孢杆菌几乎无抑制,以加速整个检测流程并匹配PCR和微流控快速检测平台的操作需求。Plackett-Burman设计首先筛选七种培养基原料以识别核心生长调节因素。葡萄糖和甘露醇表现出显著负效应,高浓度糖诱导酸性代谢物积累干扰胞内微环境;氯化钠则通过维持渗透压和稳定核心代谢酶活性显著促进增殖。最陡爬坡与Box-Behnken响应面优化最终确定葡萄糖1.0 g/L、NaCl 4.5 g/L、甘露醇1.0 g/L的最优组合,使6 h活菌数较商业培养基提高37%。抗菌剂筛选确定1.0 mg/100 mL头孢他啶可完全抑制三种革兰阴性竞争菌,同时四种蜡样芽孢杆菌菌株回收率均超70%,人工污染乳粉试验验证其优于标准多粘菌素-TSB。
编译者解读:该研究以"营养优化+选择性抑菌"双轮驱动,用PBD-BBD经典统计优化路线在6 h内完成目标菌富集,思路务实、数据扎实。37%的增菌提升与头孢他啶的精准抑菌谱是亮点——后者替代多粘菌素B,规避了ISO方法对痕量芽孢的抑制痛点。局限在于:仅验证四株蜡样芽孢杆菌,未覆盖产蜡样毒素菌株在真实PIF基质中的竞争生长;头孢他啶对某些革兰阴性菌的抑菌谱仍需更广验证。对合成生物学而言,此工作提示可进一步工程化改造前增菌菌株的营养利用偏好,或引入可控裂解报告系统,将前增菌与检测信号直接耦合。
参考来源
期刊:International Journal of Food Microbiology, 2027
DOI: 10.1016/j.ijfoodmicro.2026.112113
DOI: 10.1016/j.ijfoodmicro.2026.112113