来源:Kinetic characterization and molecular modeling of a recombinant galacto(phospho)lipase from Fusarium annulatum overexpressed in Pichia pastoris(Biochimica et Biophysica Acta (BBA) - Molecular an)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
本研究从真菌 Fusarium annulatum Bugnicourt CBS 菌株转录组中鉴定出一个半乳糖(磷脂)脂肪酶基因 lipFA,在毕赤酵母 X-33 中实现胞外重组表达,经 Ni-IDA 一步亲和纯化获得 47% 收率。纯化酶以两种形式存在(34 kDa 非糖基化与 36 kDa N-糖基化),对三辛酸甘油酯、蛋黄磷脂酰胆碱和单半乳糖二酰甘油分别表现出 6000、6500 和 7720 U/mg 的高比活,最适 pH 9.0–10.0、最适温度 50 °C,并展现出对甘油三酯 sn-1 位和磷脂 sn-1 位的严格位置选择性,结合 AlphaFold 三维模型与分子对接对上述偏好进行了结构层面验证。
研究背景
脂肪酶(EC 3.1.1.3)属于脂解性羧酸酯水解酶,因其独特的"界面激活"动力学特征而能水解不溶性甘油三酯。这类酶广泛分布于动物、植物与微生物中,除参与脂质代谢的生理功能外,还在有机介质中催化酯化、转酯与酯交换反应,作为生物催化剂用于洗涤、食品、制药、农业、生物柴油与纺织等多个工业领域。相比动植物来源,微生物脂肪酶催化活性谱广、底物特异性宽、生产高效低成本,且耐热、耐pH、可在有机溶剂中发挥作用。
在丝状真菌中,镰刀菌属(Fusarium)已成为具有生物技术价值的脂肪酶重要来源。其优势在于宽pH与宽温度范围内的稳定性与活性——例如 F. oxysporum 脂肪酶在 pH 4.0–9.0、最高 55 °C 条件下保持活性与稳定性,符合工业应用需求。本研究以 F. annulatum Bugnicourt CBS 菌株为对象,克隆其脂肪酶基因并在毕赤酵母中重组表达,系统表征其动力学性质、底物谱与位置选择性,并借助三维结构模型与分子对接解析其催化偏好。
研究方法
2.1 材料
Zeocin、聚偏二氟乙烯(PVDF)转印膜与分子量标准蛋白购自 Euromedex(法国 Souffelweyersheim)。P. pastoris X-33 菌株购自 Invitrogen。质粒提取、PCR 纯化与凝胶洗脱试剂盒以及 Protino Ni-IDA 柱购自 Macherey-Nagel(法国 Hoerdt)。阿拉伯胶(GA)、4-甲基伞形酮丁酸酯(MUFB)、酵母提取物、牛磺脱氧胆酸钠(NaTDC)、脱氧胆酸钠、β-环糊精(β-CD)、丁基羟基甲苯(BHT)与牛血清白蛋白(BSA)购自 Sigma-Aldrich Chimie(法国 Saint-Quentin-Fallavier)。
【数据】试剂:Zeocin、PVDF膜、分子量标准蛋白、MUFB、NaTDC、β-CD、BHT、BSA;供应商:Euromedex/Invitrogen/Macherey-Nagel/Sigma-Aldrich;原文未详述各试剂具体用量
2.2 脂质
三丁酸甘油酯(TC4)、三辛酸甘油酯(TC8)、橄榄油、蛋黄磷脂酰胆碱(egg PC)购自 Sigma-Aldrich Chimie(法国 Saint-Quentin-Fallavier)。在 sn-1 位 [1-α-桐油酰基-2,3-十八烷基-sn-甘油(sn-EOO)] 或 sn-3 位 [1,2-十八烷基-3-α-桐油酰基-sn-甘油(sn-OOE)] 以 α-桐油酸(9Z,11E,13E-十八碳三烯酸)酯化的 TG 底物按此前所述方法于本实验室合成[35]。含 α-桐油酸的 PC,无论在 sn-1 位 [1-α-桐油酰基-2-十八烷基-rac-甘油-3-磷酸胆碱(EOPC)] 还是 sn-2 位 [1-十八烷基-2-α-桐油酰基-rac-甘油-3-磷酸胆碱(OEPC)],均按我们此前的报道合成[36]。中链单半乳糖二酰甘油(1,2-辛酰基-3-O-α-D-半乳糖基-sn-甘油,diC8-MGDG)按此前所述方法合成[37,38]。
【数据】底物:TC4、TC8、橄榄油、egg PC、sn-EOO、sn-OOE、EOPC、OEPC、diC8-MGDG;供应商:Sigma-Aldrich;合成方法:参考文献35–38;原文未详述合成产率与纯度
2.3 蛋白
牛血清白蛋白(BSA)与 Lecitase®(即来自 Thermomyces lanuginosus 的 PLA1)购自 Sigma-Aldrich Chimie(法国 Saint-Quentin-Fallavier)。重组豚鼠胰脂肪酶相关蛋白 2(GPL-RP2)在 Aspergillus oryzae 中生产并按此前所述纯化[39]。猪胰脂肪酶(PPL)按此前所述纯化[40]。Candida antarctica 脂肪酶 A(CALA)与 Thermomyces lanuginosus 脂肪酶(TLL)由丹麦 Novozymes 的 S. Patkar 博士惠赠。重组人胰脂肪酶(HPL)在 P. pastoris 中表达并于本实验室纯化。Fusarium solani 角质酶(FSC)在 E. coli 中表达并按此前所述纯化[41]。Serratia sp. W3 脂肪酶(SML)按此前所述纯化[42]。GZEL 按此前所述纯化[24]。内切糖苷酶 H(Endo H)购自 New England Biolabs(德国 Frankfurt)。蛋白浓度采用 Bradford 法测定[43],使用 Bio-Rad Dye Reagent 并以 BSA 为标准品。
【数据】蛋白:BSA、Lecitase®、GPL-RP2、PPL、CALA、TLL、HPL、FSC、SML、GZEL、Endo H;浓度测定:Bradford法,BSA为标准品;原文未详述各蛋白具体浓度
2.4 菌株、培养基与培养条件
真菌 F. annulatum 由本实验室分离,其全基因组已测序。基因组组装与注释工作正在进行,结果尚未发表。质粒 pPICZαA(Invitrogen)在 E. coli 宿主中维持与扩增,宿主于 37 °C 培养于低盐 Luria-Bertani 培养基(LBLS)(5 g/L 酵母提取物、10 g/L 胰蛋白胨、5 g/L NaCl)。异源表达以 P. pastoris X-33 为宿主菌株。培养于 250 mL 摇瓶中进行,培养基含 10 g/L 酵母提取物、20 g/L 蛋白胨、100 mM 磷酸钾(pH 6.0)、13.4 g/L 酵母氮碱(YNB)、0.016 μmol/L 生物素,以及 10 g/L 甘油或 1%(v/v)甲醇,30 °C、240 rpm orbital 振荡培养。E. coli 转化子与 P. pastoris 重组菌株分别在选择培养基 LBLS 与酵母蛋白胨葡萄糖(YPD)(10 g/L 酵母提取物、20 g/L 蛋白胨、20 g/L 葡萄糖)琼脂培养基中筛选,培养基补充 Zeocin(0.1 mg/mL)(购自法国 Euromedex)。重组质粒经限制性酶切分析确认。
【数据】培养基:LBLS(5 g/L酵母提取物、10 g/L胰蛋白胨、5 g/L NaCl)、YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)、表达培养基(10 g/L酵母提取物、20 g/L蛋白胨、100 mM磷酸钾pH 6.0、13.4 g/L YNB、0.016 μmol/L生物素);温度:E. coli 37 °C、P. pastoris 30 °C;转速:240 rpm;碳源:10 g/L甘油或1%(v/v)甲醇;抗生素:Zeocin 0.1 mg/mL
2.5 质粒构建
编码 F. annulatum Bugnicourt CBS 菌株脂肪酶的基因 lipFA 经密码子优化以适应在毕赤酵母中的表达,由 VectorBuilder(德国 Merzhausen)合成。lipFA 基因克隆至 pPICZαA 质粒,置于醇氧化酶 I 启动子(P_AOXI)控制之下,融合 Saccharomyces cerevisiae α-因子(α-MF)以将酶分泌至培养基中,并在 C 端添加 6×-His 标签(多聚组氨酸标签)编码序列。
【数据】基因:lipFA(1269 bp,编码322氨基酸);载体:pPICZαA;启动子:P_AOXI;信号肽:S. cerevisiae α-MF;标签:C端6×-His;合成商:VectorBuilder
2.6 毕赤酵母转化
将 P. pastoris 单克隆于 50 mL YPD 培养基中 30 °C 过夜培养,测定 600 nm 光密度(OD600)。1500 ×g 离心 5 min 收集细胞,室温下用 40 mL 无菌水洗涤两次、用 20 mL 1 M 山梨醇洗涤两次。随后将细胞重悬于等体积的 1.5 mL 中,使 1 M 山梨醇中的初始 OD600 达到 750。该混合物即为感受态细胞储液。用 0.4–2.0 μg 经 SacI 线性化、并用 Qiaquick 试剂盒(Qiagen)纯化的质粒转化感受态细胞。电击转化时将 80 μL 细胞与 DNA 混合于电击杯中,施加 2 kV 电击 6 ms。随后将细胞重悬于 1 mL 1 M 山梨醇中,30 °C 孵育 90 min,之后涂布于含 0.1 mg/mL Zeocin 的固体 YPD 平板。克隆于 30 °C 培养 2 天,再划线至含 0.2 mg/mL Zeocin 的 YPD 培养基。
【数据】菌株:P. pastoris X-33;培养基:YPD 50 mL;温度:30 °C;离心:1500 ×g、5 min;洗涤:40 mL无菌水×2、20 mL 1 M山梨醇×2;感受态OD600:750;质粒用量:0.4–2.0 μg SacI线性化;电击:2 kV、6 ms;孵育:30 °C、90 min;Zeocin:一筛0.1 mg/mL、二筛0.2 mg/mL;培养:30 °C、2天
2.7 蛋白表达与纯化
选取活性最高的克隆用于重组蛋白生产。预培养液体步骤于 250 mL 三角瓶中进行 24 h,含 50 mL 缓冲甲醇复合培养基(BMMY)用于酵母生长。预培养物用于接种更大的酵母细胞培养。培养于 500 mL 三角瓶中以 100 mL BMMY 培养基启动,起始 OD600 为 1。培养在 30 °C、230 rpm 轨道振荡下进行。为诱导蛋白生产,每 24 h 添加甲醇(终浓度 1%)。样品经 9500 ×g 离心 20 min 沉淀细胞后,取上清测定 TG 脂肪酶与磷脂酶活性。所得样品上预先用缓冲液 A(20 mM Tris-HCl,pH 9.0,含 20 mM NaCl)平衡的 Ni-IDA 亲和层析柱,随后用补充 250 mM 咪唑的缓冲液 A 洗脱重组蛋白。
【数据】培养基:BMMY 50 mL预培养、100 mL主培养;起始OD600:1;温度:30 °C;转速:230 rpm;诱导:每24 h加甲醇至终浓度1%;离心:9500 ×g、20 min;缓冲液A:20 mM Tris-HCl pH 9.0、20 mM NaCl;洗脱:250 mM咪唑
2.8 凝胶电泳、酶谱分析与去糖基化
蛋白样品在含 β-巯基乙醇条件下经 10–12% 十二烷基硫酸钠-聚丙烯酰胺凝胶电泳(SDS-PAGE)分析,采用 Laemmli 法[44]。凝胶用考马斯亮蓝 G-250 染色显示蛋白条带。部分样品以 4-甲基伞形酮丁酸酯(MUFB)为底物进行酶谱分析。为此,蛋白组分上样前不煮沸、不用 β-巯基乙醇处理。蛋白迁移后,凝胶于室温下在 2.5% Triton X-100 溶液中浸泡 30 min,用 pH 8.0 的 50 mM 磷酸缓冲液洗涤,然后覆盖以同种缓冲液配制的 100 μM MUFB 溶液[45]。凝胶暴露于紫外光后,脂肪酶活性以荧光蛋白条带形式显现。约 35 μg 预先脱盐的 rFAL 与 2 单位 Endo H 于 37 °C 消化 2 h。未糖基化与去糖基化的蛋白组分经 SDS-PAGE(10%)分析。
【数据】凝胶:SDS-PAGE 10–12%、含β-巯基乙醇;染色:考马斯亮蓝G-250;酶谱:2.5% Triton X-100浸泡30 min、100 μM MUFB、pH 8.0 50 mM磷酸缓冲液;去糖基化:35 μg rFAL、2 U Endo H、37 °C、2 h;SDS-PAGE去糖基化胶浓度:10%
2.9 NH2 端序列分析
纯化蛋白经 SDS-PAGE 分析后,使用 Mini Trans-Blot(Bio-Rad)电泳转印槽按厂商说明电转印至 PVDF 膜。PVDF 膜用蒸馏水漂洗,再用丽春红染色显示蛋白。从 PVDF 膜上切下蛋白条带,使用 Shimadzu(日本京都)PPSQ-31B 蛋白测序仪通过自动 Edman 降解法进行 NH2 端氨基酸测序。
【数据】转印:Mini Trans-Blot(Bio-Rad)至PVDF膜;染色:丽春红;测序:自动Edman降解、PPSQ-31B(Shimadzu);测序残基数:前5个N端残基;原文未详述转印电压与时间
2.10 脂解活性测定
脂解活性采用电位滴定法连续测定(原文此节后续内容未在节选中完整给出)。
【数据】方法:电位滴定法连续测定;原文未详述底物浓度、滴定剂、pH与温度参数
研究结果
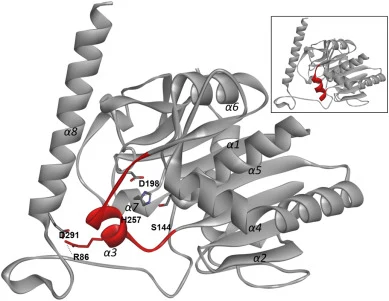
FAL 基因(lipFA)含 1269 碱基对(bp)的开放阅读框,编码 322 个氨基酸的酶,具有与微生物和哺乳动物脂肪酶中经典 GXSXG 基序相似的 GHSLG 序列(图 1)。
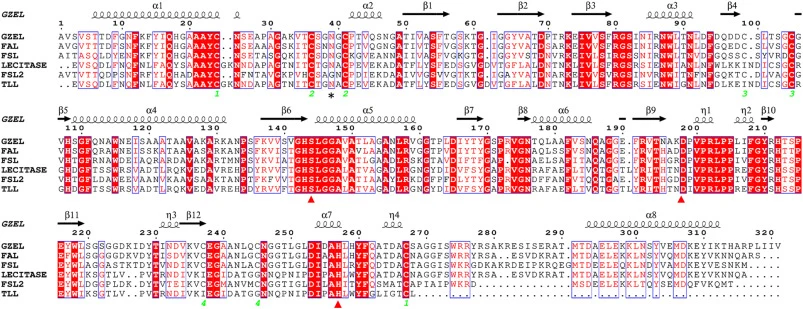
rFAL 与先前克隆的 F. solani 脂肪酶 FSL 和 FSL2 分别具有 58% 和 59% 的同一性[31]。此外,rFAL 与 TLL 的序列同一性为 43%,与 Lecitase Ultra® 为 53%,与 GZEL 为 85%。lipFA 基因被亚克隆至 pPICZαA 载体,用于转化 P. pastoris X-33 菌株,并在甲醇存在下由醇氧化酶 1(AOX1)启动子转录控制表达,同时与 Saccharomyces cerevisiae α-因子信号序列融合以分泌至培养基中。通过 PCR 确认了 Zeocin 抗性转化子中 FAL 基因的存在。在所得转化子中,选取 8 个在甲醇为唯一碳源的全诱导条件下于摇瓶培养中进行脂肪酶生产。选择脂肪酶活性最高的克隆用于生产重组酶。
【数据】基因:lipFA开放阅读框1269 bp、编码322氨基酸;基序:GHSLG;同一性:FSL 58%、FSL2 59%、TLL 43%、Lecitase Ultra® 53%、GZEL 85%;转化子:8个用于摇瓶筛选;载体:pPICZαA;启动子:AOX1;碳源:甲醇
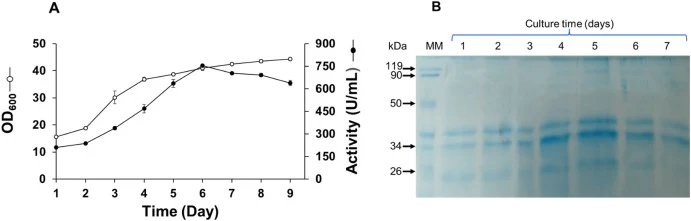
为评价培养基的脂解活性,以 TC8 为底物,结果表明脂解活性升高至第 6 天最大值 750 U/mL,此时培养物细胞 OD600 约为 40(图 2A)。随后观察到活性轻微下降,培养第 9 天约为 640 U/mL,提示酶部分失活。在活性测定的同时,对分泌至培养基中的 rFAL 进行 SDS-PAGE 与考马斯蓝凝胶染色分析。如图 2B 所示,培养基蛋白的 SDS-PAGE 图谱显示两条显著蛋白条带,约 36 与 34 kDa,其强度与活性测定结果一致。34 kDa 条带(rFAL 的预期分子量)强度高于 36 kDa 条带,在培养第 5 天达到最佳(图 2B)。
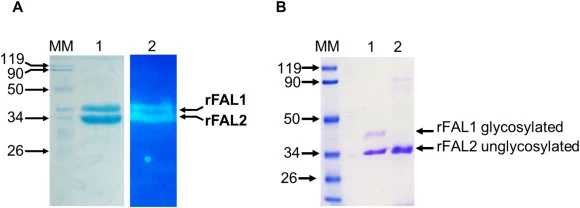
第 5 天的培养液被收集,用于经 Ni-IDA 柱固定化金属亲和层析纯化分泌型 rFAL,最终收率 47%,纯化倍数 2.5 倍(补充数据表 S1)。纯化蛋白组分经 SDS-PAGE 分析,结果显示存在上述两条蛋白条带,表观分子量约 36 与 34 kDa,分别命名为 rFAL1 与 rFAL2(图 3A)。为确定这两条纯化蛋白条带是否确实对应 rFAL 的两种形式,进行了酶谱实验,结果显示两条蛋白条带均具有脂解活性(图 3A)。两种形式的 rFAL 具有相同的含 6×His 标签的 C 端,因为二者均保留于 Ni-IDA 柱上。对两种 rFAL 形式前五个 N 端残基的测序也显示,两种蛋白形式具有相同的 N 端:AVGVT,与蛋白序列及 Saccharomyces cerevisiae α-因子信号肽融合的预期一致。这些发现提示 36 kDa 形式(rFAL1)由 34 kDa 形式(rFAL2)经翻译后修饰生成。rFAL 的一级序列显示在 N39 位存在一个非典型 N-糖基化位点 N-X-C(其中 X 在 rFAL 中为 G)。因此 rFAL 在 P. pastoris 中可能以两种形式表达:一种糖基化,另一种非糖基化。为验证该假设,将纯化 rFAL 与 Endo H 共孵育,结果 36 kDa 条带(rFAL1)强度下降,而 34 kDa 蛋白条带(rFAL2)增强(图 3B)。因此 rFAL1 是 rFAL2 的 N-糖基化形式。34 kDa 的 rFAL2 条带强度约为 36 kDa 的 rFAL1 的 2 至 3 倍,反映出预测 N-糖基化位点的不完全占据。毕赤酵母中的糖基化可因位点可及性与局部结构环境而因蛋白分子而异。这种部分且位点依赖的糖基化在其他于 P. pastoris 中表达的重组真菌脂肪酶中也有报道[54]。
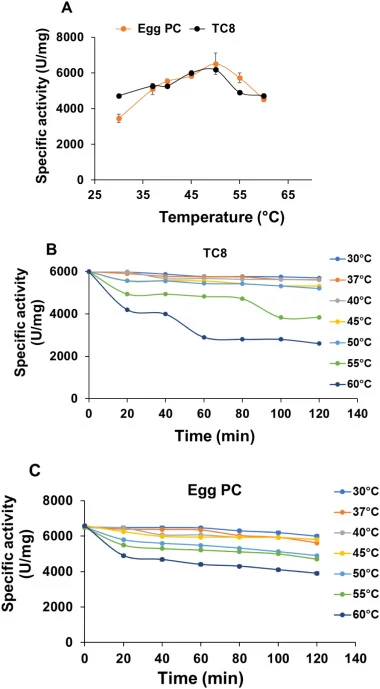
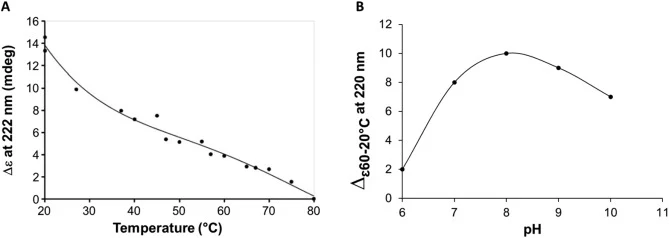
如图 4A 所示,rFAL 对 TC8 的 TG 脂肪酶活性与对 egg PC 的 PLA 活性均在 50 °C 温度下达到最大,且在 55 与 60 °C 时仍保留最大活性的 80% 至 70%。关于热稳定性,rFAL 在这些温度下孵育 120 min 后,在 30 至 50 °C 之间保持 80% 至 100% 的活性(图 4B、C)。然而,酶在 55 与 60 °C 时分别丧失其对 TC8 最大活性的 36% 与 57%(图 4B)。酶在 55 与 60 °C 时也分别丧失其对 egg PC 的 PLA 最大活性的 28% 与 40%(图 4C)。
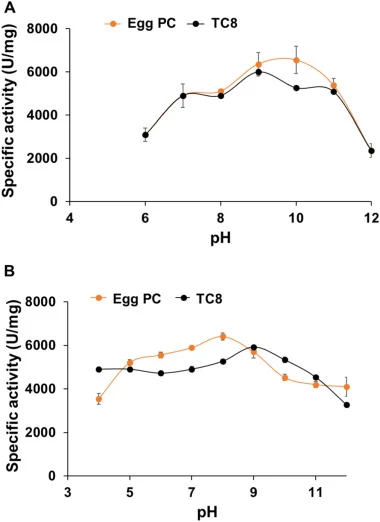
rFAL 在 pH 8.0 至 11.0 之间高度活跃,其 TG 脂肪酶与 PLA 活性的最适 pH 分别为 9.0 与 10.0(图 5A)。在 pH 11.0 时观察到的活性约为两类活性最适 pH 下观察值的 80%(图 5A)。相反,活性在酸性 pH 及高于 pH 11.0 时下降,在 pH 6.0 与 pH 12.0 时分别达到其残余活性的约 50% 与 36%(图 5A)。rFAL 的 pH 稳定性通过将酶在 4.0 至 12.0 的宽 pH 范围内于 50 °C 预孵育 1 h 后、在最适 pH 下测定残余活性来评价。如图 5B 所示,rFAL 在 pH 5.0 至 10.0 之间表现出优异稳定性,在 pH 5.0 与 10.0 时仍保留约 70–80% 的残余 PLA 活性,以及约 80–90% 的残余 TG 脂肪酶活性。
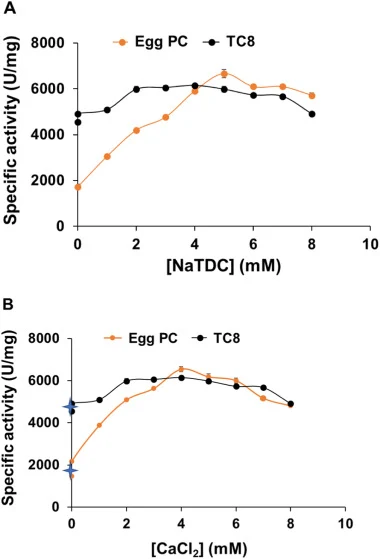
研究了不同浓度胆盐(NaTDC)对 rFAL 活性的影响。结果显示,TG 脂肪酶与 PLA 活性最高水平出现在 5 mM NaTDC(图 6A),该浓度高于 NaTDC 的临界胶束浓度(CMC = 2.4 mM;[55])。此外,结果表明 rFAL 在 8 mM NaTDC(>CMC;图 6A)下仍保留 80% 以上的活性。因此 rFAL 不同于受胆盐抑制的真菌脂肪酶[56]。进一步通过在不同浓度 CaCl2 存在下测定 TC8 与 egg PC 的水解速率,考察了 rFAL 对钙离子的依赖性。数据显示,添加 Ca2+ 提高 rFAL 活性,在 4 mM CaCl2 时达到最大(图 6B)。
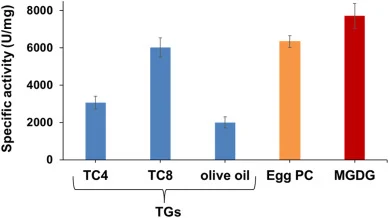
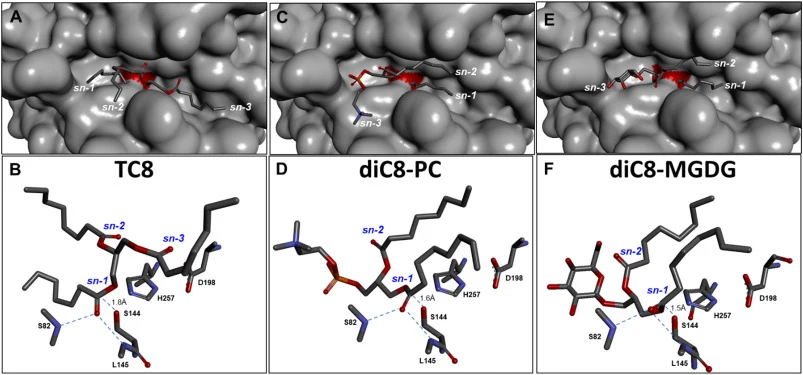
使用多种脂质底物评价 rFAL 的底物特异性,包括短链(TC4)、中链(TC8)与长链(橄榄油乳液)TG、PL(egg PC)以及半乳糖脂(diC8-MGDG)(图 6)。最高酶活在中链半乳糖脂(C8-MGDG)上观察到,达 7720 U/mg,其次为 PL(egg PC)上的比活 6500 U/mg 与中链(TC8)TG 上的比活 6000 U/mg(图 7)。rFAL 在橄榄油乳液(2000 U/mg)与 TC4(3000 U/mg)上的活性比在 TC8 上测得的低三倍至两倍(图 7)。
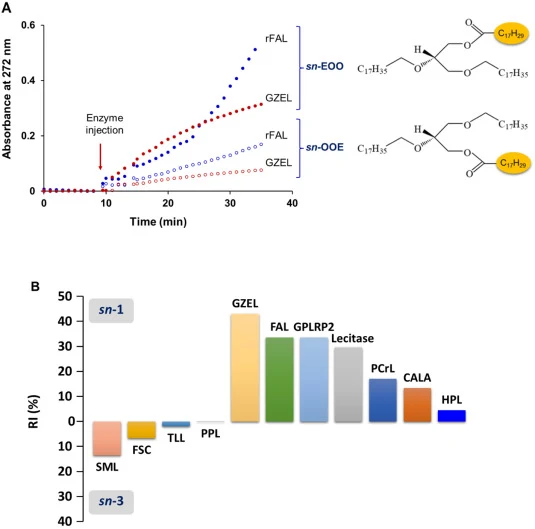
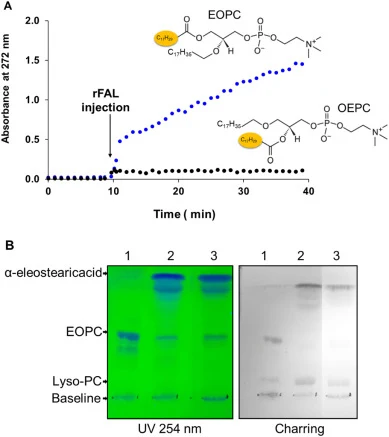
通过测定表面包被的 1-α-桐油酰基-2,3-十八烷基-sn-甘油(sn-EOO)与 1,2-十八烷基-3-α-桐油酰基-sn-甘油(sn-OOE)的水解速率,研究了 rFAL 与 GZEL 对 TG 底物 sn-1 或 sn-3 位的位置选择性。结果(图 8A)显示 sn-EOO 的水解速率高于 sn-OOE,表明这些酶对 TG 底物 sn-1 位具有明显偏好。rFAL 的比活经估算在使用 sn-EOO 时为 12.0 ± 0.7 U/mg,使用 sn-OOE 时为 5.9 ± 0.4 U/mg。采用位置选择性指数(RI)评估 rFAL 选择性水解给定 TG 底物特定位点的效率,该指数定量描述脂肪酶对 TG sn-1 位相对于 sn-3 位的偏好。rFAL 与 GZEL 的 RI 值……(原文此处节选截断)。
讨论与解读
rFAL 在 P. pastoris 中异源表达,纯化后得到两种活性蛋白,表观分子量分别为 34 与 36 kDa,对应 rFAL 的非糖基化与 N-糖基化形式,后者源于毕赤酵母中的翻译后修饰[59,60]。糖基化对真菌脂肪酶性能的影响已有先例:Yang 等[61]报道,在 P. pastoris 中表达的糖基化 Rhizopus chinensis 脂肪酶相比非糖基化形式具有更高的生产力、催化活性与稳定性;向 Rhizopus oryzae 脂肪酶引入糖基化位点可显著提高其表达水平与最大胞外活性,较非糖基化形式提高 518 倍[39]。靶向柔性、溶剂暴露的环区已被证明可增强酶活性与甲醇耐受性,如在工程化 Rhizomucor miehei 脂肪酶变体中所观察到的[39,62]。此外,在位于暴露环区的 TLL N33 位引入 N-糖基化显著提高了其热稳定性[63]。相比之下,rFAL 在 N39 位具有单个预测 N-糖基化位点,同样位于柔性环中,这可能部分贡献了其显著的热稳定性。尽管如此,仍需进一步研究以阐明该修饰在结构稳定性与催化性能中的确切作用。还应指出,糖基化并非普遍带来有益效应。
编译者解读:本研究的方法学价值在于将"一步 Ni-IDA 纯化 + MUFB 酶谱 + Endo H 去糖基化"这套低成本组合用于区分糖基化/非糖基化两种活性形式,避免了质谱级表征的高门槛;AlphaFold 模型结合对接则把 sn-1 位置选择性从动力学现象推进到结构解释。局限也明显:糖基化位点占据不完全(rFAL2 条带强度为 rFAL1 的 2–3 倍),且该修饰对热稳定性的贡献仍属相关性推测,未做 N39 突变验证。对合成生物学应用而言,rFAL 同时具备脂肪酶、磷脂酶与半乳糖脂酶活性,是脂质改性与生物质 valorization 的多功能候选,但异源表达产量(750 U/mL、6 天)与糖基化异质性仍是放大与批次一致性的瓶颈。
参考来源
Dab A. et al. Kinetic characterization and molecular modeling of a recombinant galacto(phospho)lipase from Fusarium annulatum overexpressed in Pichia pastoris. Biochimica et Biophysica Acta (BBA) - Molecular and Cell Biology of Lipids, 2026.
DOI: 10.1016/j.bbalip.2026.159780
DOI: 10.1016/j.bbalip.2026.159780