来源:High-yield production of protocatechuic acid in Escherichia coli W3110 using metabolic engineering and fermentation process optimization(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
原儿茶酸是植物源天然产物,具备抗氧化、抗菌、抗肿瘤等多种生物活性,在食品、保健品和医药领域应用广泛。本研究以大肠杆菌W3110为底盘,异源引入谷氨酸棒杆菌来源的3-脱氢莽草酸脱水酶QsuB并优化其表达,再通过增强合成通路与削弱竞争通路重塑碳流,最后在10 L生物反应器中优化补料分批发酵工艺,使原儿茶酸滴度达到32.58 g/L,葡萄糖摩尔得率34.31%,为原儿茶酸的规模化生物制造提供了工艺参考。
研究背景
植物源天然产物因多样的生理功能在人类健康领域地位日渐突出。原儿茶酸是其中代表性的一种,具有抗氧化、抗菌、抗肿瘤和抗衰老等活性,同时还是香兰素与没食子酸生物合成的关键前体,因而在食品、保健品和制药行业应用广泛——在食品领域可用作货架期延长剂、食品防腐剂和风味添加剂。当前原儿茶酸的高产生物合成备受关注。从植物中溶剂提取是常见路线,但产率低(如从 Gordonia axillaris 果实中仅得10.81 μg/g),工业应用受限。工业上原儿茶酸生产主要依赖香草酸羟基化的化学合成法,该路线使用盐酸等危险化学品、需要250°C高温反应条件,带来环境污染与高能耗成本。与植物提取相比,微生物发酵法具有环境友好、效率高等优势,构建微生物细胞工厂成为原儿茶酸绿色高效生物制造的重要策略,而大肠杆菌是细胞工厂构建中最常用的底盘之一。
研究方法
2.1 菌株、质粒与培养基
本研究所用菌株与质粒列于表S1。大肠杆菌DH5α用作载体构建的克隆菌株,大肠杆菌W3110作为原儿茶酸合成的底盘菌株。载体pTrc99A和pHY300PLK用于基因qsuB过表达载体的构建(图S1),CRISPR/Cas9系统用于基因整合和启动子替换。Ptrc启动子具有基础渗漏表达,驱动靶基因转录。原儿茶酸合成培养基组成为:45 g/L葡萄糖、10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、5.2 g/L KH2PO4、18.6 g/L K2HPO4·3H2O以及1 mL/L Trace Metal Mix A5(2.86 g/L H3BO3、1.81 g/L MnCl2·4H2O、0.22 g/L ZnSO4·7H2O、0.39 g/L Na2MoO4·2H2O、79 mg/L CuSO4·5H2O、49 mg/L Co(NO3)2·6H2O)。摇瓶发酵在装有25 mL培养基的250 mL摇瓶中进行,接种比例3%(v/v),初始OD600为0.12,于37°C、230 rpm培养48 h。每个实验设三个平行。
【数据】菌株:大肠杆菌DH5α(克隆)、大肠杆菌W3110(底盘);培养基:45 g/L葡萄糖、10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl、5.2 g/L KH2PO4、18.6 g/L K2HPO4·3H2O、1 mL/L Trace Metal Mix A5;接种量:3%(v/v);初始OD600:0.12;温度:37°C;转速:230 rpm;时间:48 h;平行数:3
2.2 重组菌株的构建
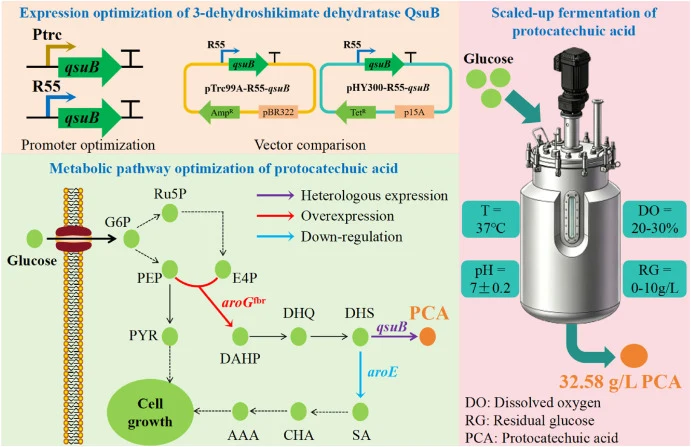
本研究设计的引物列于表S2。目标基因(aroE、aroG fbr,表S3)的染色体整合或启动子替换基于CRISPR/Cas9系统,参照此前描述的方法进行(Hu et al., 2021)。例如,将aroE的天然启动子ParoE替换为启动子PfliC(表S4)时,将携带相关N20序列(表S5)和同源臂区域的质粒pTargetF与质粒pCas9导入菌株W3110,以定位并切割目标启动子ParoE,进而获得相应重组菌株。3-脱氢莽草酸脱水酶(QsuB)过表达质粒的构建参照此前描述的方法(Zhan et al., 2022)。简言之,基因qsuB(表S3)与启动子(Ptrc、R55,表S4)经引物(表S2)扩增并融合,随后使用ClonExpress One Step Cloning Kit(Vazyme Biotech Co., Ltd,南京,中国)插入pTrc99A或pHY300PLK,获得相应过表达质粒。最后,这些质粒经电转化导入菌株W3110,通过菌落PCR验证、测序及NCBI BLAST序列比对获得相应重组菌株(图S2)。
【数据】系统:CRISPR/Cas9;质粒:pTargetF、pCas9、pTrc99A、pHY300PLK;启动子:Ptrc、R55、PfliC、ParoE;试剂盒:ClonExpress One Step Cloning Kit(Vazyme);验证方法:菌落PCR、测序、NCBI BLAST;原文未详述电转化参数
2.3 原儿茶酸生产的放大发酵工艺
10 L生物反应器发酵时,挑取菌株WP5单菌落接种至50 mL LB培养基,补加终浓度20 mg/L四环素,37°C培养12∼16 h。随后将10 mL一级种子液转接至两个预先装有300 mL LB培养基(各含终浓度20 mg/L四环素)的2 L摇瓶中,于37°C、230 rpm培养10∼12 h。之后,将600 mL二级种子液接种至预先装有5.4 L原儿茶酸发酵培养基(10 g/L葡萄糖、1%玉米浆、15 g/L胰蛋白胨、7.5 g/L酵母提取物、15 g/L NaCl、0.78 g/L KH2PO4、2.79 g/L K2HPO4·3H2O和1.5 mL/L Trace Metal Mix A5)的10 L生物反应器中进行补料分批发酵。发酵参数设置如下:初始通气量2 vvm,初始搅拌转速300 rpm,发酵温度恒定维持37°C。通过自动调节叶轮搅拌转速将溶解氧(DO)水平维持在20∼30%。根据菌株WP5在不同发酵阶段的葡萄糖消耗特性调节600 g/L葡萄糖母液的补料速率,使残糖浓度保持在0∼10 g/L。葡萄糖与氨水共同用于维持pH在7.0 ± 0.2,发酵24 h时补加终浓度6 mg/L四环素(0.3‰,v/v)。
【数据】种子培养基:LB + 20 mg/L四环素;一级种子:50 mL,37°C,12∼16 h;二级种子:2×300 mL,37°C,230 rpm,10∼12 h;发酵培养基体积:5.4 L;发酵培养基:10 g/L葡萄糖、1%玉米浆、15 g/L胰蛋白胨、7.5 g/L酵母提取物、15 g/L NaCl、0.78 g/L KH2PO4、2.79 g/L K2HPO4·3H2O、1.5 mL/L Trace Metal Mix A5;通气量:2 vvm;初始转速:300 rpm;温度:37°C;DO:20∼30%;补料:600 g/L葡萄糖母液;残糖:0∼10 g/L;pH:7.0 ± 0.2;24 h补加四环素:6 mg/L(0.3‰,v/v)
2.4 原儿茶酸的检测与分析
原儿茶酸分析时,收集1 mL发酵液样品,12,000 rpm离心2 min,随后用流动相(100%甲醇与0.1%甲酸,比例20%:80%)将发酵上清液稀释5∼200倍,稀释样品与原儿茶酸标准品(0.02∼0.2 g/L)经0.22 μm MCE注射器滤膜过滤。原儿茶酸滴度用配备C18柱(ZORBAX SBC18)的HPLC系统(Agilent Technologies,美国)分析。流动相为100%甲醇与0.1%甲酸,比例20%:80%,流速0.6 mL/min,温度维持30°C,检测时间与波长分别为15 min和254 nm。标准品与样品的代表性HPLC色谱图及保留时间(tR = 12.90 min)见图S3,原儿茶酸依据参比标准品制备的标准曲线定量。此外,原儿茶酸经LC-MS分析鉴定(图S4)。LC-MS分析:色谱分离在Waters BEH C18柱(2.1 × 100 mm,1.7 μm粒径)上进行。流动相A为含0.04%(v/v)乙酸的超纯水,流动相B为含0.04%(v/v)乙酸的乙腈。梯度洗脱程序设置如下:0–0.5 min,5% B;0.5–10 min,5%–95% B;10–12 min,保持95% B;12–12.1 min,95%–5% B;12.1–18 min,维持5% B进行柱再平衡。流速0.25 mL/min,柱温40°C,进样体积2 μL。质谱检测在配备电喷雾电离(ESI)源的Q-TOF质谱仪上以正离子模式进行。毛细管电压3000 V;离子源温度320°C;干燥气(氮气)流速10 L/min;雾化器压力35 psi。全扫描质量范围设为m/z 100–1000。对原儿茶酸准分子离子峰[M+H]+(m/z 155.027)进行靶向MS/MS碎裂以定性确证。该条件下原儿茶酸保留时间约为0.88 min。
【数据】离心:12,000 rpm,2 min;稀释倍数:5∼200倍;流动相:甲醇:0.1%甲酸 = 20%:80%;滤膜:0.22 μm MCE;标准品浓度:0.02∼0.2 g/L;色谱柱:ZORBAX SBC18;流速:0.6 mL/min;柱温:30°C;检测时间:15 min;波长:254 nm;保留时间:12.90 min;LC-MS柱:Waters BEH C18(2.1 × 100 mm,1.7 μm);LC-MS流速:0.25 mL/min;LC-MS柱温:40°C;进样量:2 μL;毛细管电压:3000 V;离子源温度:320°C;干燥气流速:10 L/min;雾化器压力:35 psi;扫描范围:m/z 100–1000;目标离子:m/z 155.027;LC-MS保留时间:约0.88 min
2.5 分析方法
细胞生物量通过测定发酵液的OD600衡量。残糖用固定化酶膜的生物传感器分析仪(SBA 40C,山东省科学院,中国)检测。基因(qsuB、aroG、aroE)转录水平用RT-qPCR分析,以16S rRNA为内参基因,参照此前描述的方法(Zhan et al., 2023)。简言之,发酵12 h时收集细胞样品。每个菌株设三个独立生物学重复。相对基因表达用2−ΔΔCT计算(ΔCT = CT目标基因−CT16S;ΔΔCT = ΔCT参比菌株−ΔCT目标菌株;基因表达水平 = 2−ΔΔCT)。各引物对的扩增效率用标准曲线法测定。内参基因16S rRNA经证实可在所有受试菌株中稳定表达。
【数据】生物量:OD600;残糖检测仪:SBA 40C(山东省科学院);取样时间:发酵12 h;内参基因:16S rRNA;生物学重复:3;计算方法:2−ΔΔCT;扩增效率:标准曲线法
2.6 统计分析
数据以各样品平均值 ± 标准差表示。所有数据进行方差分析,显著性水平为P > 0.05(NS)、P < 0.05()、P < 0.01()和P < 0.001(),平均值比较采用t检验,使用Statistica 6.0软件包。
【数据】统计软件:Statistica 6.0;显著性水平:P > 0.05(NS)、P < 0.05()、P < 0.01()、P < 0.001();检验方法:t检验;数据表示:平均值 ± 标准差
研究结果
3.1 原儿茶酸生物合成通路的构建与表征
原儿茶酸是应用价值突出、市场前景广阔的植物源天然产物。当前,将微生物底盘细胞改造为细胞工厂是目标产物绿色高效生物制造的重要策略,大肠杆菌是细胞工厂构建中最常用的底盘生物之一(Pan et al., 2026)。为构建高产原儿茶酸的大肠杆菌细胞工厂,本研究以大肠杆菌W3110为底盘,异源构建原儿茶酸生物合成通路(图2a)。
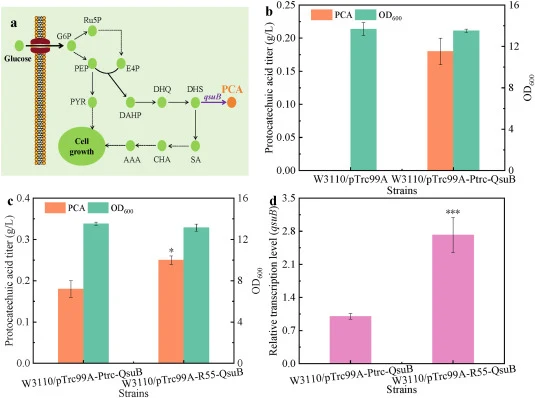
首先,异源引入谷氨酸棒杆菌来源的编码3-脱氢莽草酸脱水酶的基因qsuB,构建表达质粒pTrc99A-Ptrc-QsuB,其中QsuB表达由Ptrc启动子驱动,电转化导入菌株W3110,获得重组菌株WP1(W3110/pTrc99A-Ptrc-QsuB)。随后,用菌株WP1和对照菌株WP0(W3110/pTrc99A)进行摇瓶发酵。结果显示,异源引入3-脱氢莽草酸脱水酶QsuB后,菌株W3110成功获得合成原儿茶酸的能力,菌株WP1产原儿茶酸0.18 g/L(图2b)。至此,原儿茶酸生物合成通路在大肠杆菌W3110中成功构建。
同时,我们发现菌株WP1的原儿茶酸生物合成能力有限,我们推测源于QsuB表达不足。因此,我们着手优化QsuB表达水平。启动子是基因转录起始的开关,决定转录强度,已被优先作为优化目标蛋白表达的首选表达元件(Rao et al., 2023)。在此,将强杂合启动子R55(Rao et al., 2023)与Ptrc比较,并替换Ptrc启动子,构建表达载体pTrc99A-R55-QsuB,其中QsuB表达由R55启动子驱动,获得相应重组菌株WP2(W3110/pTrc99A-R55-QsuB)。结果显示,菌株WP2的原儿茶酸滴度高于菌株WP1,达到0.25 g/L(图2c),这与两菌株中qsuB基因的转录水平一致(图2d),表明提高关键酶QsuB的表达水平可增强大肠杆菌W3110的原儿茶酸合成能力。
【数据】菌株:WP1(W3110/pTrc99A-Ptrc-QsuB)、WP0(W3110/pTrc99A)、WP2(W3110/pTrc99A-R55-QsuB);WP1滴度:0.18 g/L;WP2滴度:0.25 g/L;启动子:Ptrc、R55
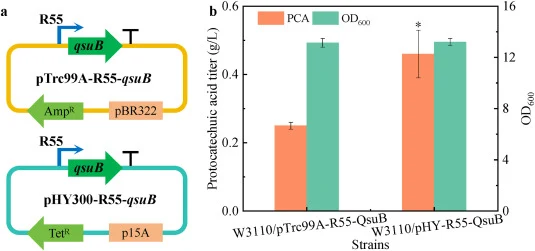
此前研究报道,游离表达质粒对宿主细胞的代谢负担与其拷贝数成正比,这可能不利于大肠杆菌中目标代谢物的生物合成(Jones et al., 2000; Oftadeh & Hatzimanikatis, 2024)。因此,将中拷贝数的大肠杆菌–芽孢杆菌穿梭载体pHY300PLK与pTrc99A比较,用其构建表达载体pHY-R55-QsuB(图3a),并构建相应重组菌株WP3(W3110/pHY-R55-QsuB)。我们发现菌株WP3的原儿茶酸滴度较菌株WP2提高84%,达到0.46 g/L(图3b,图S5),表明在受试条件下更换载体骨架提高了原儿茶酸滴度,质粒pHY300PLK更适合大肠杆菌中原儿茶酸的生物合成。
总之,我们通过QsuB的异源引入与表达优化,在大肠杆菌W3110中成功构建了原儿茶酸生物合成通路。所得重组菌株WP3实现了原儿茶酸的异源合成。
【数据】菌株:WP3(W3110/pHY-R55-QsuB);载体:pHY300PLK(中拷贝数穿梭载体)vs pTrc99A;WP3滴度:0.46 g/L;较WP2提升:84%
3.2 代谢通路优化促进原儿茶酸生物合成
基于上述结果,为进一步提高原儿茶酸滴度,我们旨在通过增强原儿茶酸合成通路和减弱竞争通路来推动碳流走向原儿茶酸生物合成,从而在大肠杆菌中实现原儿茶酸的有效合成。
#### 3.2.1 增强原儿茶酸合成通路
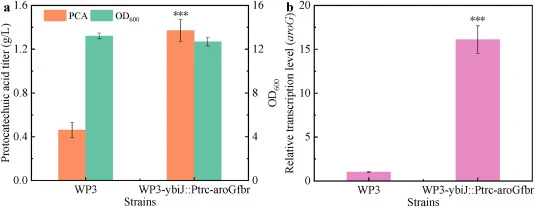
此前研究已证明,强化代谢合成通路是提高目标产物产量的有效策略。例如,通过增强大肠杆菌中莽草酸代谢通路,莽草酸和芳香族氨基酸的产量显著提高(Hirasawa et al., 2025)。原儿茶酸生物合成的两个主要前体是磷酸烯醇式丙酮酸(PEP)和赤藓糖-4-磷酸(E4P),二者经DAHP合酶(AroG)催化生成3-脱氧-D-阿拉伯糖-庚酮糖-7-磷酸(DAHP),从而将碳流引入莽草酸代谢通路。因此,提高AroG表达水平可推动碳流走向原儿茶酸。为此,我们构建了整合表达质粒pTargetF-ybiJ::Ptrc-aroG fbr,携带抗L-苯丙氨酸反馈抑制的突变体AroGfbr,将aroG fbr表达盒整合到菌株WP3基因组的ybiJ位点,获得重组菌株WP4(W3110-ybiJ::Ptrc-aroG fbr/pHY-R55-QsuB)。随后,用菌株WP4和对照菌株WP3进行摇瓶发酵。我们发现WP4产原儿茶酸1.37 g/L,较菌株WP3提高197.83%(图4a),这与两菌株中aroG的转录水平一致(图4b)。这些结果表明,通过增加aroG基因拷贝数提高其表达水平,可推动大肠杆菌中碳流进入莽草酸代谢通路,从而提高原儿茶酸滴度。
【数据】菌株:WP4(W3110-ybiJ::Ptrc-aroG fbr/pHY-R55-QsuB)、对照WP3;整合位点:ybiJ;突变体:AroGfbr(抗L-Phe反馈抑制);WP4滴度:1.37 g/L;较WP3提升:197.83%
#### 3.2.2 减弱原儿茶酸的竞争通路
此前研究报道,减弱或阻断目标产物合成的竞争通路,可有效减少碳流损失或防止碳流流向副产物,从而促进目标产物合成(Jin et al., 2026; Wang, Zhang, Liu, et al., 2026)。其中,阻断目标产物合成的竞争通路容易带来细菌生长代谢失衡的风险。因此,减弱目标产物的竞争通路是更有效、更合适的策略。原儿茶酸合成的主要竞争通路是莽草酸脱氢酶(AroE),它将3-脱氢莽草酸转化为莽草酸。在此,我们利用弱启动子在转录水平上减弱原儿茶酸合成的竞争通路。选取弱启动子PfliC,构建启动子替换表达载体pTargetF-PfliC-aroE。以菌株WP4为基础,将基因aroE的天然启动子ParoE替换为启动子PfliC,获得重组菌株WP5(WP4-PfliC-aroE)。随后,用菌株WP5和对照菌株WP4进行摇瓶发酵。结果显示,WP5的原儿茶酸滴度为2.28 g/L,较菌株WP4提高66.42%(图5a)。同时,我们发现PfliC介导的aroE转录水平下降81.7%(图5b)。这些结果表明,用弱启动子减弱aroE表达水平可有效促进原儿茶酸合成,这与此前关于减弱竞争通路促进目标产物合成的报道一致(Jin et al., 2026)。此外,YdiB是一种莽草酸脱氢酶,在大肠杆菌中也能将3-脱氢莽草酸转化为莽草酸。菌株WP5中aroE的转录水平经弱启动子PfliC下调81.7%,而非完全敲除。因此,YdiB可能部分补偿……
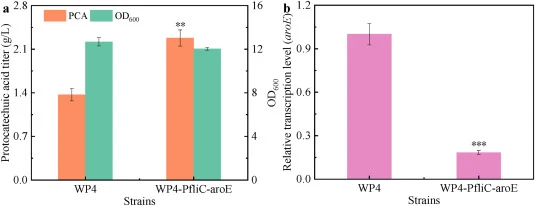
【数据】菌株:WP5(WP4-PfliC-aroE)、对照WP4;启动子:PfliC替换ParoE;WP5滴度:2.28 g/L;较WP4提升:66.42%;aroE转录水平下降:81.7%
3.3 补料分批发酵工艺优化
在10 L生物反应器中,对菌株WP5进行补料分批发酵,以评价其放大生产原儿茶酸的性能(图6a)。补料分批发酵结果显示,原儿茶酸滴度在发酵过程中持续积累。随后对补料分批发酵工艺进行优化(图6b),最终原儿茶酸滴度达到32.58 g/L,较摇瓶水平提高13.29倍,葡萄糖摩尔得率为34.31%(mol/mol)。该滴度与得率高于此前报道的常规补料分批发酵水平(表S7)。
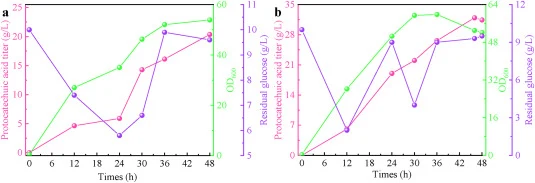
【数据】反应器:10 L生物反应器;菌株:WP5;最终滴度:32.58 g/L;较摇瓶提高:13.29倍;葡萄糖摩尔得率:34.31%(mol/mol)
讨论与解读
大肠杆菌W3110是优良的底盘细胞,已被改造为多种高附加值化合物高产生产的微生物细胞工厂。本研究通过构建异源原儿茶酸生物合成通路,并进行代谢通路优化(包括增强合成通路和减弱竞争通路),构建了能够从头合成原儿茶酸的重组菌株WP5,摇瓶发酵原儿茶酸滴度达2.28 g/L(图S7)。随后,通过补料分批发酵工艺优化,10 L生物反应器中原儿茶酸滴度达到32.58 g/L,较摇瓶水平提高13.29倍,葡萄糖摩尔得率34.31%,高于此前报道的常规补料分批发酵水平(表S7)。该工作成功实现了大肠杆菌W3110中原儿茶酸的高产,为原儿茶酸放大发酵工艺设计提供了参考。
编译者解读:该研究的亮点在于"通路—载体—启动子—工艺"四层协同:先用中拷贝穿梭载体缓解代谢负担,再以弱启动子部分下调aroE而非彻底敲除,保留了细胞生长与代谢的平衡余地,这种"减而不破"的调控思路值得借鉴。局限在于竞争通路仅转录水平削弱、未做全敲除与YdiB补偿的系统验证,且放大工艺依赖经验性补料策略。若进一步引入动态调控或基因组整合以减少质粒依赖,工业化稳定性有望提升。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110363
DOI: 10.1016/j.fbio.2026.110363