来源:Development of an scFv-based electrochemical biosensor for robust detection of Tilapia Lake Virus(Bioelectrochemistry)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
罗非鱼湖病毒(TiLV)可致养殖罗非鱼高达90%的死亡率,而现有RT-PCR/RT-qPCR诊断依赖中心实验室、难以田间部署。本研究在大肠杆菌BL21(DE3)中以16 °C低温诱导联合β-环糊精与甘氨酸化学伴侣,表达出高纯度(>95%)、可溶的抗TiLV单链抗体(scFv-TiLV,约33.5 kDa),经Ni-NTA与Resource Q两步纯化后,通过EDC/NHS偶联固定于金纳米颗粒修饰的激光诱导石墨烯电极,构建无标记电化学免疫传感器。该传感器在PBS与鱼血清基质中均实现10²–10⁶ copies/mL的宽线性检测(R²分别为0.9918与0.9914),血清基质检测限达42.85 copies/mL,对6种非靶标病毒交叉响应均低于3 μA。
研究背景
罗非鱼养殖是全球食品生产中增长最快的板块之一,为世界各地小规模养殖户提供廉价动物蛋白与经济支撑。但这一产业的可持续性正受到新发传染病的严重威胁。TiLV属于Amnoonviridae科、有包膜负链RNA病毒,主要侵袭罗非鱼的肝脏、神经系统与结缔组织,引发合胞体肝炎、严重眼部病变,感染养殖场死亡率可达90%。自首次报道以来,TiLV疫情已在多个大洲被记录,造成严重经济损失并威胁依赖水产养殖地区的粮食安全。要遏制TiLV在鱼场内部及鱼场之间的快速传播,早期、快速、高灵敏的诊断工具不可或缺。
目前TiLV检测的金标准主要是分子方法(RT-PCR、RT-qPCR)或常规血清学方法(ELISA)。这些技术灵敏度与特异性虽高,却存在明显短板:分子方法依赖集中化的实验室基础设施与复杂操作,难以满足田间常规检测需求。在此背景下,本研究报道了一种无标记电化学生物传感器,其识别元件为针对TiLV新设计的重组单链可变区片段抗体(scFv-TiLV),旨在为分散化病毒诊断提供稳健、简化且可及的替代方案。
研究方法
2.1 伦理批准
本研究的动物使用方案经泰国曼谷农业大学(Kasetsart University)机构动物护理与使用委员会批准(批准号 ACKU67-VET-038)。该方案经审查,符合泰国国家研究委员会(NRCT)伦理审查委员会制定的动物护理与使用伦理准则。所有涉及鱼组织与血清采集、处理的操作均严格遵循上述获批的机构与国家准则。
【数据】批准号:ACKU67-VET-038;批准机构:Kasetsart University 机构动物护理与使用委员会;伦理依据:NRCT 伦理审查委员会准则;原文未详述其他参数
2.2 材料与试剂
本研究使用的TiLV阴性血清样本取自Lueangyangyuen等(2022)[25]描述的既往实验感染试验。鱼的感染状态通过靶向TiLV基因组第3片段的RT-qPCR验证[26],采集的血清样本在适当储存条件下保存至使用。此外,TiLV毒株由泰国农业大学兽医学院从感染的尼罗罗非鱼(Oreochromis niloticus)肝脏中分离并验证。肝组织中的初始病毒载量测定为1.97 × 10⁷ copies/g。简言之,从感染肝组织中提取总RNA,逆转录为cDNA,并使用TiLV-112F/TiLV-112R引物对进行定量,该引物对扩增出112 bp的扩增子。病毒拷贝数通过对含TiLV第3片段靶序列的质粒进行十倍系列稀释所生成的标准曲线做绝对定量来确定。每个样本的拷贝数通过将平均Ct值外推至质粒标准曲线计算[26]。含约10⁷ copies/mL的TiLV感染肝提取物作为整个研究期间生物传感器校准与分析验证的储备样本。scFv-TiLV基因经合成并克隆入pET-28a(+),重组蛋白在大肠杆菌BL21(DE3)中表达。用于特异性评价的对照病毒样本包括登革病毒(DENV)、SARS-CoV-2(CoV2)、禽流感病毒(H5N1)、寨卡病毒(ZIKV)、白斑综合征病毒(WSSV)与黄头病毒(YHV)。蛋白表达、纯化与表征所用试剂,包括TB培养基、卡那霉素、异丙基-β-D-硫代半乳糖苷(IPTG)、溶菌酶、Triton X-100、β-环糊精、甘氨酸及标准实验室化学品,均购自商业供应商。蛋白纯化使用Ni-NTA琼脂糖树脂(QIAGEN,德国)与Resource Q阴离子交换柱(GE Healthcare Life Sciences,瑞典)。蛋白浓度使用NanoDrop 2000分光光度计(Thermo Scientific,美国)测定。金纳米颗粒修饰的激光诱导石墨烯(LIG-AuNPs)电极由泰国国家纳米技术中心(NANOTEC)制备。半胱胺、1-乙基-3-(3-二甲氨基丙基)碳二亚胺(EDC)、N-羟基琥珀酰亚胺(NHS)、乙醇胺及铁/铁氰化物氧化还原试剂购自Sigma-Aldrich(美国)。
【数据】病毒载量:1.97 × 10⁷ copies/g(肝组织);扩增子:112 bp;引物:TiLV-112F/TiLV-112R;储备样本浓度:约10⁷ copies/mL;卡那霉素:50 μg/mL;树脂:Ni-NTA琼脂糖;色谱柱:Resource Q;仪器:NanoDrop 2000;原文未详述其他试剂用量
2.3 scFv-TiLV的序列分析与载体构建
抗TiLV单链可变区片段(scFv-TiLV)是通过对Chamtim等(2022)[27]最初建立并表征的抗TiLV单克隆抗体进行反向工程设计的。简言之,抗TiLV单克隆抗体重链与轻链可变区通过液相色谱-串联质谱(LC-MS/MS)测序。序列被设计为scFv-TiLV。scFv-TiLV在结构上由VH结构域与VL结构域组成,二者通过富含甘氨酸-丝氨酸(Gly-Ser)的柔性连接肽相连。结构注释、框架区(FRs)与互补决定区(CDRs)依据ImMunoGeneTics(IMGT)唯一编号系统完整分类,如示意图1所示[28]。工程化构建体的全长氨基酸架构见补充图S1。相应核苷酸序列经合成并亚克隆入pET-28a(+)表达载体,以引入C端六聚组氨酸(His6)标签用于下游亲和纯化。
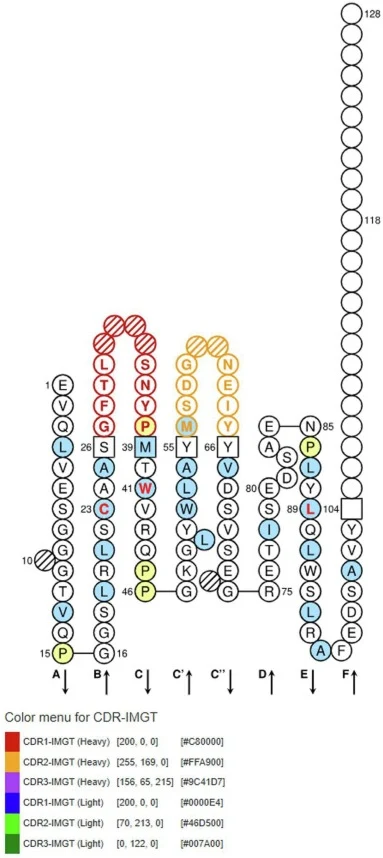
【数据】抗体来源:抗TiLV单克隆抗体(Chamtim等,2022);测序方法:LC-MS/MS;结构域:VH + VL;连接肽:Gly-Ser柔性连接肽;标签:C端His6;载体:pET-28a(+);编号系统:IMGT;原文未详述其他参数
2.4 重组蛋白表达
将重组pET-28a(+)/scFv-TiLV质粒转化入感受态大肠杆菌BL21(DE3)细胞。一级种子培养在含50 μg/mL卡那霉素的Terrific Broth(TB)培养基中启动,于37 °C、200 min⁻¹轨道振荡维持16–18 h。大规模表达时,过夜种子培养液按5%(v/v)比例接种入250 mL新鲜TB培养基(补充50 μg/mL卡那霉素)。培养物于37 °C(200 min⁻¹)生长至600 nm光密度(OD600)约0.7。为最大化可溶蛋白折叠并减少包涵体形成[29,30],通过加入0.25 mM IPTG并同时加入由7.5 mM β-环糊精与2.5 g/L(0.033 M)甘氨酸组成的化学伴侣与渗透剂进行异源诱导表达。诱导后,培养物转移至设定16 °C的培养箱,以180 min⁻¹振荡48 h。随后于4 °C、8000 × g离心5 min收获细菌细胞。
【数据】宿主:E. coli BL21(DE3);培养基:TB;卡那霉素:50 μg/mL;种子培养:37 °C、200 min⁻¹、16–18 h;接种比例:5%(v/v);诱导OD600:约0.7;IPTG:0.25 mM;β-环糊精:7.5 mM;甘氨酸:2.5 g/L(0.033 M);诱导温度:16 °C;诱导振荡:180 min⁻¹;诱导时间:48 h;收获离心:8000 × g、5 min、4 °C
2.5 两步色谱纯化
将细胞沉淀重悬于裂解缓冲液(50 mM Tris-HCl pH 8.0、300 mM NaCl),并加入2%(v/v)Triton X-100与1 mg/mL溶菌酶(每克湿细胞重使用5 mL缓冲液)。冰上使用探针超声破碎,振幅30%,工作循环为开10 s、关30 s,共6–8轮。粗裂解液于4 °C、12,000 × g离心30 min澄清,随后经0.45 μm注射器滤膜过滤。第一步纯化中,澄清上清液加载至预先用结合缓冲液(50 mM Tris-HCl pH 8.0、300 mM NaCl)平衡的Ni-NTA琼脂糖亲和柱(QIAGEN)。通过递增咪唑浓度(5、10、15、20、50与100 mM)的阶梯洗脱梯度去除非特异性结合蛋白。目标His6标签scFv-TiLV蛋白使用250 mM咪唑成功洗脱。第二步精纯中,合并Ni-NTA洗脱组分,于4 °C对低盐缓冲液A(50 mM Tris-HCl pH 7.5、50 mM NaCl、5 mM MgCl₂、1 mM EDTA、1 mM β-巯基乙醇、10% v/v甘油)充分透析16–18 h。透析样本经0.22 μm滤膜过滤后注入Resource Q阴离子交换色谱柱(GE Healthcare Life Sciences)。蛋白分离由线性氯化钠梯度驱动(0–50%缓冲液B;缓冲液B为缓冲液A骨架中含1 M NaCl)。
【数据】裂解缓冲液:50 mM Tris-HCl pH 8.0、300 mM NaCl;Triton X-100:2%(v/v);溶菌酶:1 mg/mL;缓冲液用量:5 mL/g湿细胞重;超声:振幅30%、开10 s/关30 s、6–8轮;离心:12,000 × g、30 min、4 °C;滤膜:0.45 μm;洗脱咪唑梯度:5、10、15、20、50、100 mM;洗脱咪唑:250 mM;透析:4 °C、16–18 h;缓冲液A:50 mM Tris-HCl pH 7.5、50 mM NaCl、5 mM MgCl₂、1 mM EDTA、1 mM β-巯基乙醇、10% v/v甘油;NaCl梯度:0–50%缓冲液B(1 M NaCl);滤膜:0.22 μm
2.6 蛋白浓缩与定量
从Resource Q柱回收的纯化scFv-TiLV组分合并后透析回储存缓冲液(50 mM Tris-HCl pH 7.5、50 mM NaCl、5 mM MgCl₂、1 mM EDTA、1 mM β-巯基乙醇、10% v/v甘油)。使用10 kDa截留分子量的Centricon离心超滤系统(Millipore)完成体积缩减。最终蛋白浓度在NanoDrop 2000分光光度计(Thermo Scientific)上通过280 nm吸光度测定,消光系数由scFv序列理论计算得出。纯化组分闪冻后保存于−80 °C。
【数据】储存缓冲液:50 mM Tris-HCl pH 7.5、50 mM NaCl、5 mM MgCl₂、1 mM EDTA、1 mM β-巯基乙醇、10% v/v甘油;超滤截留分子量:10 kDa;检测波长:280 nm;储存温度:−80 °C;仪器:NanoDrop 2000、Centricon超滤系统(Millipore)
2.7 生物传感器制备与电极修饰
免疫电极的制备流程见示意图2A。金纳米颗粒修饰的激光诱导石墨烯(LIG-AuNPs)工作电极经彻底清洗后,通过孵育5 μL 50 mM半胱胺[31,32]进行功能化,条件为25 °C、控湿(20%–60% RH)、1 h,以建立自组装单分子层(SAM)。暴露环境胺末端后,去除多余半胱胺(原文此处节选结束,后续步骤原文未详述)。
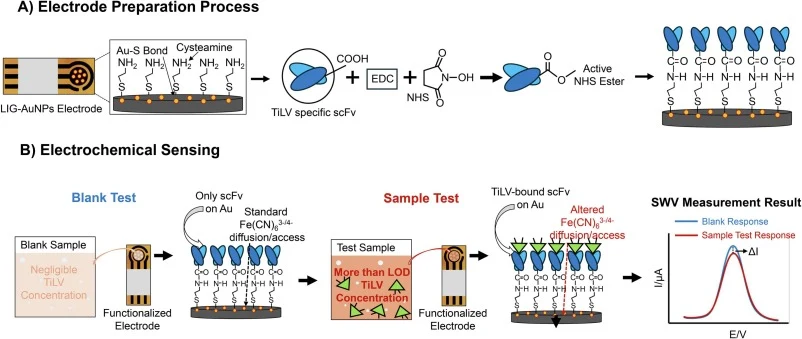
【数据】电极:LIG-AuNPs;半胱胺:5 μL、50 mM;孵育温度:25 °C;孵育时间:1 h;湿度:20%–60% RH;原文后续步骤未详述
研究结果
3.1 重组scFv-TiLV的表达与两步纯化
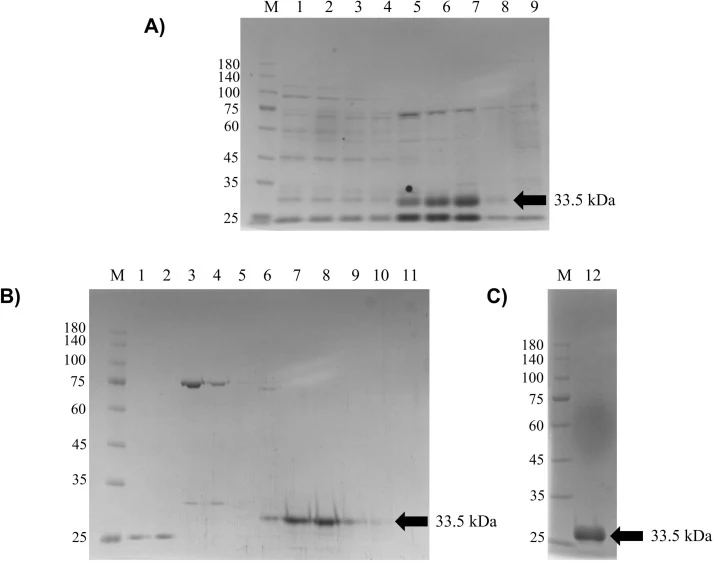
重组抗TiLV scFv蛋白在大肠杆菌BL21(DE3)中使用经化学伴侣工程化的低温诱导策略有效表达,以保证可溶性。Ni-NTA亲和色谱的初始捕获阶段显示,随咪唑阶梯洗脱梯度宿主细胞蛋白被逐步去除,目标scFv在250 mM咪唑洗脱处特异性解析(图1A)。随后经Resource Q阴离子交换色谱的高分辨率精纯,有效去除了少量共洗脱污染物与痕量聚集体。目标蛋白在线性NaCl梯度中被选择性解析(图1B)。合并这些高度精纯的组分并离心浓缩,得到高度均一的蛋白制品,在12% SDS-PAGE凝胶上于约33.5 kDa处显示单一锐利条带(图1C)[34]。光密度分析确认,最终scFv-TiLV制品的绝对纯度超过95%。
【数据】目标条带分子量:约33.5 kDa;凝胶浓度:12% SDS-PAGE;纯度:>95%;洗脱咪唑浓度:250 mM;NaCl梯度:线性;原文未详述其他数值
3.2 PBS缓冲液中TiLV的电化学检测与校准
所开发scFv-TiLV免疫电极的主要分析能力通过监测标准PBS缓冲液中的电流变化来评价。如图2A所示,TiLV颗粒与表面固定scFv受体的特异性结合导致[Fe(CN)₆]³⁻/⁴⁻ SWV峰电流出现稳定的、浓度依赖性下降(表S2)。这一系统性下降证实,scFv-TiLV免疫复合物的形成显著改变了电极表面,影响氧化还原探针的电化学响应。对该电流下降的定量显示,其与10²至10⁶ copies/mL的对数浓度尺度作图呈高度线性关系。PBS中相应线性回归方程确定为:ΔI = 1.3391 ln x + 1.6333,相关系数极佳(R² = 0.9918)。这一稳健相关性表明,固定的scFv片段在标准缓冲条件下保持稳定且功能活跃,可实现可靠的基线追踪。
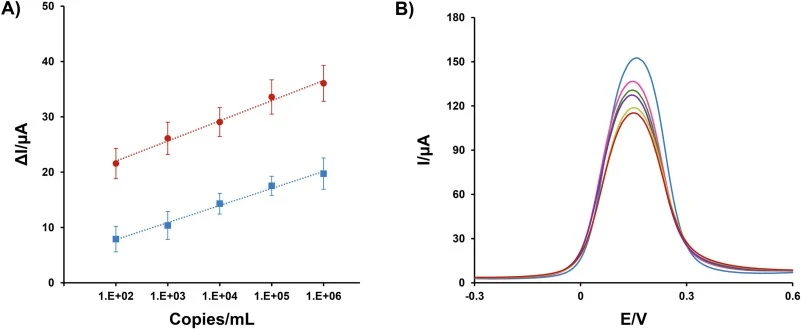
【数据】线性范围:10²–10⁶ copies/mL;回归方程:ΔI = 1.3391 ln x + 1.6333;R²:0.9918;检测技术:SWV;氧化还原探针:[Fe(CN)₆]³⁻/⁴⁻;原文未详述其他数值
3.3 血清基质中的诊断性能与检测限
为使该检测向临床水产养殖实用性转化,在复杂血清基质中开展了验证试验。将TiLV直接加标入血清会引入大量背景蛋白与脂质,可能掩盖传感器表面。然而,通过实施10倍样本稀释方案,传感器在整个动态范围(10²至10⁶ copies/mL)内成功保持了定量能力,如图2A与表S2所示。血清基质中病毒捕获引起的特异性电化学变化见图2B的SWV伏安图。稀释血清校准的数学模型给出回归方程:ΔI = 1.5832 ln x + 14.693,线性度很高(R² = 0.9914)。有趣的是,在等量病毒载量下,血清曲线较PBS曲线表现出更大的基线电流变化(ΔI)。这一现象表明,10倍稀释有效平衡了表面污染,而残余离子基质优化了界面双电层,降低了电荷转移电阻,放大了病毒捕获时的信号下降。利用血清空白合并标准差(σ = 1.80),计算得血清中稀释前LOD为42.85 copies/mL当量,操作LOQ为128.55 copies/mL。该灵敏度水平契合水产养殖设施早期病毒遏制所需的诊断窗口。
【数据】稀释倍数:10倍;线性范围:10²–10⁶ copies/mL;血清回归方程:ΔI = 1.5832 ln x + 14.693;R²:0.9914;血清空白合并标准差:σ = 1.80;LOD:42.85 copies/mL;LOQ:128.55 copies/mL
3.4 初步特异性与交叉反应分析
为确认观察到的电流下降(ΔI)完全由特异性scFv-TiLV结合驱动而非非特异性吸附,免疫电极接受了一组非靶标病毒病原体的挑战。如图3A所示,暴露于DENV、CoV2、H5N1、ZIKV、WSSV与YHV产生的电流响应可忽略不计,所有非靶标变化均远低于3 μA(表S3)。形成鲜明对比的是,与10⁶ copies/mL目标TiLV孵育触发了36.7 μA的显著电流下降。单因素方差分析(one-way ANOVA)继以Tukey诚实显著性差异(HSD)检验确认,TiLV与所有非靶标病原体之间的平均差异显著超过计算的HSD阈值(HSD = 25.30,q临界值(0.05, 5, 10)= 4.65,SE = 5.44,p值 = 0.02)。这些发现表明,该传感器具有高选择性,能有效区分TiLV与其他无关病毒实体,证明其诊断可靠性[35,36]。
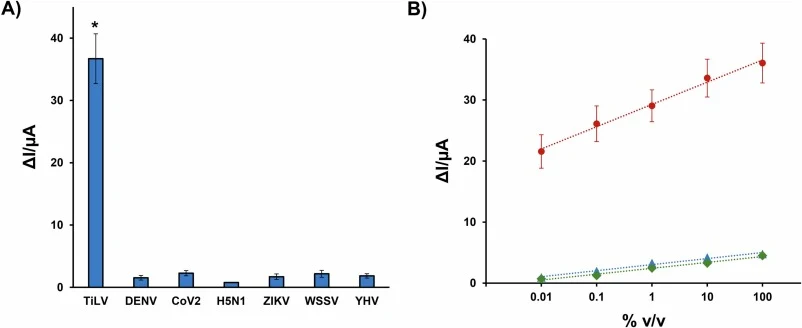
【数据】非靶标病毒:DENV、CoV2、H5N1、ZIKV、WSSV、YHV;非靶标响应:<3 μA;TiLV(10⁶ copies/mL)响应:36.7 μA;HSD:25.30;q临界值(0.05, 5, 10):4.65;SE:5.44;p值:0.02;统计方法:one-way ANOVA + Tukey HSD
3.5 基质效应与组织特异性干扰
由于本研究所用TiLV阳性样本是通过将感染组织提取物加标入健康鱼血清制备的,因此必须验证观察到的电化学响应完全由目标病毒驱动,而非肝组织基质共提取的内源性生物分子。为排除潜在假阳性干扰,将取自便利店与新鲜传统市场的健康罗非鱼肝提取物——使用相同提取方案获得——按0.01%至100% v/v的浓度梯度加标入健康血清(图3B)。如图3B所示,免疫电极在所有测试浓度的健康肝共提取物下均表现出可忽略的电流响应(ΔI),背景信号保持接近基线(表S4)。这一基线稳定性证实,肝匀浆中存在的非靶标细胞碎片与组织特异性蛋白不诱导非特异性结合,也不干扰scFv-TiLV相互作用。因此,这些结果验证了诊断信号对病毒颗粒具有高度特异性,确保使用组织提取的病毒储备液进行血清加标不会引入混杂基质伪影或假阳性读数。
【数据】肝提取物加标浓度:0.01%–100% v/v;电流响应:可忽略(接近基线);样本来源:便利店与新鲜传统市场健康罗非鱼肝;原文未详述具体电流数值
讨论与解读
水产养殖现场可部署诊断要求识别平台高度稳定、成本可控且特异。本研究成功从传统昂贵全长抗体转向抗TiLV的scFv。通过低温(16 °C)联合β-环糊精与甘氨酸作为化学伴侣优化异源表达,克服了大肠杆菌中包涵体聚集的常见难题,获得高可溶、正确折叠的scFv分子[37,38]。Ni-NTA亲和继以Resource Q阴离子交换的两步纯化策略,交付了纯度极高(>95%,约33.5 kDa)的蛋白制品,为一致的电极功能化提供了理想基线[39]。电化学数据表明,固定的scFv-TiLV构建体保留了足够的功能性识别能力。不过,由于EDC/NHS偶联基于可用羧基与氨基的反应,固定过程无法严格控制scFv在电极表面的取向。因此,scFv结合位点可及性可能出现差异,或影响传感器的有效结合容量与电化学响应。本研究未直接表征固定scFv的可及性与取向(原文讨论节选至此结束)。
编译者解读:该工作的方法学价值在于把"难表达"的scFv用低温+化学伴侣的组合拳做成可溶现货,再用两步色谱把纯度推到95%以上——这是电化学免疫电极获得可重复基线的前提。血清10倍稀释后LOD达42.85 copies/mL,且对6种水产/人源病毒交叉响应均<3 μA,说明特异性来自scFv本身而非基质屏蔽。局限也很清楚:EDC/NHS随机取向固定会损失部分结合容量,且文中未做取向表征;此外仅做了加标血清验证,缺真实临床样本队列。若后续引入定向固定(如His标签-镍表面或位点特异性偶联),灵敏度与批间一致性仍有提升空间。
参考来源
期刊:Bioelectrochemistry, 2027
DOI: 10.1016/j.bioelechem.2026.109472
DOI: 10.1016/j.bioelechem.2026.109472