来源:Transcriptomic identification and modulation of key transcription factors and target genes for high-efficiency glucose utilization and lycopene production in Saccharomyces cerevisiae(Food Bioscience)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
番茄红素市场需求持续增长,但微生物发酵中过量葡萄糖带来的代谢负担制约了产量。本研究以产番茄红素酿酒酵母YLY-41为出发菌株,通过比较转录组学在20、30、40 g/L初始葡萄糖条件下挖掘响应糖浓度的转录因子,经单基因敲除与过表达筛选、组合调控,获得在40 g/L葡萄糖下产量提升51.47%的工程菌株,并在7 L发酵罐中实现2091.60 mg/L的番茄红素产量。研究为高糖条件下萜类化合物高效合成提供了可操作的调控靶点与碳流重编程策略。
研究背景
番茄红素是分子式C40H56的脂溶性类胡萝卜素,具抗氧化、抗癌及心血管保护等多种生理功能,广泛应用于营养保健品、功能食品、化妆品和医药领域。微生物发酵法生产番茄红素因可持续性和经济性而具备商业化前景,全球番茄红素市场预计2032年将达到2.5亿美元。葡萄糖是微生物发酵最常用的碳源。酵母细胞工厂对环境葡萄糖浓度的适应性对天然产物生物合成至关重要:碳供应不足会降低代谢通量并造成能量亏缺,延迟进入对数生长期、限制细胞增殖,并制约乙酰辅酶A与NADPH等关键前体的供应,从而阻碍类胡萝卜素积累;适度葡萄糖浓度支持细胞快速生长与增殖,形成足够生物量支撑类胡萝卜素合成;但葡萄糖浓度过高会触发渗透胁迫,对酵母生长和代谢性能产生不利影响。高葡萄糖还会引发碳代谢溢流,积累乙醇、甘油和有机酸等副产物,分流通向目标产物的碳资源。因此,系统解析酵母对初始葡萄糖浓度的转录响应,并据此改造调控网络,是提升糖基生物合成效率的关键切入点。
研究方法
2.1 菌株与培养基
本研究以实验室前期构建的菌株YLY-41为初始菌株(Huang et al., 2024)。所有酵母菌株见表1。酵母浸出粉胨葡萄糖(YPD)培养基(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)用于工程酵母菌株的培养、感受态细胞制备和摇瓶发酵。补充200 μg/mL遗传霉素的YPD培养基用于KanMX标记筛选。SD-FOA(含1 mg/mL 5-氟乳清酸的SD完全培养基)用于筛选KanMX-URA3-PRB322ori标记切除的酵母菌株。大肠杆菌DH5α用于质粒构建。含抗生素(50 μg/mL卡那霉素)的Luria–Bertani培养基(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl)用于大肠杆菌培养。
【数据】菌株:YLY-41(出发菌)、DH5α(质粒构建);培养基:YPD(10 g/L酵母提取物、20 g/L蛋白胨、20 g/L葡萄糖)、LB(10 g/L胰蛋白胨、5 g/L酵母提取物、10 g/L NaCl);抗生素:遗传霉素200 μg/mL、卡那霉素50 μg/mL;SD-FOA:5-氟乳清酸1 mg/mL;原文未详述培养温度与时间(本节)
2.2 质粒与重组酵母菌株构建
表S1和表S2分别详列本研究所用质粒和引物。引物由生工生物工程(上海,中国)合成。DNA片段、启动子和同源臂以酿酒酵母S228C基因组DNA为模板经PCR扩增。质粒pUMRI作为酵母基因组构建的模板(Zhou et al., 2019)。质粒DNA和PCR产物分别使用TIANprep Rapid Mini Plasmid Kit(天根,北京,中国)和HiPure PCR Pure Maxi Kit(美基,广州,中国)纯化。使用诺唯赞(南京,中国)的One Step Cloning Kit进行质粒连接,实现两个或多个具有20 bp重叠区域的DNA片段的连接。pUMRI构建体在同源臂连接处线性化,通过醋酸锂/聚乙二醇/单链载体DNA转化法整合入酵母基因组(Gietz, 2014)。所有转化子经PCR验证。正确的菌落随后在30°C、220 rpm条件下培养12小时。URA3切除触发重复Loxp侧翼间的重组,产生5-FOA抗性(Brachmann et al., 1998)。挑选5-FOA抗性菌落,通过在YPD和YPD(G418)培养基上平板涂布筛选目标标记丢失。
【数据】重叠区域:20 bp;转化方法:醋酸锂/PEG/单链载体DNA;验证后培养:30°C、220 rpm、12 h;抗性筛选:5-FOA、G418;质粒模板:pUMRI;基因组模板:S228C;原文未详述PCR扩增条件与连接反应参数
2.3 酵母菌株摇瓶发酵
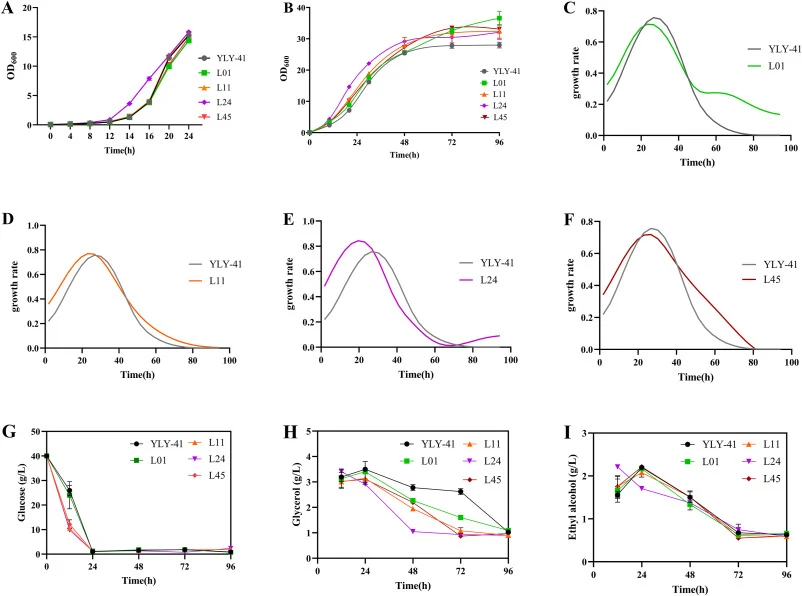
从平板上挑取单菌落接种至4 mL YPD液体培养基。培养物于30°C、220 rpm、避光条件下过夜培养。这些种子培养物随后接种至含50 mL YPD培养基的250 mL摇瓶中,初始OD600为0.05。培养物在相同条件下维持96小时。通过分光光度计测定OD600监测细胞生长。
【数据】种子液体积:4 mL;摇瓶:250 mL装50 mL;初始OD600:0.05;温度:30°C;转速:220 rpm;时间:96 h;避光培养;原文未详述过夜培养具体时长
2.4 番茄红素提取与产量检测
采用热HCl丙酮法从细胞中提取番茄红素(Xie et al., 2015)。番茄红素分析采用高效液相色谱(HPLC)系统(Agilent 1200 LC),配备C18柱(5 μm,4.6 mm × 150 mm),UV/VIS检测波长472 nm。流动相为乙腈-甲醇-异丙醇(50:30:20 v/v),流速1 mL/min,柱温40°C。制备番茄红素标准曲线用于定量(图S1)。
【数据】色谱柱:C18(5 μm,4.6 mm × 150 mm);检测波长:472 nm;流动相:乙腈-甲醇-异丙醇=50:30:20(v/v);流速:1 mL/min;柱温:40°C;提取方法:热HCl丙酮法
2.5 发酵代谢物分析
发酵液的代谢物分析采用Agilent 1200系列高效液相色谱系统。分离在Bio-Rad HPX-87H离子交换柱上完成,以5 mmol/L H2SO4为流动相,流速0.6 mL/min,等度洗脱。采用Agilent示差折光检测器(RID)定量葡萄糖、果糖、乙醇和甘油,条件为:进样体积20 μL,柱温45°C,运行时间30 min。有机酸分析采用Agilent紫外(UV)检测器,进样体积20 μL,柱温60°C,运行时间25 min。所有目标代谢物的定量均基于校准曲线(表S3)。
【数据】色谱柱:Bio-Rad HPX-87H离子交换柱;流动相:5 mmol/L H2SO4;流速:0.6 mL/min;进样体积:20 μL;RID柱温:45°C、运行30 min(糖/醇类);UV柱温:60°C、运行25 min(有机酸);原文未详述UV检测波长
2.6 RNA-seq分析
为表征产番茄红素酵母菌株对不同葡萄糖浓度的转录响应,细胞在补充20、30或40 g/L葡萄糖的YPD培养基中培养。摇瓶培养物于30°C、220 rpm培养96 h,分别在12、24、48、72和96 h收集细胞样品。每个条件和时间点制备三个独立生物学重复,以支持差异基因表达的稳健统计分析。总RNA使用HiPure Yeast RNA Kit(美基,广州,中国)提取。RNA-seq文库由北京诺禾致源生物信息科技有限公司构建并在Illumina平台上测序。原始reads质控后,通过RSEM中的期望最大化算法对基因表达进行定量并归一化为FPKM。差异表达分析使用DESeq2 R包,由生物学重复估计离散度以计算校正P值(padj)。以padj ≤ 0.05且|log2FC| ≥ 1定义差异表达基因(DEGs)。
【数据】葡萄糖浓度:20、30、40 g/L;温度:30°C;转速:220 rpm;时间:96 h;取样点:12、24、48、72、96 h;生物学重复:3个;差异标准:padj ≤ 0.05且|log2FC| ≥ 1;归一化:FPKM;原文未详述测序平台具体型号与读长
2.7 中心碳代谢物靶向代谢组学分析
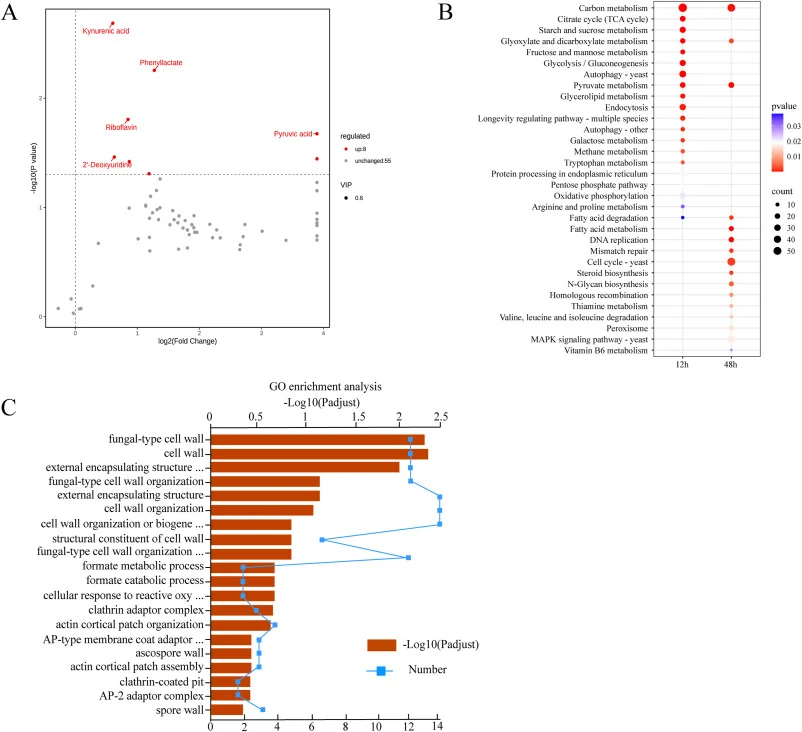
中心碳代谢物靶向代谢组学分析由百迈客生物科技有限公司(北京,中国)采用超高效液相色谱-三重四极杆串联质谱(UHPLC-QQQ-MS/MS)完成(An et al., 2020; Zheng et al., 2016)。收集菌株Y-ΔYC+M和YLY-41在12 h和48 h的细胞样品。样品用乙腈/水(7:3,v/v)经25 Hz珠磨匀浆10 min提取,随后涡旋、冰上孵育30 min,并于4°C、12,000 × g离心10 min。上清液经0.22 μm膜过滤后进行UHPLC-MS/MS分析。色谱分离在ACQUITY UPLC BEH Amide柱(1.7 μm,2.1 × 150 mm;Waters)上完成,采用二元梯度洗脱:流动相A(含10 mmol/L乙酸铵和5 μmol/L亚甲基二膦酸的水溶液)和流动相B(含10 mM乙酸铵和5 μmol/L亚甲基二膦酸的90%乙腈),流速400 μL/min。柱温维持40°C,进样体积1 μL。质谱检测在SCIEX QTRAP 6500+系统上进行,配备IonDrive Turbo V ESI源,在正、负离子化模式下以多反应监测(MRM)模式运行。数据采集和绝对定量使用SCIEX Analyst Workstation Software(v1.7.2)和Sciex OS(v2.0.1)完成。差异代谢物依据倍数变化(FC)≥ 1.5、变量投影重要性(VIP)≥ 1和p值 < 0.05的标准筛选。
【数据】提取液:乙腈/水=7:3(v/v);匀浆:25 Hz、10 min;冰上孵育:30 min;离心:12,000 × g、10 min、4°C;滤膜:0.22 μm;色谱柱:ACQUITY UPLC BEH Amide(1.7 μm,2.1 × 150 mm);流速:400 μL/min;柱温:40°C;进样体积:1 μL;流动相A:10 mmol/L乙酸铵+5 μmol/L亚甲基二膦酸;流动相B:90%乙腈+10 mM乙酸铵+5 μmol/L亚甲基二膦酸;差异标准:FC ≥ 1.5、VIP ≥ 1、p < 0.05;取样时间:12 h、48 h
2.8 工程酵母菌株补料分批发酵
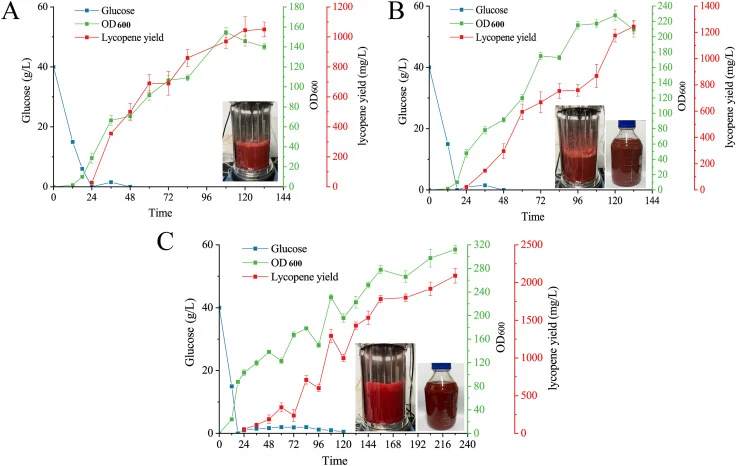
7 L生物反应器发酵中,单菌落首先接种至4 mL YPD培养基,于30°C、220 rpm培养24小时制备一级种子液。随后,按1%(v/v)将种子液转接至含350 mL YPD培养基的1 L摇瓶中,继续培养15–17小时生成二级种子液。二级种子液全部接种至含3.5 L YPD培养基(10 g/L酵母提取物、20 g/L蛋白胨、40 g/L葡萄糖)和1.5 g/L无水硫酸镁的7 L发酵罐中。发酵过程分为三个阶段。第一阶段,菌株消耗生物反应器中的初始营养物质。第二阶段,为促进细胞快速生长,添加两种补料液。补料液1由600 g/L葡萄糖、10.24 g/L MgSO4·7H2O、18 g/L KH2PO4、7 g/L K2SO4和20 mL微量元素液A(10.2 g/L ZnSO4·7H2O、0.5 g/L MnCl2·4H2O、0.86 g/L CoCl2·6H2O、0.56 g/L Na2Mo……(原文此处节选截断)
【数据】一级种子:4 mL YPD、30°C、220 rpm、24 h;二级种子:350 mL YPD、1 L摇瓶、15–17 h、接种量1%(v/v);发酵罐:7 L装3.5 L;发酵培养基:10 g/L酵母提取物、20 g/L蛋白胨、40 g/L葡萄糖、1.5 g/L无水硫酸镁;补料液1:600 g/L葡萄糖、10.24 g/L MgSO4·7H2O、18 g/L KH2PO4、7 g/L K2SO4、20 mL微量元素液A(10.2 g/L ZnSO4·7H2O、0.5 g/L MnCl2·4H2O、0.86 g/L CoCl2·6H2O、0.56 g/L Na2Mo……);原文补料液1组分及后续补料策略在节选处截断,未详述
研究结果
3.1 工程酵母对初始葡萄糖浓度的响应
为评估初始葡萄糖浓度对酿酒酵母YLY-41番茄红素合成和细胞生长的影响,在20、30、40和50 g/L葡萄糖下进行摇瓶发酵,以20 g/L为对照。发酵持续96 h,每24 h取样测定生物量和番茄红素。初始葡萄糖浓度从20 g/L增至50 g/L,细胞生物量依次增加,生长趋势一致(图1A)。番茄红素产量随葡萄糖升高而上升,但在50 g/L时受到抑制。在20、30、40和50 g/L葡萄糖下,番茄红素滴度分别为194.01、312.89、354.41和221.5 mg/L,相应得率分别为9.70、10.43、8.86和5.53 mg/g葡萄糖。40 g/L葡萄糖时菌株番茄红素滴度最高,为354.41 mg/L(对照的1.82倍),得率8.86 mg/g葡萄糖,较对照下降8.67%(图1B)。后续研究旨在进一步提升40 g/L初始葡萄糖浓度下的番茄红素生产效率。随后定量了不同葡萄糖浓度下发酵液中的关键代谢物。所有对照组中,葡萄糖含量在24小时内快速下降,48小时内基本耗尽(图1C)。甘油和乙醇在24小时内大量积累并达到峰值,随后逐渐被消耗。初始葡萄糖浓度越高,乙醇和甘油的积累量越大(图1D、E)。在酿酒酵母中,调控甘油代谢、乙醇代谢和甘油酸循环等竞争途径可有效提高乙酰辅酶A的可利用性,从而促进萜类合成(Wang et al., 2024)。这些碳代谢中间产物与番茄红素合成途径直接相关。此外,葡萄糖浓度升高还促进柠檬酸和琥珀酸等多种有机酸的积累(图S2)。柠檬酸是乙酰辅酶A的重要来源,减少其溢流代谢可优化萜类生产(Zhang et al., 2025)。这表明随葡萄糖浓度升高,发酵过程中积累更多副产物,可能与番茄红素得率下降有关。
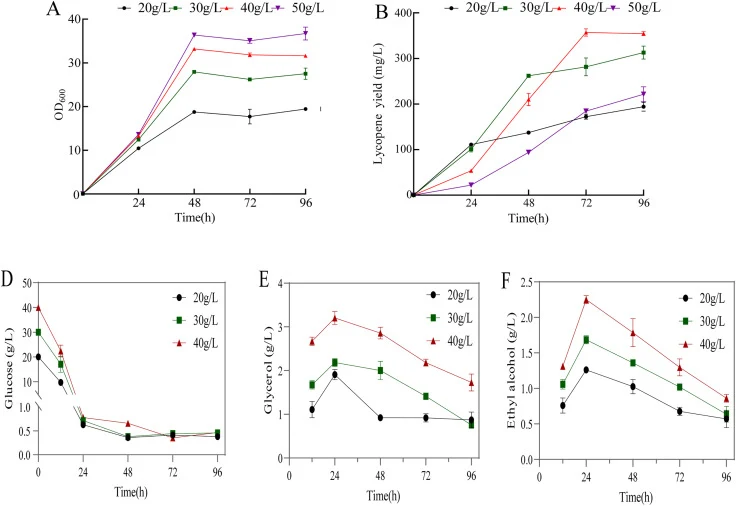
【数据】葡萄糖浓度:20、30、40、50 g/L;发酵时间:96 h;取样间隔:24 h;番茄红素滴度:194.01、312.89、354.41、221.5 mg/L;得率:9.70、10.43、8.86、5.53 mg/g葡萄糖;40 g/L滴度为对照1.82倍;得率较对照下降8.67%;葡萄糖24 h快速下降、48 h基本耗尽;甘油/乙醇24 h达峰
3.2 工程酵母对初始葡萄糖浓度的转录组学分析
为深入解析酿酒酵母葡萄糖诱导胁迫响应的机制,开展比较转录组分析,鉴定20、30和40 g/L初始葡萄糖浓度下差异表达的基因。通过将30 g/L和40 g/L葡萄糖组与对照(20 g/L)比较筛选DEGs(图2A)。30-vs-20比较中,12、24、48、72和96 h的DEG数分别为206、1557、605、136和329。随初始葡萄糖浓度升高,DEG数量也显著增加。40-vs-20比较中,12、24、48、72和96 h的DEG数分别为304、2403、2044、863和863。两个比较组的DEG数量均呈先升高后逐渐降低的趋势。12 h检测到的DEG较少,暗示此阶段细胞主要受葡萄糖浓度调控。24 h和48 h DEG数量急剧增加,可能由多种胞外代谢副产物大量积累对细胞产生强烈刺激和胁迫所致。此外,40-vs-20比较获得的DEG多于30-vs-20比较。72 h后,随着发酵进行毒性副产物逐渐被消耗,组间胞外环境差异减小,DEG数量显著下降。为探究酵母细胞对高初始葡萄糖浓度(40 g/L)的胁迫响应,对40-vs-20比较的DEGs进行KEGG通路富集分析(图2B、C)。酵母在高糖胁迫下发生明显的时间性转录重编程,伴随从呼吸向发酵的代谢转变和胁迫防御系统的逐步激活。12 h时,糖酵解/糖异生和碳代谢相关通路显著上调,反映细胞通过加速葡萄糖摄取和增加分解代谢通量以缓解高渗冲击。24至48 h,胞外副产物积累标志着进入适应性胁迫响应阶段。MAPK信号通路、内质网蛋白加工和自噬相关通路上调,促进错误折叠蛋白和受损线粒体的清除。抗氧化防御(包括半胱氨酸和蛋氨酸代谢、谷胱甘肽代谢)同步动员以缓解ROS积累。相反,碳代谢下调,核糖体生物合成和RNA聚合酶通路显著受抑,反映全局翻译抑制,将细胞资源从增殖转向胁迫适应。发酵后期(72–96 h),上调代谢通路的富集明显减弱,伴随整体代谢活性下降,细胞仅维持基础生理功能。值得注意的是,上调通路主要局限于DNA复制和氧化磷酸化。相反,氨基酸生物合成、次级代谢产物生物合成和内质网蛋白加工等多条通路显著下调。
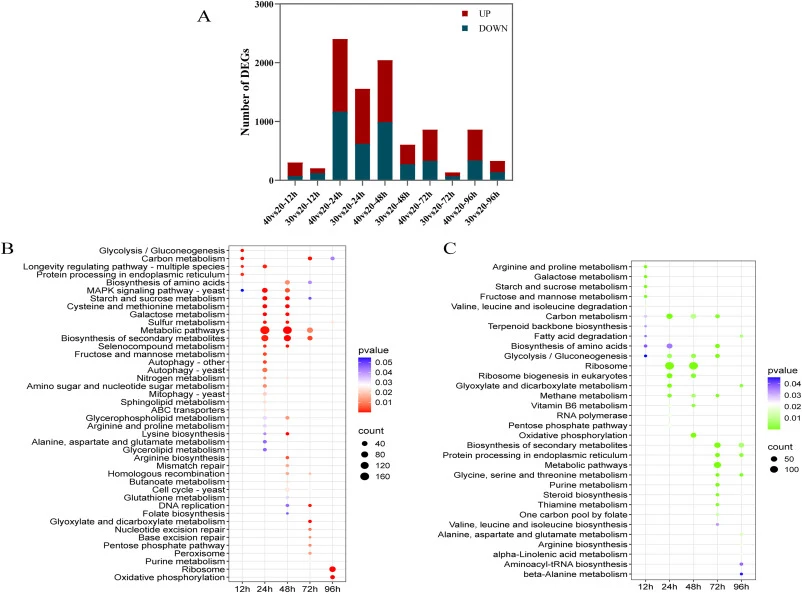
【数据】比较组:30-vs-20、40-vs-20(对照20 g/L);30-vs-20 DEG数:12 h=206、24 h=1557、48 h=605、72 h=136、96 h=329;40-vs-20 DEG数:12 h=304、24 h=2403、48 h=2044、72 h=863、96 h=863;差异标准:padj ≤ 0.05、|log2FC| ≥ 1;关键上调通路:糖酵解/糖异生、碳代谢(12 h)、MAPK信号、内质网蛋白加工、自噬、半胱氨酸/蛋氨酸代谢、谷胱甘肽代谢(24–48 h)、DNA复制、氧化磷酸化(72–96 h);关键下调通路:碳代谢、核糖体生物合成、RNA聚合酶(24–48 h)、氨基酸生物合成、次级代谢产物生物合成、内质网蛋白加工(72–96 h)
3.3 系统挖掘转录因子促进番茄红素合成
通过挖掘和调控特定环境刺激下的细胞响应基因,可增强细胞适应能力,从而同时促进细胞生长和代谢产物合成(Wang et al., 2025; Xiao et al., 2026)。转录因子作为能通过控制多个基因重编程细胞转录的关键调控因子,是本研究的主要焦点。12 h期间,40 vs. 20和30 vs. 20比较组的DEG数量均相对较少。因此,我们从24、48、72和96 h两个比较组共有的DEGs中筛选TFs(图S3A)。这些TFs在一个或多个时间点在两个比较组中同时显著上调或下调(|log2倍数变化| ≥ 1),提示其对糖浓度变化的一致调控(表2)。其表达水平热图见图S3B。这些TFs编排营养利用、胁迫适应和关键发育转变的转录程序。以YLY-41菌株为基础,我们分别敲除下调TFs GCN4、HAC1、NDD1、PUT3、STP4、TYE7、URC2、XBP1和YAP7,构建重组菌株。NDD1、URC2和YAP7的缺失同时促进酵母生长和番茄红素生产。重组菌株生物量分别增加6.24%(ΔNDD1)、11.19%(ΔURC2)和12.26%(ΔYAP7),番茄红素滴度分别提高28.42%、14.98%和10.68%。其中菌株Y-ΔNDD1番茄红素产量最高,达427.33 mg/L(图3A)。在酿酒酵母中,Ndd1作为有丝分裂基因簇的专用转录激活因子,该基因簇包含编码有丝分裂关键调控因子的基因。这一核心作用使NDD1成为控制有丝分裂进程的枢纽。此外,其活性受DNA损伤响应中的磷酸化抑制(Edenberg et al., 2015)。URC2是一种推测的Zn(II)2Cys……(原文此处节选截断)
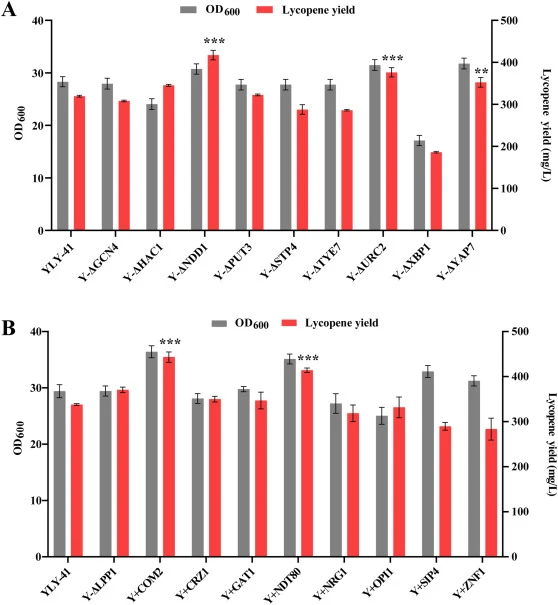
【数据】筛选时间点:24、48、72、96 h;筛选标准:|log2FC| ≥ 1;敲除TFs:GCN4、HAC1、NDD1、PUT3、STP4、TYE7、URC2、XBP1、YAP7;生物量增幅:ΔNDD1=6.24%、ΔURC2=11.19%、ΔYAP7=12.26%;滴度增幅:28.42%、14.98%、10.68%;Y-ΔNDD1滴度:427.33 mg/L;出发菌株:YLY-41
讨论与解读
本研究通过比较转录组学在20、30、40 g/L初始葡萄糖条件下系统挖掘响应糖浓度的转录因子与靶基因。单基因敲除筛选发现NDD1、URC2、YAP7缺失可同时提升细胞生长与番茄红素产量,其中Y-ΔNDD1滴度达427.33 mg/L。组合调控NDD1、URC1、YAP7、COM2、NDT80及靶基因CWP2进一步优化菌株性能,工程菌Y-ΔYC+M在40 g/L葡萄糖摇瓶中番茄红素滴度达565.99 mg/L,较对照提高51.47%。转录组分析显示Y-ΔYC+M中碳代谢与TCA循环显著上调,强化了碳资源利用;靶向中心碳代谢组与胞外代谢物谱显示胞内丙酮酸升高、乙酸与甘油积累减少,表明碳流优先导向萜类合成途径、副产物损失最小化。7 L发酵罐中番茄红素产量最终达2091.60 mg/L。作者指出,未来工作应聚焦于对TF调控机制提供更深入的生物学解释与实验验证,并可通过定向进化或理性工程改造这些TFs或其靶基因以进一步提升表型性能;在更广泛的萜类合成背景下,生产场景可能需要应对更高葡萄糖浓度或更复杂的胁迫培养条件。
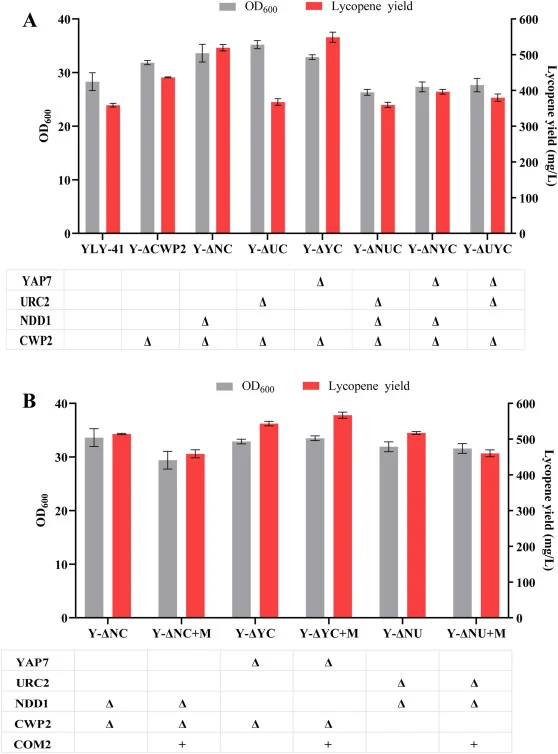
编译者解读:该研究的可取之处在于把"糖浓度胁迫"当作可调控的转录程序而非单纯工艺参数,用时间序列转录组锁定跨浓度一致响应的TFs,再以单敲除—组合叠加的经典合成生物学路径快速收敛到NDD1/URC2/YAP7等靶点,方法链条清晰、可复制性强。局限也明显:TF调控机制仍停留在转录谱关联层面,缺乏直接靶基因结合证据;组合调控仅在摇瓶与单一补料策略下验证,7 L罐放大数据与摇瓶提升幅度之间的定量关系未充分拆解。对工业萜类生产而言,这套"响应基因挖掘—TF改造—碳流重定向"的组合值得迁移到其他高糖胁迫场景。
参考来源
期刊:Food Bioscience, 2026
DOI: 10.1016/j.fbio.2026.110287
DOI: 10.1016/j.fbio.2026.110287