来源:De novo biosynthesis of the plant-derived aloe-emodin in Aspergillus nidulans via artificial pathway assembly and temporal flux control(Metabolic Engineering)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
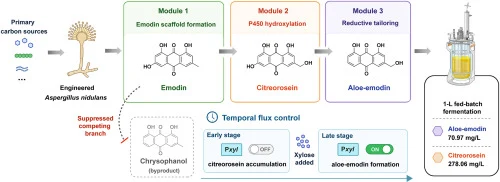
植物提取芦荟大黄素受限于生长周期长、得率低与环境依赖。本研究在构巢曲霉中模块化组装人工途径:先重建最小上游模块并强化前体供给,获得86.93 mg/L大黄素;引入异源P450 CYP-H6231催化羟甲基化生成橘黄酮;再叠加MdpK/C/B还原修饰模块延伸至芦荟大黄素。针对组成型表达导致的通量失衡与大黄酚副产物积累,采用对mdpK的时序诱导实现通量重分配。1-L补料分批发酵最终产出278.06 mg/L橘黄酮与70.97 mg/L芦荟大黄素。
研究背景
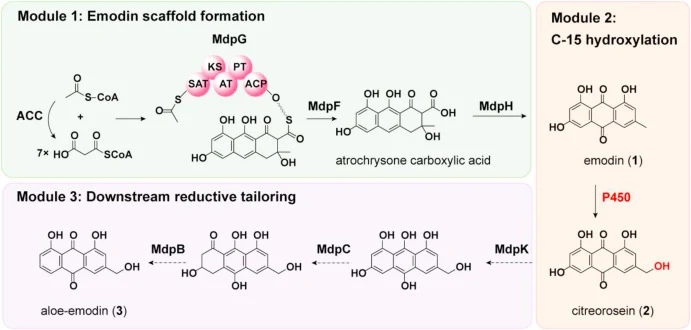
蒽醌类是一类结构多样的芳香聚酮,具有广泛治疗潜力。大黄素(1)是多种生物活性衍生物的中心骨架:其C-15甲基氧化可生成橘黄酮(2)与芦荟大黄素(3)。橘黄酮具有较强抗炎活性;芦荟大黄素则是高值药用化合物,具有抗癌、抗病毒与抗菌活性。目前芦荟大黄素主要从芦荟、掌叶大黄等植物中提取,但植物生产存在生长周期长、环境不稳定、提取效率低的问题。化学合成虽为替代路线,却常依赖高温下酸辅助与金属辅助氧化,纯化繁琐,且可能产生不需要的副产物。微生物生物转化已被用于生产某些蒽醌衍生物,但这些过程通常依赖外源供给前体,因此并不代表真正的从头合成。芦荟大黄素的从头重建仍受制于途径步骤未解析与工程宿主中代谢通量分配不佳两大难题。本研究即以构巢曲霉为宿主,通过人工途径的模块化组装与时序通量控制来填补这一空白。
研究方法
2.1 一般实验程序
聚合酶链式反应(PCR)使用2 × Phanta Flash Master Mix(Vazyme,南京,中国)与2 × Taq Plus Master Mix(CWBIO,北京,中国)进行。所有引物均由Tsingke Biotech(杭州,中国)合成,DNA测序亦由该公司完成。高效液相色谱(HPLC)分析在Agilent 1260 Infinity HPLC系统(Agilent Technologies,Santa Clara,CA,USA)上进行,配备Agilent C18分析柱(4.6 × 250 mm,5 μm)。液相色谱–质谱(LC–MS)分析在Agilent 6230 LC/MS系统上使用COSMOSIL C18-MS-II柱(4.6 × 250 mm,5 μm)进行。液相色谱–高分辨质谱(LC–HRMS)分析在ACQUITY UPLC系统(Waters,Milford,MA,USA)上进行,该系统与配备电喷雾电离(ESI)源的TripleTOF 6600+质谱仪(SCIEX,Framingham,MA,USA)联用。色谱分离在ACQUITY UPLC BEH C18柱(2.1 × 100 mm,1.7 μm;Waters,Milford,MA,USA)上进行。
【数据】PCR试剂:2 × Phanta Flash Master Mix、2 × Taq Plus Master Mix;HPLC柱:Agilent C18(4.6 × 250 mm,5 μm);LC–MS柱:COSMOSIL C18-MS-II(4.6 × 250 mm,5 μm);LC–HRMS柱:ACQUITY UPLC BEH C18(2.1 × 100 mm,1.7 μm);其余参数:原文未详述
2.2 菌株与培养基
真菌菌株构巢曲霉LO8030用于菌株构建(Chiang et al., 2016)。产孢时,构巢曲霉LO8030菌株在37 °C下于葡萄糖基本培养基(GMM;1%葡萄糖、0.5% v/v 20 ×硝酸盐、0.01% v/v微量元素、1.6%琼脂)中培养。山梨醇基本培养基(SMM;1%葡萄糖、1.2 M D-山梨醇、0.5% v/v 20 ×硝酸盐、0.01% v/v微量元素、2%琼脂)用于筛选营养缺陷型转化子。酵母提取物–葡萄糖培养基(YG;2%葡萄糖、0.5%酵母提取物、0.01% v/v微量元素)用于孢子萌发。含淀粉的液体基本培养基(LMM-S;2%淀粉、0.5% v/v 20 ×硝酸盐、0.01% v/v微量元素)用于化合物生产。20 ×硝酸盐溶液含120.0 g/L NaNO3、10.4 g/L KCl、10.4 g/L MgSO4·7H2O与30.4 g/L KH2PO4。微量元素溶液含22 g/L ZnSO4·7H2O、11 g/L H3BO3、5 g/L MnCl2·4H2O、5 g/L FeSO4·7H2O、1.6 g/L CoCl2·5H2O、1.6 g/L CuSO4·5H2O、1.1 g/L (NH4)6Mo7O24·4H2O与50 g/L Na4EDTA。需要时,向培养基中加入营养缺陷型补充物,终浓度如下:5 mM尿苷、5 mM尿嘧啶、1 μg/mL盐酸吡哆醇与0.25 μg/mL核黄素。酿酒酵母BJ5464用于体内酵母DNA转化关联重组(TAR)克隆,在30 °C下于合成定义(SD)培养基(6.7 g/L酵母氮源、2%葡萄糖、1% v/v 100 ×补充物、5% v/v 20 ×缺陷液)中培养。100 ×补充物含2 g/L L-组氨酸盐酸盐、10 g/L L-亮氨酸与2 g/L L-色氨酸。20 ×缺陷液含300 mg/L L-异亮氨酸、1500 mg/L L-缬氨酸、500 mg/L L-苯丙氨酸、200 mg/L L-精氨酸盐酸盐、300 mg/L L-酪氨酸、300 mg/L L-苏氨酸、300 mg/L L-赖氨酸、200 mg/L L-甲硫氨酸与600 mg/L 腺嘌呤半硫酸盐。大肠杆菌DH5α化学感受态细胞用于质粒保存与扩增,按标准重组DNA方案操作,在37 °C下于含50 μg/mL氨苄青霉素的LB培养基中培养。
【数据】宿主:构巢曲霉LO8030;产孢温度:37°C;GMM:1%葡萄糖、1.6%琼脂;SMM:1.2 M D-山梨醇、2%琼脂;YG:2%葡萄糖、0.5%酵母提取物;LMM-S:2%淀粉;20×硝酸盐:NaNO3 120.0 g/L、KCl 10.4 g/L、MgSO4·7H2O 10.4 g/L、KH2PO4 30.4 g/L;尿苷:5 mM;尿嘧啶:5 mM;吡哆醇:1 μg/mL;核黄素:0.25 μg/mL;酵母培养温度:30°C;氨苄青霉素:50 μg/mL;大肠杆菌培养温度:37°C
2.3 候选P450的生物信息学分析
以CYP-H6231为查询序列,通过BLASTP从刺孢毛霉3.3450与青霉属sp. BH15的预测蛋白质组中鉴定候选P450。候选CPR以CPR-H10273为查询序列类似鉴定。使用NCBI Batch CD-Search分析保守结构域。P450蛋白序列用MAFFT以L-INS-i策略比对,并在UGENE中以百分比一致性阴影可视化。
【数据】查询序列:CYP-H6231(P450)、CPR-H10273(CPR);比对策略:MAFFT L-INS-i;结构域分析:NCBI Batch CD-Search;其余参数:原文未详述
2.4 质粒构建
本研究所用全部基因、质粒与引物分别列于表S1、S2与S3。基因mdpG、mdpF、mdpH1/H2、mdpK、mdpC与mdpB从构巢曲霉FGSC A4基因组DNA经PCR扩增。基因CYP-H6231与CPR-H10273从土曲霉ATCC20542基因组DNA经PCR扩增。mdpK同源基因gedF、tpcG、angL4、nsrR与ptaF由GenScript(南京,中国)合成。为构建构巢曲霉LO8030的游离型表达质粒,从分别含营养缺陷型标记riboB、pyrG与pyroA的质粒pYX1、pYX10与pYX11扩增骨架片段。基因表达由组成型启动子PgpdA(Punt et al., 1991)或诱导型启动子PamyB(Kanemori et al., 1999; Tada et al., 1991)与Pxyl(Yap et al., 2022)驱动。各目标基因下游300 bp区域用作终止子。每个游离型表达质粒含曲霉自主复制序列AMA1(Gems et al., 1991)。基因敲除与基因组整合表达盒使用目标位点上下游同源侧翼区(约1000 bp)组装。质粒通过酿酒酵母BJ5464中的转化关联重组(TAR)克隆组装。酵母质粒用E.Z.N.A.® Yeast Plasmid Kit(Omega Bio-Tek,Norcross,GA,USA)提取,随后转化大肠杆菌DH5α。转化子经菌落PCR验证,质粒DNA用UE Plasmid Miniprep Kit(UElandy,苏州,中国)提取。所有表达构建体在真菌转化前均经Sanger测序严格验证。
【数据】模板:构巢曲霉FGSC A4基因组DNA(mdpG、mdpF、mdpH1/H2、mdpK、mdpC、mdpB)、土曲霉ATCC20542基因组DNA(CYP-H6231、CPR-H10273);合成基因:gedF、tpcG、angL4、nsrR、ptaF;启动子:PgpdA、PamyB、Pxyl;终止子:目标基因下游300 bp;同源臂:约1000 bp;复制序列:AMA1;酵母宿主:BJ5464;大肠杆菌宿主:DH5α
2.5 构巢曲霉原生质体的制备与转化
将构巢曲霉孢子接种至补充所需营养的YG培养基,于30 °C、135 rpm培养14 h。用无菌滤布收集菌丝体,洗涤后重悬于8 mL YG培养基。随后向菌丝悬液加入8 mL 2 ×原生质体化缓冲液(164 g/L KCl、42 g/L一水柠檬酸、128 g/L Vinoflow,pH 5.8)。混合物于30 °C、100 rpm孵育4 h,期间显微镜监测原生质体形成。原生质体纯化时,在无菌30-mL Corex管中将10 mL 1.2 M蔗糖溶液轻轻层叠于消化混合物上,随后于4 °C、3500 rpm离心10 min。收集界面处原生质体,用等体积STC缓冲液(1.2 M山梨醇、10 mM CaCl2、10 mM Tris-HCl,pH 7.5)洗涤,并于4 °C、5000 rpm离心8 min沉淀。纯化后的原生质体重悬于STC缓冲液至终浓度10⁸–10⁹细胞/mL。聚乙二醇(PEG)介导转化时,将100 μL原生质体悬液与所需质粒或线性DNA盒混合,冰上孵育50 min。随后逐步加入1.25 mL 60% PEG溶液,轻混,室温孵育20 min。混合物用STC缓冲液调整至终体积6 mL。取转化原生质体1 mL涂布于双层SMM平板。下层含1.6%琼脂及相应选择营养,上层为含原生质体的8 mL SMM(0.8%琼脂)。平板于37 °C孵育2–3 d至转化子菌落出现。所有工程突变体(表S4)均经诊断PCR验证。
【数据】孢子培养:30°C、135 rpm、14 h;原生质体化缓冲液:KCl 164 g/L、一水柠檬酸 42 g/L、Vinoflow 128 g/L、pH 5.8;消化:30°C、100 rpm、4 h;蔗糖层:1.2 M;第一次离心:3500 rpm、10 min、4°C;第二次离心:5000 rpm、8 min、4°C;原生质体浓度:10⁸–10⁹细胞/mL;冰上孵育:50 min;PEG浓度:60%;PEG孵育:室温、20 min;转化平板:37°C、2–3 d
2.6 摇瓶培养与代谢物提取
验证后的转化子在选择性GMM平板上于37 °C培养3–4 d。用无菌0.01% Tween 80溶液收集孢子。摇瓶发酵时,将300 μL孢子悬液接种至含200 mL LMM-S培养基的500-mL Erlenmeyer瓶,于30 °C、180 rpm培养7 d。需诱导的菌株按2.7节所述加入木糖。所有摇瓶发酵均设生物学三重复。代谢物提取时,将培养液分离为 supernatant 与菌丝体。上清用等体积乙酸乙酯萃取三次,菌丝体在甲醇中超声处理(3 × 30 min)。合并有机提取物,蒸发至干……(原文此处节选结束)
【数据】GMM平板培养:37°C、3–4 d;孢子收集:0.01% Tween 80;接种量:300 μL;摇瓶体积:500-mL瓶装200 mL LMM-S;培养:30°C、180 rpm、7 d;重复数:生物学三重复;上清萃取:等体积乙酸乙酯、3次;菌丝超声:甲醇、3 × 30 min
2.7 诱导条件(原文节选未含该节内容)
原文节选未详述2.7节的具体诱导条件与木糖浓度、诱导时间点。结果部分涉及的时序诱导策略见3.6节相应描述。
【数据】原文未详述
研究结果
3.1 最小途径重建使构巢曲霉具备大黄素生产能力
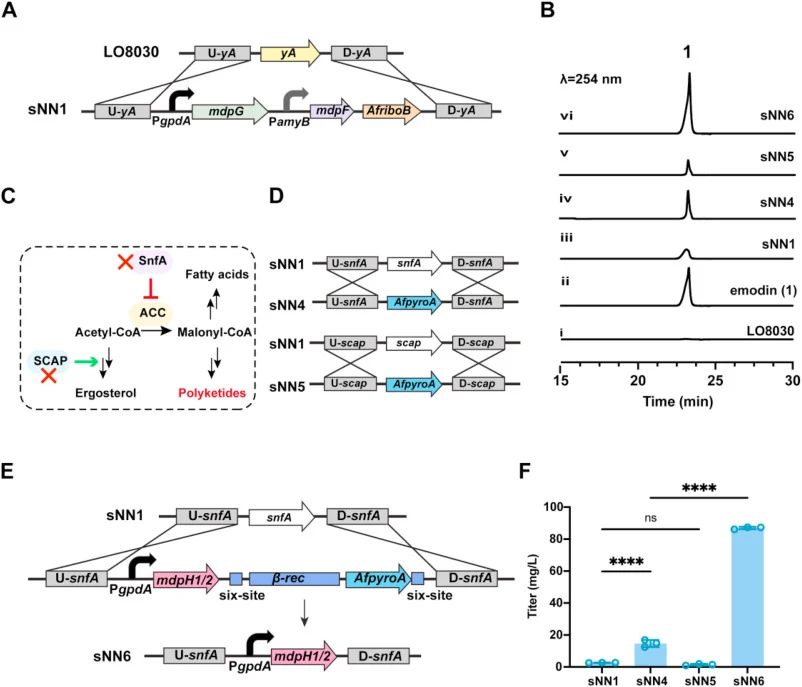
为在构巢曲霉中建立大黄素平台,我们重建了由mdpG与mdpF组成的最小上游模块(图1)。mdpG编码非还原型聚酮合酶,mdpF编码形成早期蒽醌中间体所需的同源产物释放硫酯酶(Chiang et al., 2010)。两基因整合于yA位点以生成菌株sNN1(图2A)。正确转化子可凭黄色分生孢子表型轻易识别。sNN1在LMM-S培养基中培养后,在23 min处出现亲本菌株LO8030所无的新HPLC峰(图2B)。LC–MS及与真实标准品比对确认该化合物为大黄素(1)(图S2),滴度为2.64 ± 0.11 mg/L。产量虽有限,但结果表明构巢曲霉可支持最小大黄素生物合成模块的重建并产生可检测的途径终产物。我们因此以sNN1作为进一步工程的起始平台。
【数据】菌株:sNN1(LO8030衍生,yA位点整合mdpG+mdpF);HPLC峰保留时间:23 min;大黄素滴度:2.64 ± 0.11 mg/L;培养基:LMM-S;亲本对照:LO8030(无该峰)
3.2 改造前体供给与下游转化提升大黄素滴度
由于大黄素生物合成依赖丙二酰-CoA作为聚酮延伸单元,我们接着考察调节前体供给能否提升sNN1产量。丙二酰-CoA由乙酰-CoA经乙酰-CoA羧化酶(ACC)生成,而SNF1/SnfA激酶据报通过磷酸化负调控ACC活性(图2C)(Woods et al., 1994; Zhang et al., 2013)。因此,snfA缺失已被用于提高曲霉属中丙二酰-CoA衍生聚酮的产量(Kan et al., 2019)。同时,我们评估了scap——它编码参与甾醇生物合成的SREBP/SCAP调控系统的一个组分。由于甾醇形成消耗乙酰-CoA衍生前体,破坏scap被提出可减少碳通量进入甾醇代谢、将乙酰-CoA重定向至聚酮生物合成(图2C)(Itoh et al., 2018; Kan et al., 2019)。基于上述考虑,在sNN1背景中分别单独缺失snfA与scap,生成sNN4与sNN5(图2D)。snfA缺失使大黄素产量从sNN1的2.64 ± 0.11 mg/L提高至sNN4的14.71 ± 1.81 mg/L,对应5.6倍提升(图2B–iv,图2F)。该结果提示提高丙二酰-CoA可用性可有效增强通过重建蒽醌途径的通量。相反,scap缺失在所测条件下未显著改变大黄素产量;sNN5产1.45 ± 0.41 mg/L大黄素,而sNN1为2.64 ± 0.11 mg/L,两菌株间无统计学显著差异(图2B–v,图2F)。尽管平均滴度数值上较低,但差异不具统计学显著性。虽然破坏SREBP/SCAP调控据报可增强其他真菌聚酮途径(Itoh et al., 2018),但此类全局调控扰动的效应很可能取决于宿主背景、培养条件与途径特异的代谢情境。在本系统中,scap缺失因此未提供可测收益,而snfA缺失被选用于进一步工程。我们随后寻求强化下游向大黄素的转化。在天然mdp途径中,mdpH被认为与早期蒽醌中间体向大黄素形成的转化有关。因此,将含原注释mdpH1/mdpH2片段的表达盒引入sNN1背景的snfA位点,生成sNN6(图2E)。该整合同时将snfA缺失与下游转化基因表达组合在一起。该表达盒还含β-Rec/six标记回收系统,允许整合后切除AfpyroA选择标记(Hartmann et al., 2010)。菌株sNN6产86.93 ± 0.59 mg/L大黄素,相对sNN1提高32.9倍,相对ΔsnfA菌株sNN4提高5.9倍(图2B–vi,图2F)。为检验替代脱羧酶能否进一步提升产量,我们用来自monodictyphenone途径的同源基因tpcK替换mdpH(Mattern et al., 2015)。所得菌株产74.93 ± 0.61 mg/L大黄素,低于使用mdpH所获。因此保留mdpH用于后续途径构建。总之,这些结果表明,通过组合snfA缺失与下游转化强化,重建的构巢曲霉平台中的大黄素产量可大幅提升。优化菌株sNN6为后续羟化酶筛选与途径延伸提供了更高滴度的大黄素平台。
【数据】菌株:sNN1(大黄素2.64 ± 0.11 mg/L)、sNN4(ΔsnfA,14.71 ± 1.81 mg/L,5.6倍)、sNN5(Δscap,1.45 ± 0.41 mg/L,无显著差异)、sNN6(ΔsnfA+mdpH1/H2,86.93 ± 0.59 mg/L,相对sNN1 32.9倍、相对sNN4 5.9倍)、tpcK替换株(74.93 ± 0.61 mg/L);培养基:LMM-S;标记回收:β-Rec/six、AfpyroA
3.3 功能筛选鉴定高效P450用于橘黄酮形成
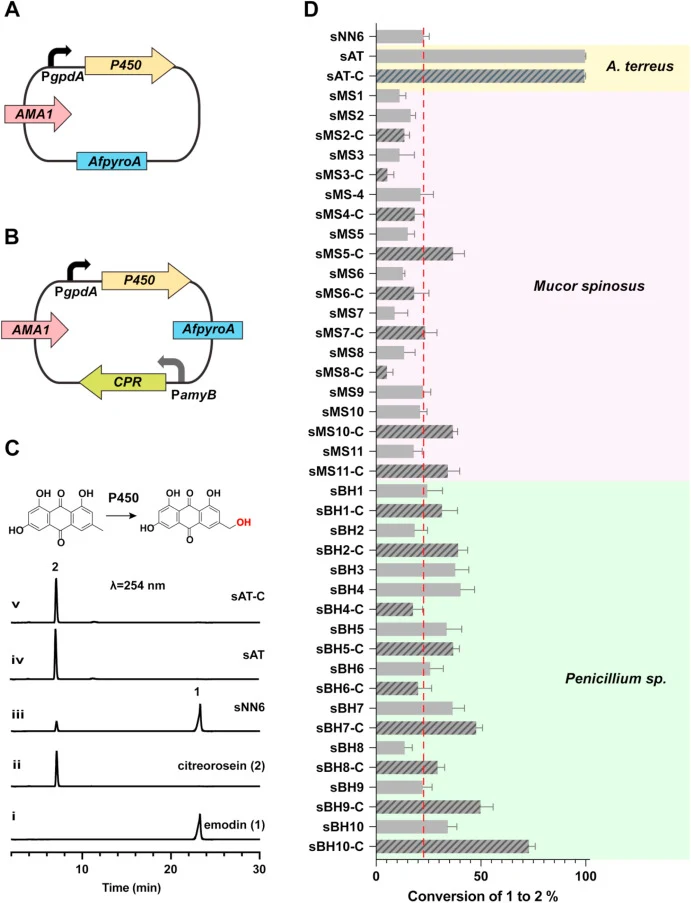
手握产大黄素底盘后,我们接着寻找能将大黄素(1)转化为橘黄酮(2)的羟化酶。我们以来自土曲霉的CYP-H6231作为序列锚点,因其据报可羟化大黄素(Lu et al., 2025; Ren et al., 2025)。我们并未将序列一致性作为唯一选择标准,而是首先依据与蒽醌代谢相关的生物学证据对来源菌株排序。刺孢毛霉3.3450据报可产生具羟甲基化取代模式的蒽醌生物转化产物(Zhang, 2004),而我们实验室内部研究表明青霉属sp. BH15产生相关次级代谢产物。这些观察提示两菌株可能编码能催化类似修饰反应的P450。在这两个生物学上优先的菌株的预测蛋白质组内,候选P450随后按与CYP-H6231的BLAST相似性排序。我们保留覆盖广泛序列相似性范围的候选,以拓宽功能搜索空间,避免排除具有所需催化活性但序列趋异的酶。据此,从刺孢毛霉3.3450选出11个候选P450(MS1–MS11),从青霉属sp. BH15选出10个(BH1–BH10)用于实验筛选。为进一步表征这些候选P450,进行了保守结构域与基序分析。全部21个候选均含细胞色素P450结构域。其催化核心区比对揭示了可识别的I-螺旋、K-螺旋ExxR、PERF/W样与血红素结合区,且血红素配位半胱氨酸在候选集中保守(图S3)。这些序列特征支持它们被注释为可能的细胞色素P450,尽管其与CYP-H6231的全长相似性相对较低。然而,催化核心的保守并不保证共享底物特异性,因此其对大黄素的活性随后在体内实验评估。同时,由于P450活性依赖来自CPR伴侣的电子传递,我们以CPR-H10273(Ren et al., 2025)为查询搜索CPR候选,从每个物种中各鉴定出一个候选CPR(MS-CPR与BH-CPR)。LO8030中一个内源CPR样蛋白与CPR-H10273也显示相对较高的序列一致性(88.63%),提示某些异源P450可能由底盘中的天然氧化还原系统支持。所有候选序列一致性(表S5)与具体序列细节(表S6)均已提供。候选P450用两种表达形式评估。第一种,每个P450在sNN6中由AMA1基游离型质粒在PgpdA控制下单独表达(图3A)。第二种,每个P450与其对应候选CPR在同一AMA1基质粒上共表达,P450由PgpdA驱动,CPR由PamyB驱动(图3B)。在LMM-S培养基中培养7天后,发酵产物经HPLC与……(原文此处节选结束)
【数据】候选P450:MS1–MS11(刺孢毛霉3.3450,11个)、BH1–BH10(青霉属sp. BH15,10个),共21个;候选CPR:MS-CPR、BH-CPR;内源CPR样蛋白一致性:88.63%;表达载体:AMA1基游离型质粒;启动子:PgpdA(P450)、PamyB(CPR);培养:LMM-S、7 d;其余参数:原文未详述
3.4 途径延伸至芦荟大黄素(原文节选未含完整内容)
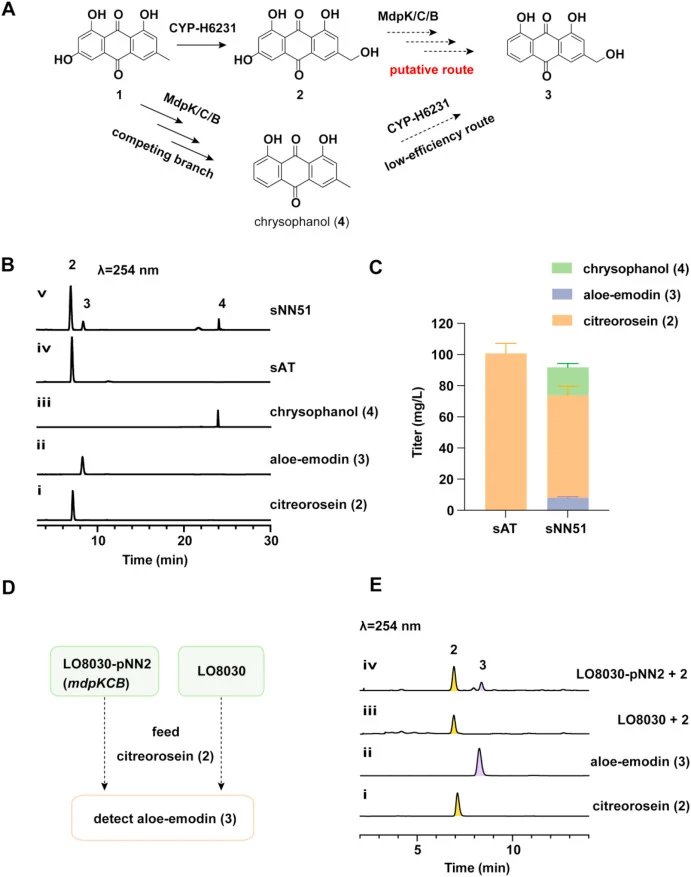
原文节选未详述3.4节的具体实验内容与数据。图4所示为由大黄素(1)至芦荟大黄素(3)的推定代谢路线:经MdpK/C/B模块介导、以橘黄酮(2)为中间体的路线,以及通往大黄酚(4)的竞争分支。
【数据】原文未详述
3.5 时序控制mdpK表达改善通量分配(原文节选未含完整内容)
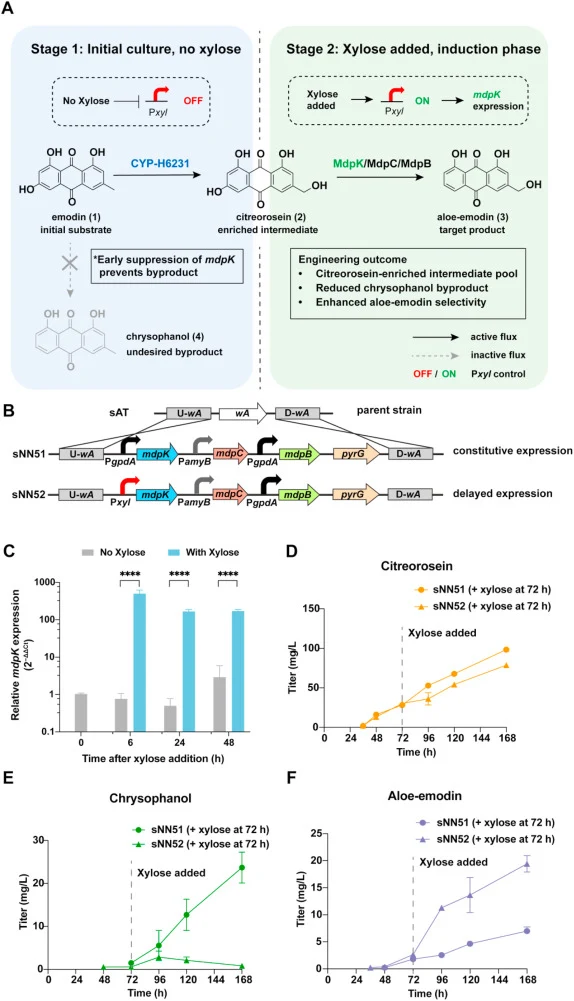
原文节选未详述3.5节的具体实验内容与数据。图5所示为两阶段诱导策略示意:无木糖时,低基础mdpK表达限制MdpK/MdpC/MdpB介导的大黄酚分支,使大黄素(1)优先转化为橘黄酮(2)。
【数据】原文未详述
3.6 补料分批发酵实现可放大的共生产(原文节选未含完整内容)
原文节选未详述3.6节的具体实验内容与数据。图6所示为菌株sNN52在1-L生物反应器中发酵的时间进程曲线,包括橘黄酮(2)、芦荟大黄素(3)与细胞干重(DCW);2与3的滴度绘于左y轴,DCW绘于……(原文此处节选结束)。摘要给出的终点数据为:最终工程菌株在1-L补料分批发酵中实现278.06 mg/L橘黄酮与70.97 mg/L芦荟大黄素。
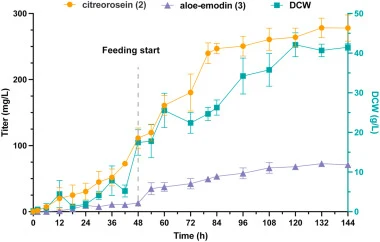
【数据】菌株:sNN52;反应器体积:1-L;橘黄酮滴度:278.06 mg/L;芦荟大黄素滴度:70.97 mg/L;检测指标:橘黄酮、芦荟大黄素、DCW;其余参数:原文未详述
讨论与解读
既往微生物蒽醌平台已通过途径重建与代谢优化实现大黄素、内大黄素与大黄素甲醚的可观产量。酿酒酵母中,组合途径重建与前体优化使补料分批生产达到528.4 ± 62.7 mg/L大黄素与661.2 ± 50.5 mg/L内大黄素(Sun et al., 2019)。土曲霉中,大黄素积累模块与选择性甲基化模块整合产出6.3 g/L大黄素甲醚(Qi et al., 2022);而工程构巢曲霉通过O-甲基转移酶挖掘与S-腺苷甲硫氨酸供给强化产出64.6 mg/L大黄素甲醚(Yao et al., 2023)。相比之下,本研究并非转移单一已建立的微生物途径,而是通过组合功能各异的蒽醌修饰反应组装非天然途径,实现芦荟大黄素的从头生物合成。尽管直接定量对标受目标分子、宿主与培养条件差异限制,本系统展示了模块化途径组装如何将单独表征的反应连接为有生产力的生物合成路线。在此背景下,本工作凸显了与真菌蒽醌生产相关的三点工程考量。第一,最小途径重建足以产生可检测的目标化合物,但途径输出受前体供给制约——本研究通过snfA缺失将大黄素从2.64 mg/L提升至14.71 mg/L,再叠加mdpH强化达到86.93 mg/L,说明前体与下游转化需协同改造。第二,P450筛选未局限序列一致性,而先以生物学证据排序来源菌株,再保留宽相似性区间的候选,这种"功能优先"策略在酶序列–功能关系不明时更务实。第三,也是最具方法学价值的一点:组成型表达下游还原模块造成通量失衡与大黄酚积累,而对mdpK施加时序诱导、延迟其表达时点,可重塑通量分配、显著降低副产物并提高芦荟大黄素选择性——这提示在真菌细胞工厂中,酶的表达"何时开"与"开多少"同样重要。
编译者解读:该研究的亮点不在单酶活性,而在"模块化组装+时序开关"的组合拳。对合成生物学而言,植物来源蒽醌途径步骤多、分支杂,静态过表达往往把碳流推向热力学或动力学更顺的旁支。作者用可诱导启动子把关键节点酶的表达推迟,等于在时间维度上给途径"排程",这是一种低成本、可移植的通量控制手段。局限也明显:终产物70.97 mg/L仍远低于植物提取的经济门槛,且时序诱导依赖外源诱导剂与两阶段培养,放大到工业反应器时的诱导均匀性与成本尚未评估;P450–CPR电子传递效率、大黄酚分支的彻底封闭仍是后续待解问题。
参考来源
期刊:Metabolic Engineering, 2027
DOI: 10.1016/j.ymben.2026.102569
DOI: 10.1016/j.ymben.2026.102569