来源:Engineering O-methyltransferase and SAM-ATP cofactor cycle for high-efficiency melatonin biosynthesis in Escherichia coli(Bioresource Technology)| 编译:DNA Lab Space | 原文许可:elsevier-subscription
导读
褪黑素是进化上高度保守的吲哚胺类化合物,在植物抗逆与动物昼夜节律调节中均发挥关键作用。微生物合成褪黑素长期受制于O-甲基转移酶活性不足与辅因子供给短缺两大瓶颈。本研究以能量计算与进化共识为指导改造LpCOMT,获得比活提高8.1倍的突变体M2;再通过基因表达优化平衡碳流、重建SAM-ATP辅因子循环,最终在5 L生物反应器中实现1.48 g/L褪黑素产量,为目前报道的从头合成最高滴度。
研究背景
褪黑素在植物中缓解干旱与极端温度等非生物胁迫,在动物与人体中调节昼夜节律、抗氧化、免疫调节并提供神经保护。工业上褪黑素依赖涉及危险试剂的多步化学合成,或从价格昂贵、受季节限制的植物中提取。合成生物学的进步使微生物细胞工厂成为绿色高效合成褪黑素的替代方案,来自色氨酸的异源途径已在大肠杆菌和酿酒酵母中建立。Germann等(2016)首次在酿酒酵母中实现14.5 mg/L褪黑素;Luo等(2020)通过工程化色氨酸羟化酶与途径删减在大肠杆菌中达到克级产量;近期借助AI辅助酶挖掘或BH4非依赖途径设计,在外源色氨酸补加条件下分别报道了6.2 g/L(Qu等,2026)与3.40 g/L(Wan等,2026)的滴度。尽管取得这些进展,酶活性不足、辅因子供给失衡等瓶颈仍阻碍工业化应用。
研究方法
2.1 菌株与质粒
以大肠杆菌BL21(DE3)为初始宿主菌株,所有工程菌株均由其衍生(详细基因型与构建信息见表S1)。质粒构建使用大肠杆菌JM109。HsTPHMS4突变体基因来自本实验室前期工作。褪黑素生物合成途径的其他异源基因经大肠杆菌密码子优化后由Azenta Life Sciences(中国苏州)合成,所用异源基因见表S2。初始酶筛选使用pET-28a(+)质粒进行单基因诱导表达。为完成多酶途径的完整组装,随后将选定的核心酶基因克隆至表达载体pCDFDuet-1与pRSFDuet-1中,以协调表达并平衡代谢负担。
【数据】宿主菌株:E. coli BL21(DE3);克隆菌株:E. coli JM109;筛选质粒:pET-28a(+);组装质粒:pCDFDuet-1、pRSFDuet-1;基因合成商:Azenta Life Sciences(苏州);密码子优化宿主:E. coli;原文未详述其他参数
2.2 质粒构建与定点突变
质粒采用Gibson组装构建。目标基因用相应引物(表S3)扩增后与线性化载体组装。阳性克隆经DNA测序验证,验证正确的质粒转化至目标菌株。LpCOMT定点突变采用高保真DNA聚合酶(PrimeSTAR Max DNA Polymerase,Takara)进行全质粒反向PCR。模板用Dpn I消化,PCR产物自连接。所有突变均经DNA测序确认。大肠杆菌BL21(DE3)的基因敲除与基因组整合使用基于CRISPR-Cas9的pREDCas9与pGRB质粒系统完成(Tang等,2023)。
【数据】组装方法:Gibson assembly;聚合酶:PrimeSTAR Max DNA Polymerase(Takara);模板消化酶:Dpn I;CRISPR系统:pREDCas9/pGRB;原文未详述PCR循环参数
2.3 蛋白表达、纯化与酶学表征
目标蛋白在大肠杆菌中以0.2 mM IPTG于25℃诱导12 h表达。收集菌体,超声破碎,经Ni-NTA亲和层析纯化。蛋白浓度用Bradford法测定(Bradford试剂,生工生物,上海)。LpCOMT及其突变体的酶活测定在1 mL反应体系中进行,含900 μL底物预混液(50 mM Tris-HCl,pH 7.4,1 mM SAM,2 mM NAS)与100 μL纯化酶液。37℃反应10 min后,用等体积甲醇终止反应。WT及突变体对NAS与咖啡酸的动力学参数在上述标准条件下、底物浓度0.1–10 mM范围内通过测定初始反应速率确定。褪黑素用HPLC定量(Han等,2026)。一个酶活单位(U)定义为每分钟产生1 μmol褪黑素所需的酶量。
【数据】IPTG浓度:0.2 mM;诱导温度:25℃;诱导时间:12 h;缓冲液:50 mM Tris-HCl pH 7.4;SAM浓度:1 mM;NAS浓度:2 mM;反应温度:37℃;反应时间:10 min;底物浓度范围:0.1–10 mM;酶活单位定义:1 μmol褪黑素/min
2.4 圆二色谱热稳定性分析
纯化的WT、M1与M2蛋白的热稳定性用远紫外圆二色谱(CD)评估,仪器为配备PTC-517 Peltier温控单元的JASCO J-1700 CD光谱仪(JASCO公司,东京,日本)。蛋白样品对50 mM磷酸缓冲液(pH 7.4)透析。以2.0 nm带宽、2 s响应时间连续监测220 nm处的椭圆率,温度以约1 ℃/min的速率从25℃升至80℃。熔解温度(Tm)通过Boltzmann sigmoidal方程将热变性曲线拟合为二态转变模型计算。
【数据】缓冲液:50 mM磷酸缓冲液 pH 7.4;监测波长:220 nm;带宽:2.0 nm;响应时间:2 s;温度范围:25–80℃;升温速率:约1 ℃/min;拟合模型:二态转变/Boltzmann sigmoidal
2.5 自由能(ΔΔG)计算与保守性分析
为理性评估点突变对蛋白结构稳定性的影响,用FoldX 5.0软件预测酶突变体的自由能变化(ΔΔG)(Delgado等,2019)。Rosetta Cartesian_ddG验证的细节见Han等(2026)。为系统筛选潜在稳定性增强位点,计算每个残基所有可能突变的平均ΔΔG,平均ΔΔG低于–0.5 kcal/mol的残基纳入初级稳定性热点库。为鉴定功能兼容的突变,用MEGA 11对100条LpCOMT同源序列比对后进行进化保守性分析,计算每个候选位点的替换频率,保留频率>0.2的突变,以确保进化合理性并生成精炼突变库。进一步用ConSurf服务器(https://consurf.tau.ac.il/)进行进化保守性验证。
【数据】软件:FoldX 5.0、Rosetta Cartesian_ddG、MEGA 11、ConSurf;同源序列数:100条;平均ΔΔG阈值:<–0.5 kcal/mol;替换频率阈值:>0.2;原文未详述其他参数
2.6 分子对接与分子动力学模拟
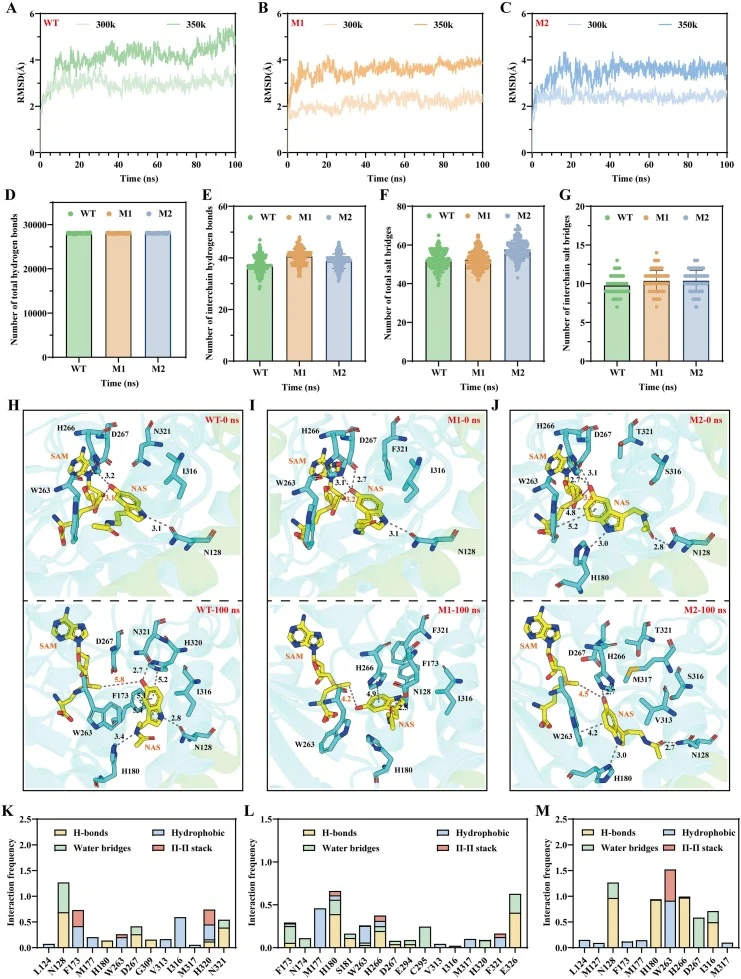
模型基于LpCOMT晶体结构,突变体结构用PyMOL构建。分子对接研究使用Schrödinger 2022-1套件完成。MD模拟使用Desmond模块与OPLS4力场。每个体系在TIP3P水盒中溶剂化,缓冲距离10 Å,用0.15 M NaCl中和。体系在100 ps内从0 K升温至300 K或350 K(NVT),在1 atm下用Nosé–Hoover恒温器与Martyna–Tobias–Klein恒压器平衡1 ns(NPT),随后以2 fs时间步长进行100 ns生产运行。每个体系进行三次独立重复。轨迹分析使用Schrödinger工具与自编脚本计算RMSD、配体–蛋白相互作用频率及关键原子间距离。
【数据】对接软件:Schrödinger 2022-1;MD软件:Desmond;力场:OPLS4;水模型:TIP3P;水盒缓冲:10 Å;离子强度:0.15 M NaCl;升温:0→300/350 K,100 ps,NVT;平衡:1 ns,NPT,1 atm;生产运行:100 ns;时间步长:2 fs;重复次数:3次
2.7 摇瓶与生物反应器培养
摇瓶发酵在500 mL挡板瓶中进行,装液量30 mL。种子液以5%(v/v)接种至发酵培养基,37℃、220 rpm振荡培养至OD600达6–8。随后加入IPTG至终浓度0.2 mM诱导异源途径表达,降温至30℃进入生产阶段。补料分批发酵在5 L生物反应器(迪必尔,中国)中进行。种子液先在反应器中培养至OD600 20–25,排去过量种子液至约400 mL,加入1.6 L碳源培养基使初始工作体积达2 L。培养基含:10 g/L甘油、5 g/L酵母提取物、10 g/L蛋白胨、2 g/L一水柠檬酸、4 g/L硫酸铵、1 g/L MgSO4·7H2O、4 g/L KH2PO4、100 mg/L FeSO4·7H2O、10 mg/L MnSO4·H2O及维生素混合物(硫胺素、烟酸、泛酸、生物素、维生素B12各2.5 mg/L)。发酵过程中通过自动补加氨水维持pH 7.0,溶氧(DO)维持20%–30%。OD600达30时加入IPTG至终浓度0.2 mM。甘油补料前期由DO反馈控制,中后期由残余甘油浓度控制。
【数据】摇瓶装液量:30 mL/500 mL;接种量:5%(v/v);诱导前温度:37℃;转速:220 rpm;诱导OD600:6–8;IPTG:0.2 mM;生产温度:30℃;反应器体积:5 L;初始工作体积:2 L;pH:7.0;DO:20%–30%;诱导OD600:30;甘油:10 g/L;酵母提取物:5 g/L;蛋白胨:10 g/L;柠檬酸:2 g/L;硫酸铵:4 g/L;MgSO4·7H2O:1 g/L;KH2PO4:4 g/L;FeSO4·7H2O:100 mg/L;MnSO4·H2O:10 mg/L;维生素:各2.5 mg/L
2.8 遗传稳定性测定
为评估遗传稳定性,M31在含或不含抗生素选择的LB培养基中连续传代。单菌落接种于5 mL LB,37℃过夜培养(第0代)。此后每代按1:100稀释至新鲜LB中培养12 h,重复10代。每两代取样评估摇瓶水平褪黑素产量与质粒保留率。质粒保留率通过将随机选取的50个单菌落影印接种至含或不含抗生素的LB琼脂平板测定。在持续抗生素选择下进行平行传代实验。
【数据】传代培养基:LB;接种稀释:1:100;培养温度:37℃;每代时间:12 h;传代数:10代;取样间隔:每2代;质粒保留率测定菌落数:50个;平行条件:含/不含抗生素
2.9 分析方法
细胞生长通过测定OD600确定。代谢物用HPLC定量。样品12,000 rpm离心5 min,上清与甲醇按1:4体积比混合(5倍稀释),经0.22 μm膜过滤后,在与酶活测定相同的HPLC条件下分析。SAM按Wang等(2024c)所述方法检测。胞内ATP水平用ATP检测试剂盒(碧云天,上海)经化学发光法量化。质谱在Waters SYNAPT Q-TOF系统上以正离子电喷雾模式进行。
【数据】离心:12,000 rpm,5 min;稀释比例:上清:甲醇=1:4(5倍);滤膜:0.22 μm;ATP试剂盒:碧云天;质谱系统:Waters SYNAPT Q-TOF;离子模式:正离子电喷雾;原文未详述HPLC柱型与流动相
研究结果
3.1 褪黑素生物合成途径的构建
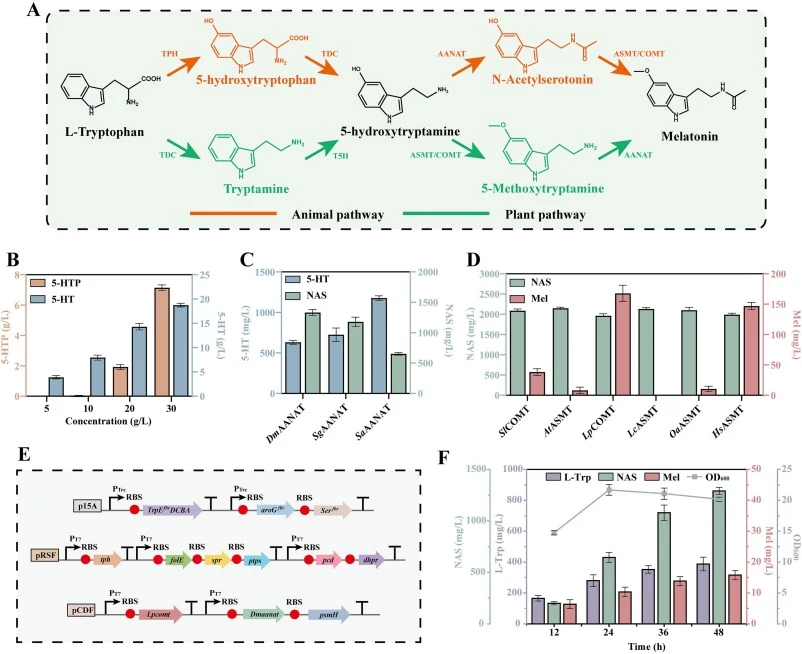
为在大肠杆菌中建立完整的褪黑素生物合成途径,引入了羟化酶、脱羧酶、N-乙酰转移酶与O-甲基转移酶等异源酶。植物途径中羟化发生在脱羧之后并作用于色胺,与动物路线不同(图1A)。植物来源的色胺羟化酶因在大肠杆菌中活性低而未被考虑(Zhou等,2021)。前期工作中已对人源色氨酸羟化酶突变体HsTPHMS4进行改造,比活提高2.85倍并缓解了底物抑制(Han等,2026)。因此仅将脱羧、N-乙酰化与O-甲基化步骤引入该背景。候选酶包括1个脱羧酶、3个芳烷基胺N-乙酰转移酶(AANAT)与6个O-甲基转移酶(ASMT/COMT)(Shi等,2023;Zhang等,2023b)。脱羧酶选择优先考虑底物特异性以避免色胺生成。据报道,来自Streptomyces griseofuscus的PsmH特异性催化5-羟色氨酸(5-HTP),对色氨酸无活性(Zhang等,2021)。在2 g/L色氨酸或5-HTP的全细胞催化中,PsmH在2 h内将5-HTP完全转化为5-羟色胺(5-HT),而未检测到色氨酸转化。在10 g/L 5-HTP时,10 h内实现完全转化,更高底物浓度验证了其催化效率(图1B)。测试了3个AANAT对5-HT的转化能力,DmAANAT活性最高,8 h内将2 g/L 5-HT转化为1.33 g/L NAS(图1C),因此被选用。6个ASMT/COMT酶的筛选显示仅LpCOMT与HsASMT具有显著催化活性,8 h内分别产生167.82 mg/L与146.85 mg/L褪黑素(图1D)。LpCOMT被选为O-甲基转移酶。当以5-HT为底物时未观察到5-甲氧基色胺生成,表明经5-甲氧基色胺的替代路线在该系统中不发生。基于上述结果,建立了经羟化、脱羧、N-乙酰化与O-甲基化从色氨酸到褪黑素的生物合成路线。菌株M1为大肠杆菌BL21(DE3)的衍生株,携带色氨酸合成质粒PTrp,过表达aroGfbr、serAfbr与trpEfbrDCBA操纵子,并敲除tnaA以减少色氨酸降解(Tang等,2023),同时带有crpfbr突变以解除碳分解代谢阻遏(Zhang等,2023a)。含HsTPHMS4及其必需辅因子BH4生物合成与再生基因的质粒组装为"羟化模块",与含PsmH、DmAANAT和LpCOMT的第二模块共同组成系统,其中PsmH利用工程化RBS置于DmAANAT下游,LpCOMT由独立启动子驱动(图1E)。对该模块中folE、ptps与spr表达顺序的系统优化鉴定出羟化能力最高的菌株H2(图S1)。将这两个模块引入菌株M1得到菌株M2,其在37℃摇瓶发酵中产生15.78 mg/L褪黑素(图1F)。LC-MS确认了褪黑素的合成(图S2),证明在大肠杆菌中成功重建了从头合成褪黑素的完整途径。然而大量NAS积累表明O-甲基化步骤仍是关键瓶颈。
【数据】5-HTP转化:2 g/L,2 h完全转化;10 g/L 5-HTP:10 h完全转化;DmAANAT:2 g/L 5-HT→1.33 g/L NAS,8 h;LpCOMT:167.82 mg/L褪黑素,8 h;HsASMT:146.85 mg/L褪黑素,8 h;M2产量:15.78 mg/L(37℃摇瓶);HsTPHMS4比活提升:2.85倍
3.2 基于能量与进化共识分析的热稳定性工程
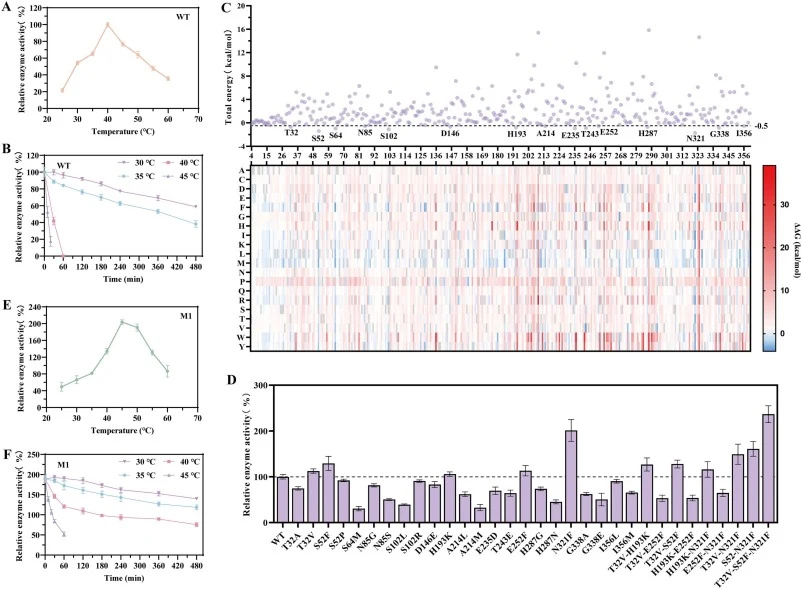
LpCOMT对非天然底物NAS的有限催化效率与较差的热稳定性被确定为主要生产瓶颈。30℃发酵使褪黑素滴度小幅提高9.82%并改善细胞生物量(图S3)。随后测定了纯化LpCOMT在不同温度下的活性(图2A)。该酶最适活性温度为40℃,但在40℃处理30 min后活性损失>50%,1 h后完全失活。45℃下10 min内即发生蛋白聚集并完全丧失活性(图2B)。为增强热稳定性,采用整合计算能量分析与进化保守性的理性设计策略。对虚拟饱和突变计算自由能变化(ΔΔG)。为降低单点预测的随机性,对每个残基所有突变的ΔΔG取平均值,选择平均ΔΔG低于–0.5 kcal/mol的残基。该分析鉴定出15个符合标准的残基:T32、S52、S64、N85、S102、D146、H193、A214、F235、T243、E252、H287、N321、G338与I356(图2C)。为交叉验证这些预测,用Rosetta软件套件对15个候选残基进行Cartesian_ddG计算,结果显示Rosetta计算的ΔΔG值与FoldX预测总体一致(图S4)。进一步通过比对100条同源序列并量化候选位点氨基酸替换频率评估进化保守性(图S5)。ConSurf分析基于更大序列数据库独立验证了每个位点的保守性评分(表S4)。最终设计靶点依据低平均ΔΔG与高进化替换频率共同排序。在这些协同筛选标准指导下,实验验证了23个单点突变体(图2D)。5个突变体——T32V、S52F、H193K、E252F与N321F——活性高于WT,其中N321F增强最显著(2.01倍)。组合突变揭示含E252F的组合活性急剧下降,而T32V-N321F与S52F-N321F表现出良好协同(活性比WT高>150%)。因此构建了三突变体T32V-S52F-N321F,催化活性提高2.37倍。热稳定性分析显示三突变体最适反应温度从WT的40℃升至45℃(图2E)。该突变体在35℃下8 h后仍保留>50%活性,40℃下6 h后维持约50%残余活性(图2F)。该变体命名为M1,兼具增强的催化活性与显著改善的热稳定性。
【数据】30℃发酵滴度提升:9.82%;最适温度:WT 40℃;40℃半衰期:30 min内损失>50%,1 h完全失活;45℃:10 min聚集失活;ΔΔG阈值:<–0.5 kcal/mol;候选残基数:15个;同源序列:100条;验证单点突变体:23个;N321F:2.01倍;T32V-N321F/S52F-N321F:>150%;三突变体活性:2.37倍;三突变体最适温度:45℃;35℃ 8 h:>50%活性;40℃ 6 h:约50%残余活性
3.3 改造底物结合口袋以增强对NAS的催化活性
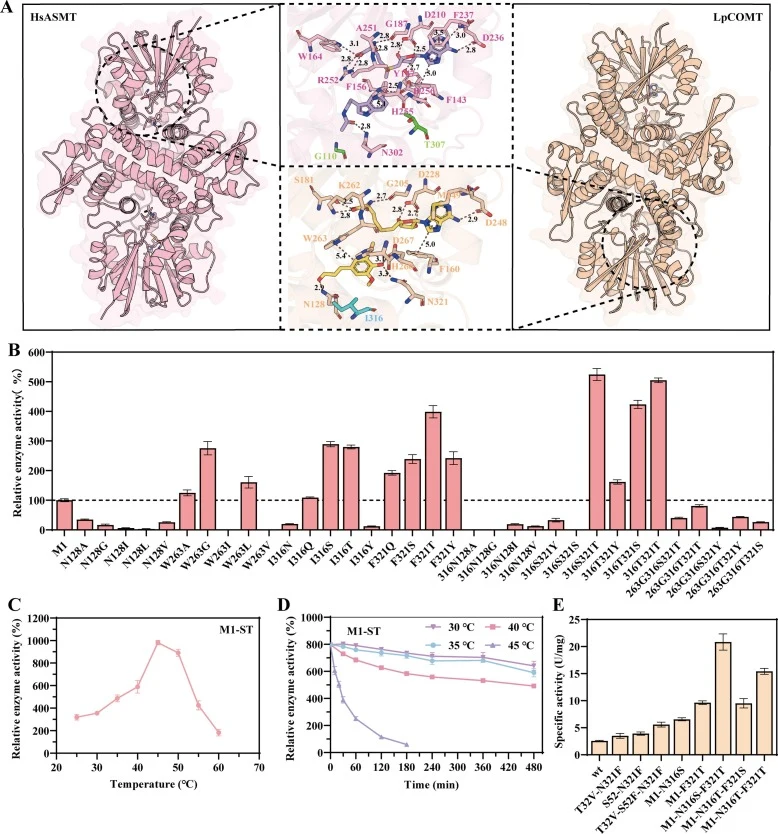
与天然底物相比,NAS具有更庞大的芳香环与延长的N-乙酰侧链,可能导致其在天然结合口袋中容纳不足与取向不佳。为增强其对褪黑素的催化能力,对口袋进行了系统重塑。LpCOMT(Louie等,2010)与HsASMT-NAS复合物(Botros等,2013)的结构比对显示整体架构保守,但关键侧链识别区域存在差异(图3A)。鉴定出4个关键残基:N128、W263、I316与F321。N128与天然底物的羧基形成氢键,而HsASMT中对应残基为较小的甘氨酸。W263稳定天然底物的芳香环,但其庞大侧链被认为阻碍NAS的N-乙酰基。HsASMT中NAS的乙酰羰基与N302形成氢键,而LpCOMT的等效位置为疏水的I316,提示其通过特定分子相互作用稳定NAS的作用。LpCOMT中N321与天然底物的羟基形成氢键;然而NAS仅含单个吲哚羟基,该相互作用可能使反应羟基偏离SAM,降低催化效率。HsASMT中对应残基(T307)取向不同,提示微调极性可能改善底物定位。基于上述分析(原文此处节选结束)。
【数据】关键残基:N128、W263、I316、F321;HsASMT对应残基:甘氨酸、N302、T307;PDB:LpCOMT 3P9I、HsASMT 4A6E;原文未详述后续突变体活性数值
3.4 LpCOMT及其突变体的MD模拟分析
3.5 代谢途径与基因表达的系统优化
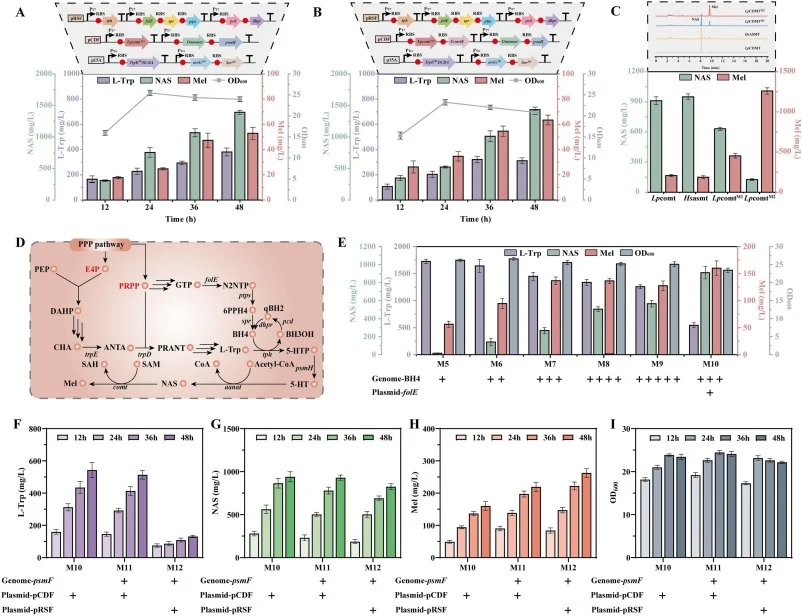
3.6 SAM-ATP辅因子循环的系统级重建与5 L规模补料分批发酵
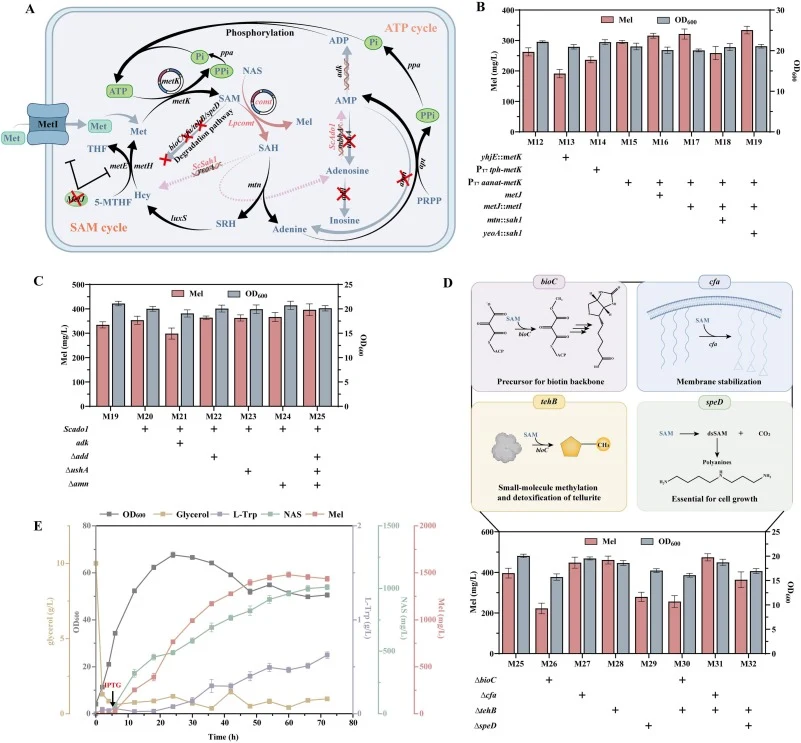
讨论与解读
异源褪黑素途径酶常具有宽泛底物特异性。通过对途径酶的底物特异性筛选,建立了独特的反应顺序,有效避免了副产物N-乙酰色胺的生成。针对O-甲基转移酶固有的热稳定性差与催化活性低,将自由能计算与进化保守性分析结合设计出热稳定突变体M1,随后经PPRS获得高活性突变体M2,酶活提高8.1倍,Tm提高6.29℃。为供给色氨酸羟化所需的辅因子BH4,在大肠杆菌中引入多基因BH4生物合成与再生模块。基因表达优化后,通过BH4模块的多拷贝基因组整合与额外过表达folE,部分重新平衡了色氨酸与BH4之间的碳流,提高了羟化效率进而增加褪黑素产量。为解决辅因子限制,通过增强SAM合成、异源SAHase介导的SAH清除、强化腺苷 salvage 途径与阻断嘌呤降解,系统重建了SAM-ATP偶联循环。这些改造使ATP提高24.62%,褪黑素滴度升至396.34 mg/L。进一步敲除非生产性SAM消耗基因cfa与tehB,重定向(原文节选至此结束)。
编译者解读:该研究把"酶稳定性—口袋特异性—辅因子供给"三个层级打通,方法学上以ΔΔG共识筛选降低理性设计的盲目性,再用SAM-ATP循环重建解决甲基化反应的通量限制,逻辑链条完整。1.48 g/L的从头合成滴度确有竞争力,但依赖外源补加前体与多质粒系统的遗传稳定性仍是放大风险;此外M2的8.1倍比活提升对NAS的底物偏好是否改变了天然咖啡酸代谢的副反应,值得后续在全细胞背景中验证。
参考来源
期刊:Bioresource Technology, 2027
DOI: 10.1016/j.biortech.2026.135800
DOI: 10.1016/j.biortech.2026.135800